这篇文章用延匹配样本任务(delayed matching to sample, DMTS)操纵工作记忆(working memory, WM)的保持时长,在事件相关 fMRI 设计下单独考察"再认阶段"的激活如何随此前记忆延迟的长度变化。它的价值在于把一个此前只有 PET 或块设计研究能粗略回答的问题——记忆痕迹维持多久会改变哪些脑区的活动——精确到了单个成功试次,并给出一个耐人寻味的答案:内侧颞叶活性随延迟增加而增强,而下颞皮层反而衰减。
研究背景
视空间工作记忆是智力的一般核心成分,概念与生理上都分为物体工作记忆(object WM)与空间工作记忆两个子系统,它在知觉与长时记忆之间搭桥,提供一个容量有限的在线维持与操作机制。物体 WM 常以 DMTS 任务研究,任务可分为编码、保持与再认三相;增加记忆维持延迟即可提高任务负荷,伴随反应延迟增加与正确率下降。病灶与动物模型证据表明额叶与颞叶对 DMTS 成绩都至关重要,而延迟长度等因素决定了维持记忆信号的神经基质。两条线索尤其关键:Petrides(2000)和 Owen 等(1995)的病灶研究提示,对延迟时长敏感的基质在颞叶皮层,额叶则更多承担执行角色。功能影像研究已确认物体 WM 涉及枕叶、顶叶、外侧前额叶、下颞与内侧颞皮层的广泛网络,也可能通过操纵图像数量或复杂度找到负荷敏感区。但"先前记忆延迟的时长如何影响成功再认时的神经活动"这个问题,此前直接考察的影像研究寥寥且结果互相矛盾:有的报道长延迟下枕叶激活下降而腹外侧前额叶(VLPFC)与下颞皮层激活上升,有的报道内侧颞皮层增加,还有的报道内侧颞增加而下颞减少。方法学上,两篇较早的研究用 PET,无法把维持与再认分开;后来那篇 fMRI 研究用的是块设计,不能专门考察成功再认的活动,只能把任务成绩作为协变量处理——而延迟越长成绩必然越差,这个混淆在 block 设计里几乎无法剔除。
研究思路
作者选择事件相关 fMRI 设计来逐一克服上述方法学限制:按试次建模就能区分成功与失败试次、排除长延迟下任务成绩变差带来的混淆,并把分析聚焦在再认相。材料采用 CANTAB 电池的 DMTS 改版,用复杂抽象图形作记忆目标,尽量压制基于言语编码的记忆策略。任务逻辑是"改变延迟、固定其余":操纵的唯一负荷变量是编码到再认之间的保持时长(同时呈现、4 s、12 s),图像复杂度与选择项数目恒定,使激活差异尽量归因于延迟本身。分析上先做三个延迟条件下成功再认的共同激活连接分析确认网络,再用带方向约束的趋势分析(同时呈现 <4 s <12 s 与 > 关系两条线)找出随延迟单调变化的脑区,最后以事后两两对比和"正确 vs 错误"对比深化解释。
方法
被试为 14 名右利手健康志愿者(9 男 5 女,平均 26.1 岁),NART 估计智商均值 114。每试次四相(图 1):编码相呈现复杂抽象图形(矩形分为四个象限,各象限形状与颜色不同)5000 ms;保持相注视中央十字、按要求在记忆中维持样本,延迟为 0(样本与选择项同时呈现)、4000 或 12000 ms;再认相在屏幕四方呈现四个图形 6000 ms,其中一个与样本相同,一个全新干扰项(D-Error),一个颜色同而形状分布异(S-Error),一个形状同而颜色分布异(C-Error),被试用右手摇杆按对应方向作答;为防止只编码单个象限的策略,四个选择项都与样本共享一个随机象限;末相注视延迟把每试次的试次间(编码)间隔统一拉平到 27000 ms,同时随机化试次间刺激间隔。共 42 试次,每延迟条件 14 个,伪随机分入约 10 分钟的两次运行。成像用 GE Signa 1.5T 梯度回波 EPI(22 层近轴位、层厚 7 mm、TR 2 s、TE 40 ms,每运行 324 个体积),采用抖动采集序列优化 BOLD 采样;分析与统计推断用 XBAM v3.4:高斯平滑 5 mm,γ 函数(峰位 4–8 s)拟合 BOLD 响应并以加权和容许逐体素峰时差异,以小波重排置换法建立零分布,簇水平推断保证全图假阳性簇期望小于 1;编码与保持作为独立条件显式建模以排除共线性混淆;连接分析取体素 P=0.001、簇 P=0.01,趋势与组间分析取体素 P=0.05、簇 P=0.0025。"正确 vs 错误"事后对比仅限 12 s 条件(唯一错误数足够的条件;4 名该条件下零错误的被试被剔除,实际纳入 10 人)。
主要结果
- 行为上,正确率随延迟下降(同时呈现 0.92 → 4 s 0.86 → 12 s 0.81;F=12.38,P<0.001),反应时随延迟上升(2.32 → 2.50 → 2.66 s;F=7.33,P=0.001;表 1、图 2)。错误类型与延迟有交互(F=20.53,P<0.001):S-Error(形错色对)数量随延迟增加,C-Error、D-Error 与不作答保持稳定,提示被试更多靠言语标签编码颜色(图 3)。
- 三延迟条件共享的成功再认网络(连接分析,图 4):双侧下/中额回与脑岛、前扣带背侧、楔前叶、下/中枕回、梭状回与小脑皮层,另有右侧脑干—海马回—尾状核簇(表 2)。
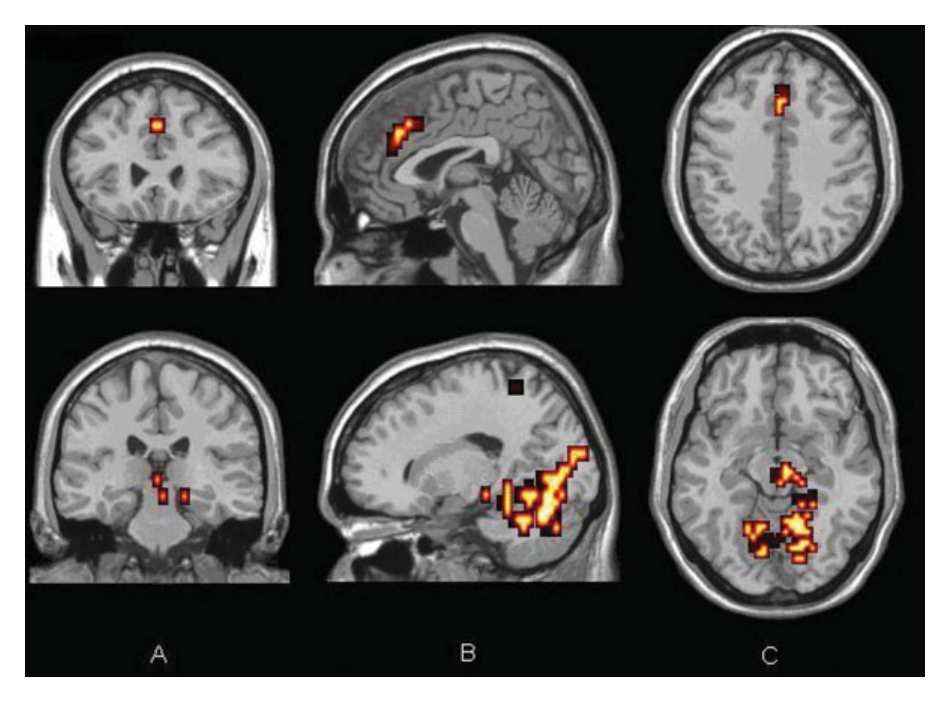
- 趋势分析显示随延迟延长、再认时双侧海马回、舌回内侧部与前扣带背侧、以及左侧楔叶—楔前叶区激活单调上升;相反,双侧腹侧颞-枕皮层(梭状回、下枕回为主)与中枕回激活随延迟衰减(表 3、图 5、图 6)。
- 两两对比补充细节:4 s 与 12 s 条件相对同时呈现都在左海马旁回—海马—梭状回表现更强的激活,且 12 s 更广泛;只有 12 s 条件还伴随双侧前扣带与右侧额上回的额外增强(表 4)。12 s 对 4 s 的直接对比显示近右侧红核并向右海马回延伸的簇、双侧前扣带与右额上回(表 4)。
- 12 s 条件内成功相对失败试次:双侧前岛、下额回腹外侧部、前扣带嘴部、楔前叶更强,另见右下颞回(表 5)——把额叶扣带节点也绑定到"成功"而非仅仅"在任务中"。
- 一个与假设相反的结果值得单列:VLPFC 的激活虽在所有延迟条件稳定存在(并预测成功),但其幅度与延迟长度没有任何关系(图 5 左列)。
图注解读
图 1 · 实验范式示意
原文图注:Figure 1. Representation of experimental paradigm. [Color figure can be viewed in the online issue, which is available at www.interscience.wiley.com.]
按编码—保持(0/4/12 s)—再认—注视四相画出单个试次的时间线,是理解"延迟变量到底操纵了什么"的入手图。它支撑方法部分对任务结构的描述,尤其说明"同时呈现"条件并非没有编码相,只是样本与选择项同屏。
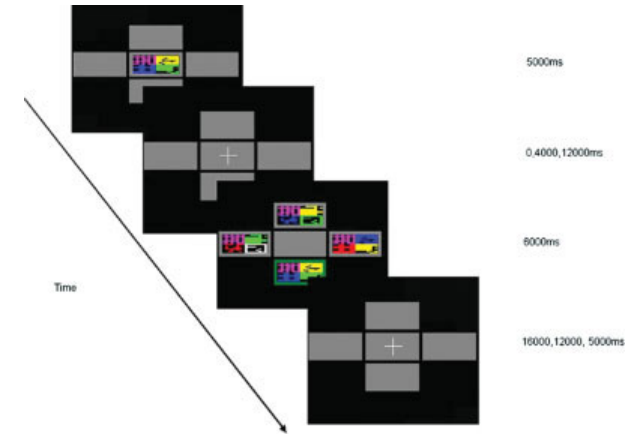
图 2 · 各延迟条件的正确率与反应时
原文图注:Figure 2. Response accuracy and latency for each delay condition.
呈现三条件的行为双指标:随延迟增加,正确率由 0.92 降至 0.81,反应时由 2.32 s 升至 2.66 s,均为显著的单调变化(对应表 1 的 F 值)。这张图的意义在双重性:它既证明延迟确实提高了负荷,也在视觉上提醒读者——正是这种成绩下滑使"成功试次"建模成为必要,否则难度混淆会污染成像结果。
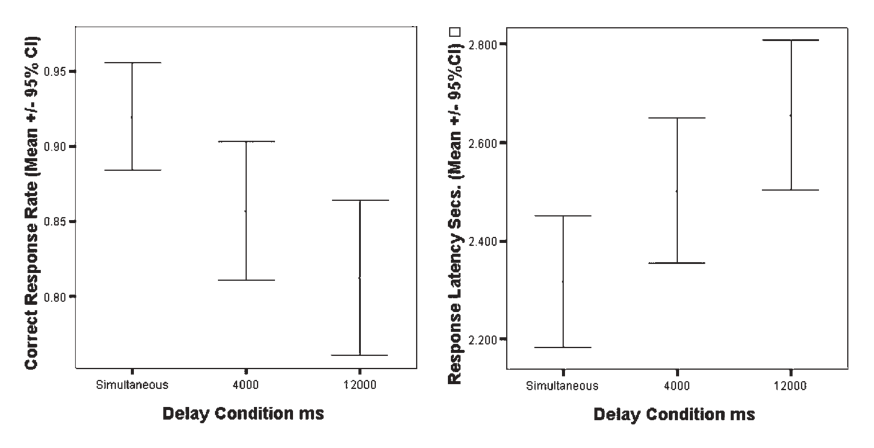
图 3 · 各延迟条件的分型错误数
原文图注:Figure 3. Mean number of errors by subtype for each delay condition. [Color figure can be viewed in the online issue, which is available at www.interscience.wiley.com.]
按 S-Error(形错色对)、C-Error(色错形对)、D-Error(全新干扰)与不作答四种亚型分别给出均值:只有 S-Error 随延迟显著上升。作者据此推断颜色信息由于容易挂上言语标签而在延迟中维持得更好,形状信息则衰减更快——这为下文讨论编码策略铺垫。
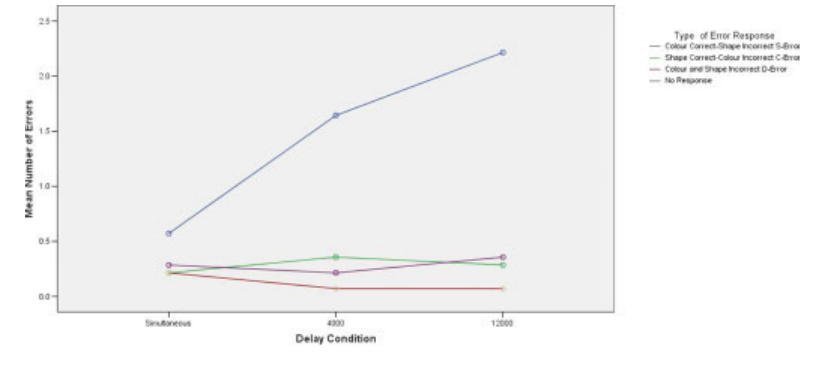
图 4 · 三延迟条件共有的成功再认激活
原文图注:Figure 4. Conjunction analysis of activation at correct recognition, common to the three lengths of preceding maintenance delay. Clusters are shown bilaterally in the inferior and middle frontal gyri, the anterior cingulate gyrus, the precuneus, the inferior and middle occipital gyri and the fusiform gyri. Results are superimposed onto a 3D rendered cortical surface of a template brain. (A) Coronal, (B) sagittal and (C) axial views. Voxel P = 0.001 and cluster P = 0.01, giving less than one false positive cluster. [Color figure can be viewed in the online issue, which is available at www.interscience.wiley.com.]
把三种延迟下成功再认激活取最小值(连接推断)后叠加到模板脑的三维表面,给出冠状、矢状、轴位三个视角。读图时注意:这些簇代表的是"无论累积了多久的记忆都必须动员"的骨架网络,VLPFC、ACC、枕颞结构都在其中。它支撑结果第 2 条与工作假设 i。
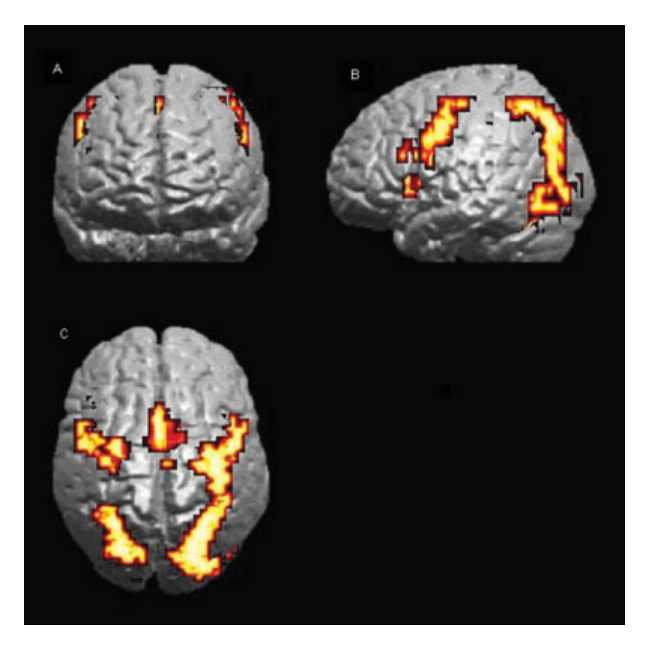
图 5 · 下额与下/内侧颞皮层在各延迟条件间的神经响应
原文图注:Figure 5. Neural Response across delay conditions in inferior frontal and inferior and medial temporal cortex. [Color figure can be viewed in the online issue, which is available at www.interscience.wiley.com.]
并列呈现关键 ROI 的逐条柱状或参数曲线:VLPFC 的响应高度在三个延迟间基本持平,下颞响应随延迟递减,内侧颞响应随延迟递增。一图读出"分离"的对比——这正是全文最有信息量的地方,支撑结果第 3 与第 6 条。
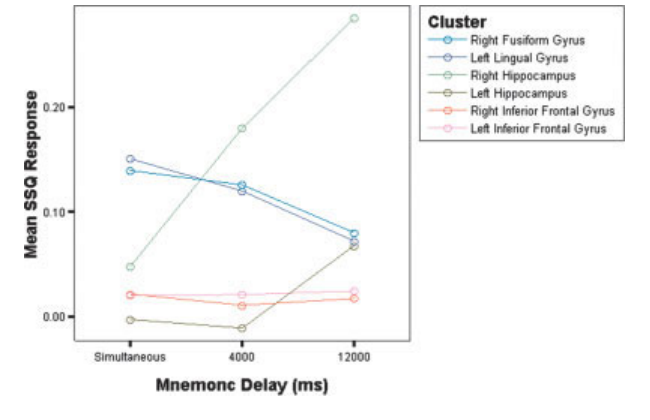
图 6 · 前扣带与内侧颞叶激活随保持延迟递增
原文图注:Figure 6. Increasing activation in the anterior cingulate (upper panel) and in the medial temporal lobe (lower panel) with increasing maintenance delay across conditions (12,000 ms > 4,000 ms > simultaneous). Results are superimposed onto a standard template brain.
把趋势分析中"单调递增"的两处代表——前扣带背侧与内侧颞叶——叠加到标准模板及相关视图,明确标注不等式方向(12 s > 4 s > 同时)。它支撑结果第 3 条的"上升侧",是文题的直观证据。
讨论
作者的论证分额叶、颞叶两条线展开。VLPFC 在全部延迟下稳定激活且与延迟时长脱钩、又在正确试次中更强,作者据此把它归入"策略组织与反应选择"的角色——管理他处维持的物体信息、抵抗干扰——而非记忆基质本身,并援引额叶病灶不影响延迟依赖任务成绩的文献支持;激活"在短延迟即饱和"也是一种可能。前扣带背侧随延迟逐步增强,但作者同样不认为它是记忆储存器:结合 Bunge 等在联想提取任务中的发现,更长延迟意味着记忆更不准确、对再认把握更依赖熟悉感,ACC 的增强更可能反映集中注意与记忆冲突管理、反应预期与选择。颞叶内部则出现有趣的反差:下颞皮层作为物体表征的层级顶端、知觉与 WM 的整合点,活性随延迟衰减,但电生理早有熟悉度的"抑制"与"增强"两类神经群,成像上图像熟悉本身即可降低该区活动,因此衰减未必意味着退出网络;而内侧颞皮层(海马回、海马旁回)随延迟增强则被解读为时间依赖的成分——既然被试在编码时无法预判延迟,编码与初始保持的需求应当各条件相同,延迟越长意味着颞叶在维持与随后提取中的相对贡献越大,作者联想到内嗅—海马的序列相关活动模型、"情节缓冲器"假说以及"短超期视觉缓存(IT)—动态复述与检索系统(MT)"的 WM 分层隐喻。其他区域(外侧小脑、枕叶、顶叶联合皮层)活性随延迟衰减且在同时条件下最强,被解释为同时条件额外动用了尾侧视觉注意与基于知觉记忆的超短期存储环路。作者坦承设计局限:改变延迟也改变了编码、保持、再认三个认知事件之间的时间关系与共享方差,虽然用独立建模与大间隔随机化来对冲;12 s 以上的延迟未考察,内侧颞叶与长时记忆的关系只能推测;因为四个选项中有 1/4 的瞎猜正确率,作者以"只在成功试次上推断、瞎猜率各条件相同"做了防御。
一句话总结
依我看,这篇文章最扎实的贡献是用事件相关设计把"再认时的脑活动"从"维持多久的记忆"里解耦出来,展示了一个随延迟上行的内侧颞叶—前扣带轴和一条随延迟能量衰减的下颞轴;把衰减的下颞皮层解读为"熟悉感神经群的反转平衡"虽有几分投机,但"WM 的边缘随时间向长时记忆系统让渡"这笔总账,十几年后看依然站得住。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[] - Fig4: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig5: 提取质量
good,对齐度full,识别面板[] - Fig6: 提取质量
good,对齐度full,识别面板[]