本研究利用实时眼动追踪技术直接检验了时间连续性假说,即视觉系统依赖“短时间内相继出现在视网膜上的图像大概率属于同一物体”这一自然统计特性构建不变性表征。研究人员在猕猴自由观看过程中,于眼跳发生的瞬时置换物体身份(将物体 A 替换为物体 B)。经过一至两小时的被动暴露,成年猕猴下颞叶皮层(IT)神经元的位置容忍性(position tolerance)发生了可预测的改变,为高级视觉皮层不变性表征的形成提供了单细胞水平的实验证据。
研究背景
物体在视野中移动会引起视网膜成像位置的改变,但通常不影响观察者对物体身份的稳定识别。下颞叶皮层神经元同时具备物体选择性与一定程度的位置容忍性,被视为支持该能力的关键神经基础;然而,成熟视觉系统这一特性的发育与维持机制尚待阐明。计算理论提出,自然视觉经验中的时间连续性可作为无监督学习信号:物体的物理存在具有时间持续性,而眼跳会频繁改变其在视网膜上的投影位置。若神经系统能够关联时间上紧密相邻的图像输入,便可在缺乏外部监督标签的条件下,逐渐将不同位置的投影归并为同一物体的表征。
该假说此前虽得到计算模型与人类心理物理学实验的支持,但在高级视觉皮层中一直缺乏直接的电生理操纵证据。由辨别训练诱发的神经选择性改变往往混合了奖赏、任务规则及注意力的调节效应,单纯对比熟悉与新异刺激难以离析时间连续性本身的独立贡献。更具判别力的检验方式是主动打破时间统计规律:在动物视线转向某一物体时将其替换,使外周位置的图像与中心凹处的另一物体产生错误的时间绑定。若神经元仅在发生置换的位置上改变物体偏好,而对照位置与未暴露物体保持稳定,则能有效排除普遍性适应、神经记录漂移或注意波动的干扰。
本研究将身份置换操作嵌入猕猴的自发眼跳中,通过交替进行无监督暴露与独立测试,追踪成年下颞叶神经元反应在数小时内的动态变化。测试阶段采用随机呈现的刺激序列及与物体辨别无关的行为任务,将暴露期间的关联学习与测量时的任务需求相分离,以此考察日常自由观看经验对位置容忍性的持续塑造作用。需要指出的是,该实验重点探讨时间关联对既有表征的修饰,并未直接定位发生突触可塑性的具体层级;眼动反馈或注意门控仍可能参与调节该过程,且神经反应变化与动物整体识别行为之间的定量映射仍需进一步研究。
研究思路
研究聚焦于视觉不变性中最基本的形式——位置容忍性,并设计了在线追踪方案:使动物在被修改的视觉输入环境中进行约两小时的自由观看,期间周期性抽测 IT 神经元的位置容忍性变化。实验的核心在于利用眼跳期间的视觉抑制掩蔽刺激置换:刺激最初出现在注视点上方或下方 3° 的外周位置,猕猴自发眼跳将其带入视野中心;在“正常暴露”试次中物体保持不变,而在“置换暴露”(swap exposure)试次中,物体在眼跳过程中被替换为另一物体,使外周的物体 A 与中心凹处的物体 B 在时间上相继呈现。理论预期:偏好物体 P 而非物体 N 的 IT 神经元,其物体选择性(P−N 反应差)应特异性地在置换位置随暴露量递增而减弱甚至反转,而在非置换位置保持稳定。为应对单个 IT 神经元记录时长的生理限制(通常约一小时),研究采用汇聚群体神经元数据的分析策略。
方法
实验在两只成年恒河猴上展开(分别记录 50 与 51 个 IT 单神经元,共 n=101)。分离出具备视觉反应的神经元后,首先从 100 种物体库中筛选出引发强反应的偏好物体 P 与中等反应的非偏好物体 N,随后交替进行两类相位。测试相位(约 5 分钟):P、N(部分神经元增测两个未暴露的对照物体)在中心、上方 3° 和下方 3° 随机短暂呈现,动物执行与刺激无关的任务,确保数据在无注意线索和全随机化条件下采集。暴露相位(约 15 分钟):猕猴自由观看屏幕上间歇出现的刺激,实时眼动追踪确保视网膜投影可控;每个暴露相位包含 100 次正常暴露与 100 次置换暴露,刺激替换发生在眼跳期间(平均潜伏期 108 ms,历时 23 ms)。置换位置在不同神经元间平衡设置(上 3° 与下 3° 各半)。选择性以 P−N 反应差定义(经对比度指数复核一致),以末次与首次测试相位之差 Δ(P−N) 评估变化量。此外,在单只动物上开展了 10 个位点的多单元活动(MUA)记录,连续暴露超过 2 小时以考察长时程效应。统计检验采用单尾配对 t 检验、bootstrap 及置换检验确认。
主要结果
- 位置特异性变化:在 101 个单神经元中,Δ(P−N) 在置换位置显著减小(偏向反转方向),置换位置与非置换位置的差异具有统计学显著性(p=0.005,单尾配对 t 检验),且“位置 × 暴露量”交互效应显著(bootstrap p=0.009;置换检验 p=0.007);同一批神经元在非置换位置的平均反应未见明显改变(图 2、图 3A)。
- 物体特异性:在 88 个同步监测未暴露对照物体的神经元中,对照物体在置换位置的选择性未发生显著改变,且置换物体的选择性变化幅度显著大于对照物体(n=88, p=0.009,图 3B),表明该效应特异于经历暴露的物体对,而非视野位置的一般性敏感性改变。
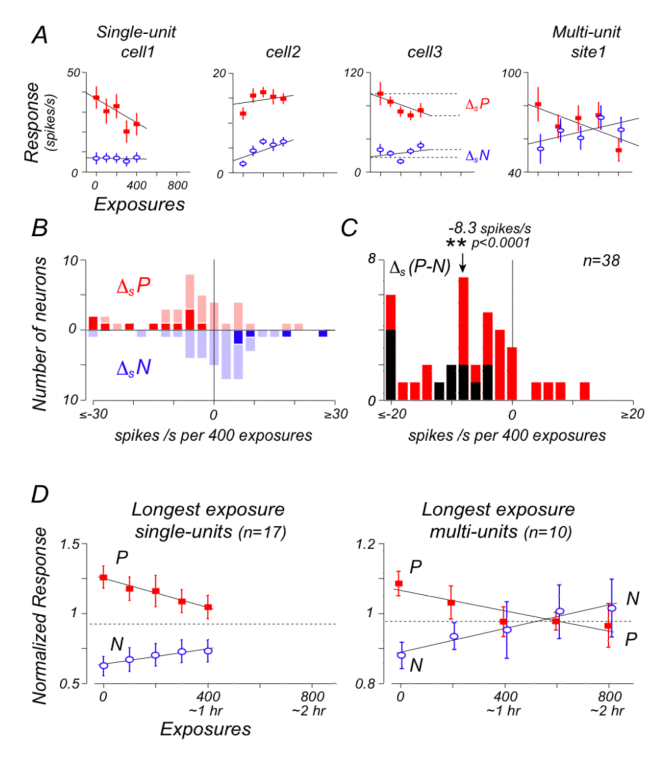
- 变化幅度与时间进程:在置换位置,选择性变化速率约为每 400 次置换暴露(约 1 小时)下降 5 spikes/s(最佳线性拟合斜率为 −5.6 spikes/s/400 次;非置换位置为 0.6),并随暴露量呈单调累积趋势(图 3C)。单神经元记录受泊松放电波动影响,在较短时程内效应较分散;但在长时程暴露的 MUA 记录中表现明确,2 小时暴露后呈现轻度偏好反转(N>P,图 4D)。
- 反应成分与普适性:置换位置的选择性减弱由对偏好物体 P 的反应下降(每 400 次暴露约 −3.0 spikes/s)与对非偏好物体 N 的反应上升(约 +2.3 spikes/s)共同构成(图 4B)。两只猕猴的个体数据均达到显著水平(分别为 p=0.019 与 p=0.0192)。反应变化在刺激呈现后约 100 ms 的早期放电中即可检测,提示其作用于腹侧流的前馈反应阶段;测试任务与刺激辨别无关,排除了任务策略驱动的解释。两位置暴露量平衡、测试随机呈现、N 反应上升以及物体特异性等特征共同排除了神经疲劳适应与注意转移的解释。
- 效应量参考:每小时约 5 spikes/s 的变化幅度与已报道的注意力调节量级相当,高于既往长期知觉辨别训练研究中报道的单日改变量;作者推测,自然视觉经验中大量的眼跳转换可能持续参与腹侧流容忍性表征的构建与维护。
图注解读
图 1 · 实验设计与预测
原文图注:Fig. 1. Experimental design and predictions. (A) For each visually responsive neuron encountered, a preferred object (P) and less-preferred object (N) were chosen from a set of 100 objects. We then alternated between a Test Phase and Exposure Phase for as long as we could record from the neuron. In the Test Phase, the neuron's response to P and N was measured with fully randomized images while each monkey performed a task unrelated to the object images (see (14)). In the Exposure Phase, free viewing monkeys spontaneously saccaded to objects that initially appeared either 3° above or below the center of gaze. ……
本图展示实验总体设计:A 展示测试相位与暴露相位的交替流程,以及正常暴露与置换暴露的时序差异(外周物体随眼跳移至中心凹,置换暴露时在眼跳过程中替换为另一物体;每个暴露相位包含 100 次正常暴露与 100 次置换暴露,物体尺寸为 1.5°);B 展示各神经元的暴露设置,交叉箭头表示置换位置上引入的人为时序关联,非交叉箭头对应常规时序;C 给出理论预期,即置换位置的选择性随暴露量增加而特异性减弱,非置换位置维持稳定。本图对应主要结果的基本设计逻辑。
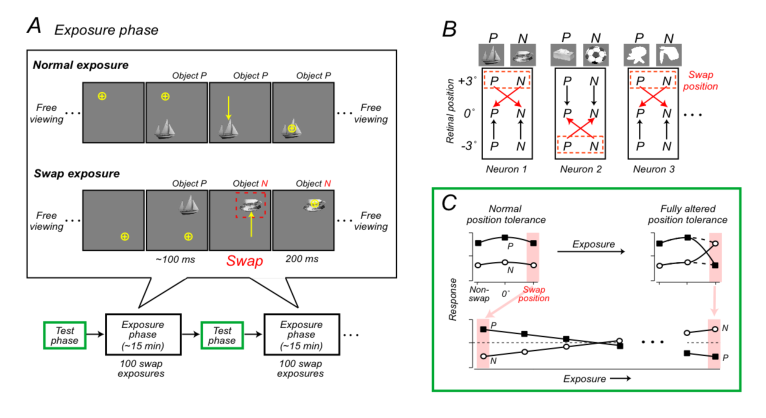
图 2 · 群体物体选择性的变化
原文图注:Fig. 2. Change in the population object selectivity. (A) Mean population object selectivity at the swap and non-swap position, and for the control objects at the swap position. The control objects were never shown to the animals during the Exposure Phase. Neuronal responses to all objects and positions were obtained during fully-randomized testing in the Test Phase (see Fig. 1). Each row of plots show neurons held for different amount of time, (e.g. the top row shows all neurons held for over 100 swap exposures -- including the neurons from the lower rows; the second row shows the neurons held for over 200 exposures; etc). ……
A 栏按暴露量分层展示神经元群体在置换位置与非置换位置的 P−N 选择性变化:随着置换暴露次数增加,置换位置的选择性逐渐趋近于零,非置换位置保持恒定;同栏中的未暴露对照物体在置换位置未见显著改变。B 栏展示 10 个 MUA 记录位点的对应结果,其变化趋势与单细胞数据一致。C、D 栏分别给出 Δ(P−N) 的分布直方图,置换位置的分布整体向负向偏移,而非置换位置的均值接近于零。本图支撑主要结果第 1、2 点关于位置特异性与物体特异性的结论。
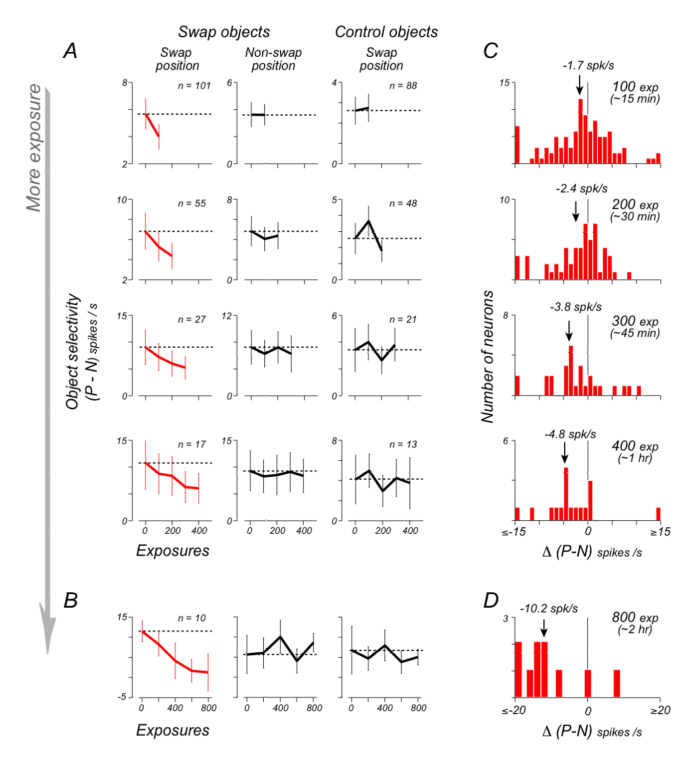
图 3 · 位置特异性、物体特异性与时间进程
原文图注:Fig. 3. Position-, object-specificity and time course. (A) Mean object selectivity change, Δ(P-N), at the swap, non-swap, and central (0°) retinal position; data from all neurons are included (by using each neuron's last available Test Phase, mean ~200 swap exposures). Δ(P-N) was computed as in Fig. 2c. The insets show the same analysis performed separately for each monkey. (B) Mean object selectivity change for the (exposed) swap objects and (non-exposed) control objects at the swap position. ……
A 栏对比了三个视网膜位置(置换、非置换及中心 0°)的平均选择性变化 Δ(P−N),并分别列出两只猕猴的独立结果,显示负向改变特异性出现于置换位置,并在两只动物中均得到复现。B 栏对比了置换位置上暴露物体与未暴露对照物体的变化,仅暴露物体表现出显著减小(p<0.05,单尾 t 检验)。C 栏为选择性变化随置换暴露次数累积的时间进程,单神经元(n=101)与 MUA(n=10)数据重合度较高,零截距线性回归斜率为每 400 次暴露 −5.6 spikes/s(非置换位置为 0.6),反映出效应的稳定性与累积性。本图对应主要结果第 1、3、4 点。
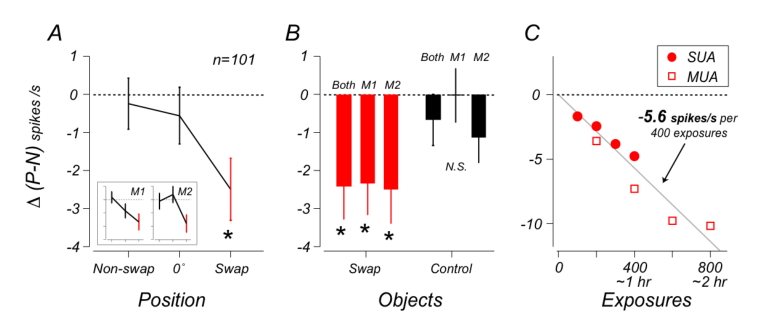
图 4 · 对物体 P 与 N 的反应分别如何改变
原文图注:Fig. 4. Responses to objects P and N. (A) Response data to object P and N at the swap position for three example neurons and one multi-unit sites as a function of exposure time. The solid line is the best-fit linear regression. The slope of each line (ΔP and ΔN) provided a measure of the change in response to object P and N for each neuron. Some neurons showed a response decrease to P, some showed a response enhancement to N, while others showed both (see examples). ……
A 栏展示三个代表性神经元及一个 MUA 位点对 P 和 N 物体反应随暴露时间的变化趋势与线性回归拟合,反映出个体神经元在变化构成上的差异(部分表现为 P 反应下降,部分表现为 N 反应上升,或两者兼具)。B 栏为 ΔP 与 ΔN 斜率的群体直方图(每 400 次暴露分别约为 −3.0 与 +2.3 spikes/s),显示群体选择性减弱由 P 反应降低与 N 反应增强共同介导,排除了单纯疲劳性衰减的可能。C 栏给出单神经元选择性变化斜率的分布(32% 的位点达到单点统计显著;非置换位置均值为 −1.7 spikes/s 且未达显著)。D 栏展示长时程记录神经元/位点的归一化时程,显示在 2 小时暴露后选择性可越过零点呈现轻度偏好反转。本图对应主要结果第 3、4 点。
讨论
研究人员将该现象命名为无监督时间容忍学习(unsupervised temporal tolerance learning, UTL),表明位置容忍表征受视网膜图像之间的时间连续性调节。作者排除了疲劳适应与注意力偏向等混杂因素,并讨论了该现象与既有 IT 可塑性文献的关联:已知 IT 神经元可在奖励驱动的配对联结任务中对时间相伴的刺激形成相似响应(如 Sakai & Miyashita, 1991),而本研究中的变化具有明确的位置特异性,完全在无外部奖励监督的自由观看状态下发生,且在约 200 ms 的自然注视时序内形成。
在机制与边界方面,现有数据尚不能完全排除眼动准备信号或眼跳相关注意机制对可塑性的潜在门控作用;人类知觉实验亦提示单纯的时间相伴可能不足以诱发同等程度的学习效应。此外,实验未直接界定突触改变的具体解剖层级,腹侧通路中的多个中继区域均可能参与其中。在理论层面,时间连续性模型可通过类 Hebb 学习或脉冲时序依赖可塑性(STDP)实现。研究指出,类似的操作已在人类心理物理学中诱发位置容忍知觉的对应改变(Cox 等,2005),提示该机制不仅限于非人灵长类;同时,在成年动物已经具备成熟视觉经验的前提下,每小时约 5 spikes/s 的变化率表明成年腹侧流的位置容忍表征仍保留了显著的可塑性。
一句话总结
本文通过在猕猴眼跳过程中引入微小的时间置换操作,在单细胞水平上证实了自然视觉经验中的时间连续性能够持续塑造高级视觉皮层的位置容忍表征;每小时约 5 spikes/s 的调节速率表明,下颞叶的不变性表征并非发育完成后完全固化的静态结构,而是在无监督视觉统计输入下保持动态更新的可塑系统。