一句话定位:这篇文章研究知觉闭合(perceptual closure)——即在视觉信息残缺时仍把图形知觉为完整物体的过程——在皮层源水平上的时空动态。作者让被试观察 Mooney 两色人脸,结合脑磁图(MEG)与时频分辨的 beamformer 源定位追踪 60–100 Hz 高频 gamma 活动,并用 fMRI 独立检验源位置。研究表明,闭合过程伴随从“由明暗线索提取三维结构”与“后顶叶记忆模板”的早期交互开始,至 200–400 ms 延伸到梭状回面孔区。对关注识别发生时程以及 gamma 频段整合机制的读者而言,该研究提供了动态电生理记录样本。
研究背景
残缺图形有时只提供少量可辨线索,观察者却能突然将其看成一个完整对象,这种知觉闭合现象为研究感觉输入与既有知识如何共同支持识别提供了切口。早期碎片图形研究在枕颞脑电中发现约二百三十至四百毫秒的闭合相关成分,并将其来源联系到侧枕叶复合体。另一条研究路线关注伽马振荡,认为节律活动可能反映分散特征整合为连贯物体的过程。这些发现提示了识别相关的时间窗与候选机制,但头皮成分并不能完整说明参与脑区的先后变化,静态功能成像也无法单独回答,从不充分的输入到有意义对象的转换怎样随时间展开。
Mooney两色人脸使这一问题更具体。局部黑白斑块缺少通常的人脸细节,却可借助明暗配置被整体理解为面孔;倒置并打乱后,这种知觉明显减弱。已有研究分别把从明暗恢复三维结构联系于尾侧下颞回,把记忆模板匹配联系于后顶叶,并发现梭状回面孔区对这类图像有反应。未解决的是这些区域之间的时间关系:类别相关区是否从一开始就占据主导,还是在形状结构与既有知识的早期加工后才出现更明显的参与。匹配亮度、空间频率等属性有助于控制部分低级差异,但倒置和重排仍改变图像结构,不能因此把条件差值视为完全纯净的闭合过程,也需考虑寻找面孔的努力及判断时间。
本文结合事件相关磁场、时频分析和分时窗源定位,追踪正立与倒置打乱刺激下的活动差异,重点检查高频伽马源是否呈现从尾侧下颞及顶叶到梭状回的时序变化。独立被试的功能磁共振数据用于对照源位置及差异方向,为脑磁图逆解提供另一种测量支持。其目标是把闭合相关活动展开为空间与时间的证据,而不只是再次报告面孔区激活。解释时仍须区分源功率变化与区域间直接交互:先后或共同活动不能证明信息传递方向,更不能单独证实记忆模板的内容。波束形成方法还可能漏检相关源,重叠时间窗限制精确时序判断;功能磁共振未覆盖所有区域,因而无法验证全部源定位,所得偏侧化也不宜被直接解释为稳定的半球分工。
研究思路
设计的关键在于刺激材料的配对:同一批 40 张 Mooney 人脸以正立方向呈现时可被知觉为人脸;倒置并打乱(沿背景移动重排黑白斑块)后,即使亮度与空间频率等低级属性匹配,通常也不再被知觉为人脸。因此,正立与倒置条件的对比在低级视觉输入层面实现了相对平衡,主要保留闭合加工的差异。作者的三层分析策略对应三个具体问题:首先通过事件相关磁场(ERF)检验 MEG 信号中是否存在对应于 EEG 闭合指数的成分;随后在传感器层面通过时频分析确定承载该差异的频段(由此选定 60–100 Hz 作为源分析区间);最后使用具备时间分辨率的 beamformer 将高频 gamma 功率逐窗(200 ms 窗宽,50 ms 步长)投射至皮层源空间,重建脑区激活的动态时序。此外,研究引入独立被试的 fMRI 实验进行源定位比对,以评估 beamformer 在病态逆问题与相关源干扰下的解算稳定性。
方法
MEG 实验被试为 15 名健康志愿者(11 名女性,平均年龄 25.4±5.6 岁),用 275 通道全头系统以三阶轴向梯度计配置记录,采样率 600 Hz;头动超过 5 mm 的运行被剔除。fMRI 实验另有 19 名被试(8 名女性,23.5±2.6 岁)。刺激共 160 张(40 张原始 Mooney 人脸×正立、垂直镜像、水平镜像与倒置打乱版本),呈现 200 ms、试间间隔 3500–4500 ms 随机,被试每次按键报告是否看到脸,共 6 个 run(每个 run 各 45 个正立与 45 个倒置打乱刺激);fMRI 采用快速事件相关设计(4 个 run,每 trial 4 s,间隔固定 3800 ms 加 fixation jitter)。分析只用正确试次(face 条件的命中与 non-face 条件的正确拒绝);三种分析依次为:ERF 的 face−non-face 差异(200–350 ms 窗口,聚类置换检验校正);Morlet 小波时频表征(25–150 Hz、每 1 Hz 步进);以及频域 beamformer(中心频率 80 Hz、4 个 Slepian 锥度对应约 20 Hz 平滑、双态比较、common filters、单试次伪 t 统计加二阶置换检验 p≤0.01)。源格网以 MNI 模板上 10 mm 各向同性格点生成后逐被试扭到个体解剖,配合单壳层体积导体模型;fMRI 数据做 deconvolution 与 faces−non-faces 线性对照,用于与 MEG 源位置比对。
主要结果
- 行为表现:两类刺激的辨别正确率接近(人脸 81.1±5.8% vs 非人脸 82.5±14.3%,p=0.78),但非人脸条件的反应时显著更长(801±144 ms vs 724±132 ms,p=0.004),表明判断刺激中不存在人脸需要更多加工时间。
- MEG 中检出磁闭合成分:人脸与非人脸条件的 ERF 差异在 250–300 ms 处最为明显,主要分布在双侧枕颞部传感器,与 EEG 研究中 230–400 ms 的 Ncl 成分时程相近;最小范数源定位将差异源定位在楔前叶、中央前回、下顶叶、中枕回、中颞回、颞上回与舌回(图 2E)。
- 传感器层面的 gamma 响应差异:两种条件均诱发持续的高频 gamma 振荡(60–100 Hz,约 100–300 ms);在基于聚类的非参数检验中,两条件差异在额中央区域表现为 200–350 ms 功率下降更明显(以低 gamma 为主,两条件均相对基线降低,人脸条件下降幅度更大);经 FDR 校正后,200–250 ms 颞枕传感器显示人脸条件诱发更高的低频与高频 gamma 功率(图 3),与既往电生理研究(如 Rodriguez et al., 1999 约 230 ms 的报告)相一致。
- 源水平的时序与两阶段结构:早期(0–200 ms)尾侧下颞回(cITG)与后顶叶皮层共同激活,右侧上顶小叶/楔前叶及左侧角回/缘上回的功率在人脸条件更强,同时伴随右侧颞上回与双侧前下颞的增强;在闭合时段(200–400 ms),左侧 cITG 的激活向内侧延伸至梭状回(FFA),左侧额下回亦在此时段表现出特异性增强;250 ms 之后(尤其是 350 ms 起),非人脸刺激反而在右侧额中回、额下回、前运动皮层、初级视皮层与前扣带引起更强的激活(图 4、表 1)。
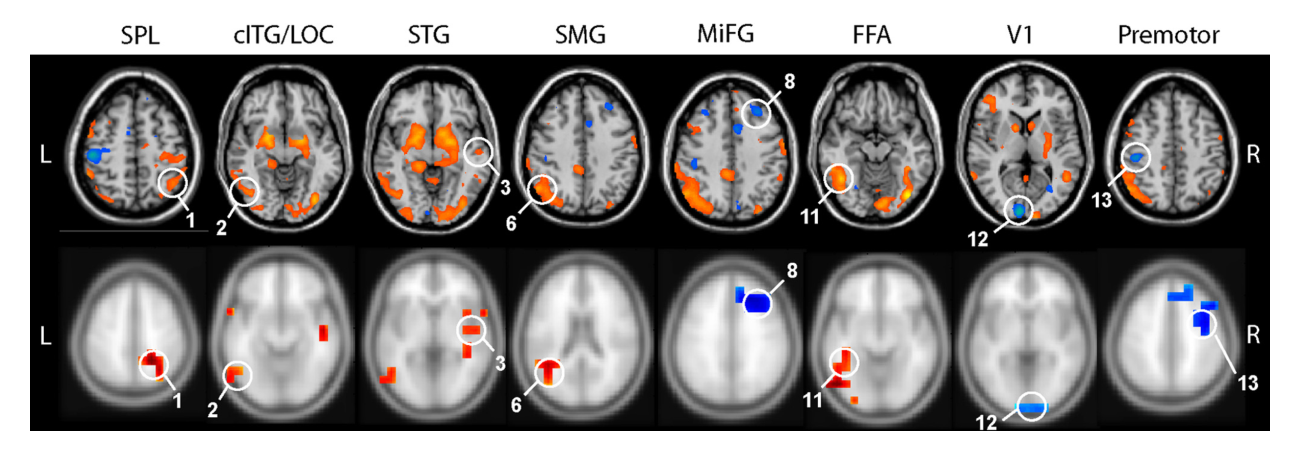
- fMRI 独立验证:在 fMRI 扫描覆盖的所有解剖区域内,MEG beamformer 与 fMRI 测得的差异激活在空间位置与激活极性(人脸>非人脸还是非人脸>人脸)上保持一致(图 5、表 1);多数区域在 fMRI 中呈双侧激活而在 MEG 中呈单侧,作者认为与 beamformer 在面对高度相关的对称源时可能存在的抑制或阈限效应有关。
图注解读
图 1 · Mooney 刺激样例
原文图注:Figure 1. Examples of upright (A) and inverted-scrambled (B) Mooney face stimuli.
这张图交代了实验的核心对照材料:(A) 为正立 Mooney 人脸,(B) 为倒置打乱版本。二者只是黑白斑块的重排,低阶亮度与空间频率匹配,但只有 (A) 能被知觉为脸。理解后续所有"face 条件 vs non-face 条件"的差异都建立在这对刺激上。
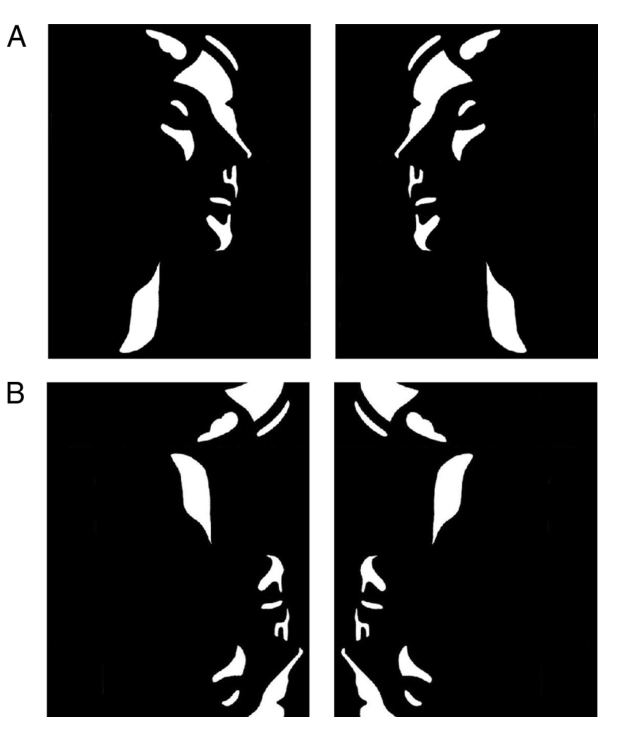
图 2 · 传感器布置与事件相关磁场
原文图注:Figure 2. A, 3D arrangement of the 275 MEG sensors around the subject's head. B, Plotting conventions for 2D sensor-level topographies.…… C, Raw, baseline-corrected event-related field topographies for the face (top row) and the non-face (bottom row) conditions. D, Corresponding event-related field traces for all sensors. Red, Non-face condition; black, face condition. E, Significant differences between event-related magnetic fields in the face minus the non-face condition. Top row, Sensor-level topographies of t values over time. Middle row, Sensor-level topographies masked by a statistical significance mask (p ≤ 0.05 corrected). Bottom row, Statistical differences between the face and non-face conditions for minimum norm source amplitude estimates (p ≤ 0.01, uncorrected) for signals averaged from 250 to 300 ms. White circles indicate significant clusters……
(A)(B) 先立坐标约定——之后的二维皮层地形图都按这套共配准方式读;(C)(D) 给出两条件的原始 ERF 地形与全传感器波形,脸(黑)与非脸(红)在 250–300 ms 段开始分叉;(E) 是关键面板:t 值地形、显著性掩码地形加最小范数源定位(250–300 ms 平均),源落在楔前叶、下顶叶、中/上颞回等处。这张图支撑主要结果第 2 条——MEG 磁闭合并指数的存在与其初始源分布。
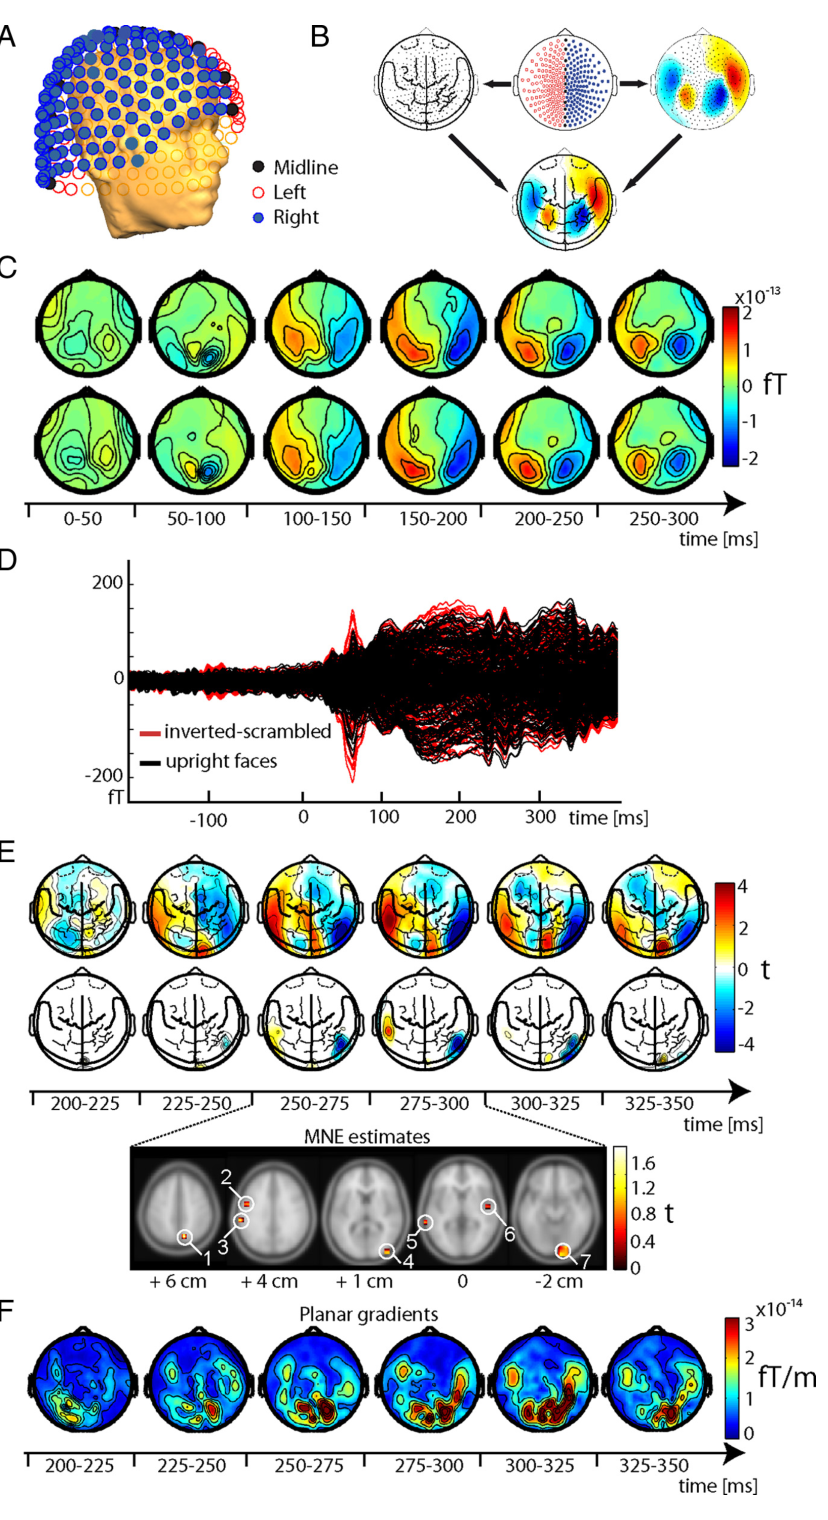
图 3 · 时频功率的统计地图
原文图注:Figure 3. Statistical analysis of power changes in response to upright Mooney faces (A), inverted Mooney faces (B), and for the difference between upright and inverted stimuli (C). All data represent grand averages or statistical analysis across all subjects. The top part of each panel shows the temporal evolution of the topography of the statistical analysis; bottom, each panel contains power spectra and TFRs for specific sensors. Topographies, A, B: Significant differences between the respective Mooney stimulus condition and the 0.5 s prestimulus baseline, separately for the lower (25–60 Hz) and the higher (60–120 Hz) gamma band…… C: Significant differences between the face and the non-face condition. Top row, Power differences masked by the significant cluster that resulted from the nonparametric cluster-based statistical testing. Blue denotes higher activation for the non-face condition compared with the face condition……
读法:A、B 面板上部是"相对基线被激活"的时空地形(红为增强、蓝为相对基线减弱),下部是从代表性传感器取出的功率谱与 TFR;C 面板是(face − non-face) 差异,聚类校正得到的显著效应是额中央区脸条件更弱的功率(蓝色),FDR 校正后则显现出 200–250 ms 颞枕区脸条件更高的 gamma。正因为聚类检验只留下一个显著效应,作者才把条件差异的"正面证据"留给了时间窗上正好落在闭合并区间的颞枕 gamma 增强——这张图支撑主要结果第 3 条,也解释了感觉层面证据为何显得"复杂"。
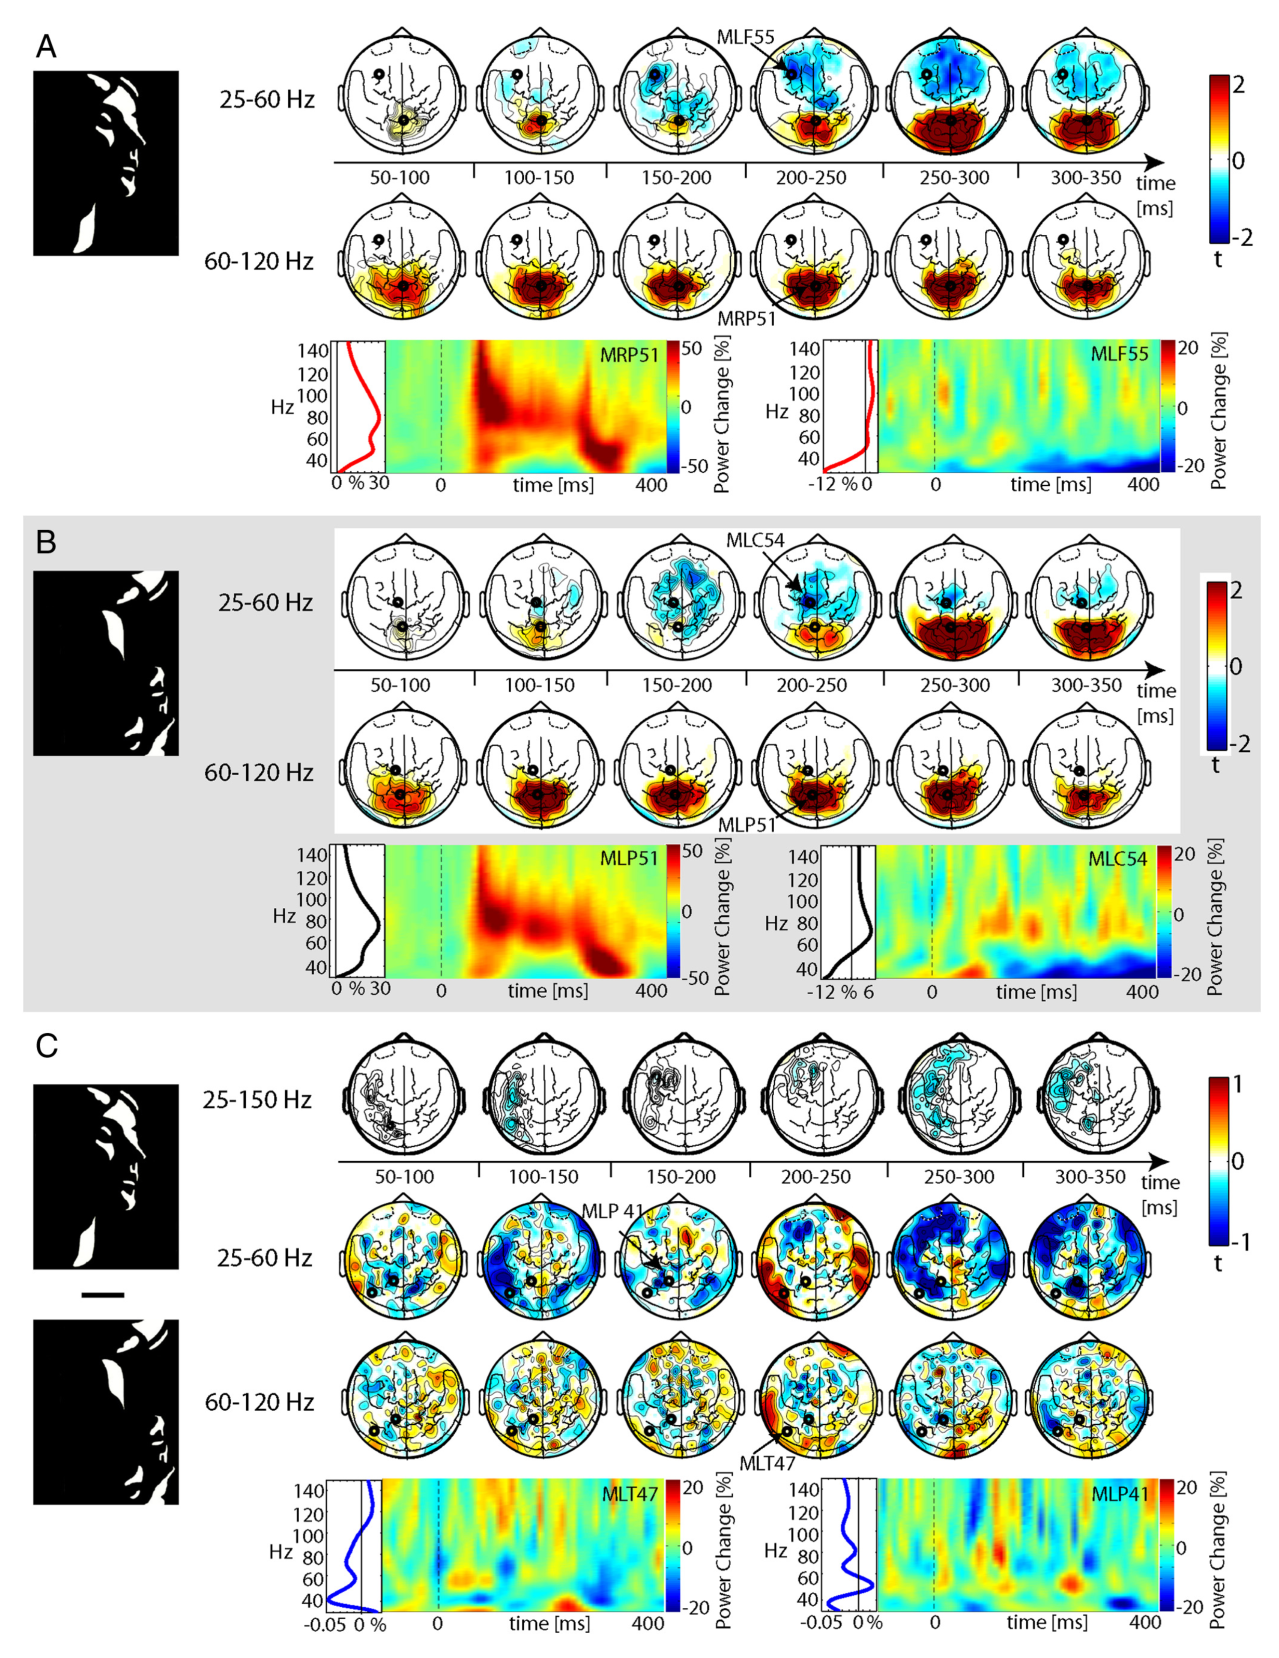
图 4 · 80 Hz 源功率差的逐窗脑切片图
原文图注:Figure 4. Differences in source power at 80 Hz between the face and the non-face condition (t values masked by p ≤ 0.01, uncorrected). Time intervals are plotted from top to bottom, and consecutive brain slices are plotted from left to right for each time interval (slice distance, 20 mm) in neurological convention. Each cluster is marked on one slice per time interval, with the circles representing the center of each cluster (1–14). Red clusters represent stronger source power for faces; blue clusters represent stronger source power for non-faces. 1, Superior parietal lobe; 2, cITG; 3, superior temporal gyrus; 4, right aIT; 5, left aIT; 6, angular/supramarginal gyrus; 7, orbitofrontal cortex; 8, MiFG; 9, right IFG; 10, left IFG; 11, FFA; 12, primary visual cortex; 13, premotor cortex; 14, cingulate gyrus. The coordinates for all clusters are given in Table 1.
这是全文的核心图:每行一个 200 ms 时间窗(自上而下按 50 ms 步进推进),每行内是若干脑切片(读片方向为神经学约定,即图左为被试左脑)。红色代表脸条件源功率更强,蓝色代表非脸更强。按行读下去,可以直观看到文中总结的两阶段时序:前几行的红色集中在 1(上顶小叶/楔前叶)、2(cITG)、6(角回/缘上回)等处,中段的红色出现在 11(FFA/梭状回)与 10(左 IFG),后段转为蓝色(8、9、13、12、14)。它支撑主要结果第 4 条的完整叙事链。
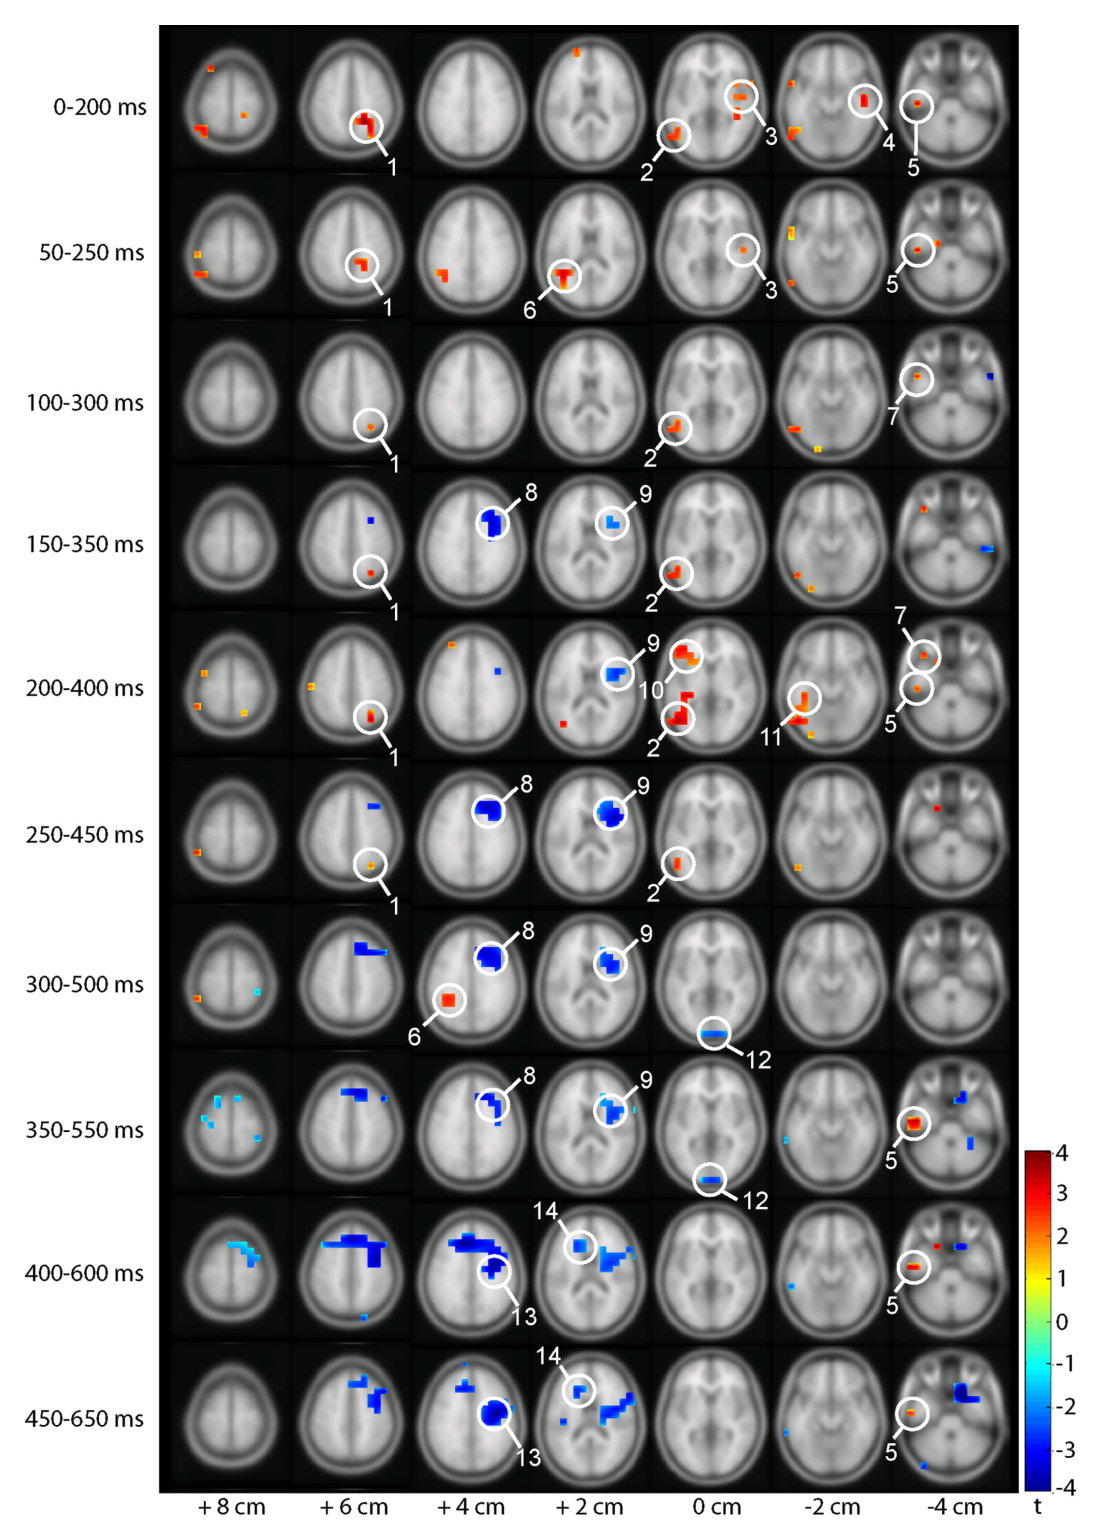
图 5 · MEG 源与 fMRI 激活的并排对照
原文图注:Figure 5. Differential fMRI activation maps for faces minus non-faces, overlaid on the structural image of one subject at a statistical threshold of q ≤ 0.05 (FDR, corrected) and corresponding contrasts for MEG beamforming. Orange voxels showed greater activation for faces than non-faces, whereas blue voxels showed greater activation for non-faces than faces. Clusters corresponding to fMRI (top row) and MEG (bottom row) source locations are marked with white circles; the numbers refer to the clusters in Table 1 and in Figure 4. The clusters 4 (right aIT), 5 (left aIT), 7 (orbitofrontal cortex), 9 (right IFG), and 10 (left IFG) are missing because these areas were not covered during the functional MRI scans.……
读图时把上下两行的同号白圈对齐比较:橙(脸>非脸)与蓝(非脸>脸)的体素团在覆盖区域里与 MEG 的源位置基本重合,且方向一致——这是作者敢下"源定位可靠"结论的依据。同时要记住图注明确列出的缺口:aIT、眶额与 IFG 在 fMRI 扫描范围之外,这些区的 MEG–fMRI 对应无从谈起;而 MEG 单侧、fMRI 双侧的现象也提醒 beamformer 的边界。这张图支撑主要结果第 5 条。
讨论
作者将实验发现整合为知觉闭合的两阶段动态模型:第一阶段表现为早期形状加工区(cITG,从明暗线索中提取三维结构)与后顶叶区域(楔前叶参与将感觉输入匹配至长时记忆模板)的交互;在随后的闭合时段(200–400 ms),cITG 的神经活动延伸至梭状回的面孔选择区(FFA),同时左侧额下回呈现特异性增强,对应于明确识别的完成。250 ms 之后,倒置打乱刺激在右侧额区、前运动皮层、V1 与前扣带皮层引起更强的激活,作者认为反映了被试在未检测到目标时持续进行视觉搜索的认知负荷,以及对早期视觉表征的反馈重访。在方法局限方面,beamformer 算法在求解病态逆问题以及处理高度相干源时存在漏检或定位偏差的可能,因此本组数据不宜直接作为严格功能偏侧化的定论;此外,文中讨论了 aIT 与 Kriegeskorte 等报道的面孔区坐标偏差,推测其可能反映更广泛的面孔信息加工,或个体面孔特征在早期识别中的快速提取。
一句话总结
本文结合 MEG 源定位与 fMRI 交叉验证,揭示了知觉闭合并非依赖单一皮层区域的孤立激活,而是由尾侧下颞回与后顶叶的早期交互逐步推进至梭状回面孔区的动态时空演进过程。