一句话定位:本文基于比较解剖学、神经示踪与单单元电生理研究,综述了猕猴腹外侧前额叶皮层(VLPFC)对面孔与同类发声的视听整合机制,并结合人类功能神经影像学证据,探讨了该系统作为人类下额回(IFG)视听言语整合神经基础的演化假说。
研究背景
人类下额回参与言语知觉与产生,并在口型与语音、手势与言语等多模态社会交往信号的整合中发挥关键作用。探讨该功能的神经机制演化源头需要可靠的非人灵长类比较模型。细胞构筑学研究提示,猕猴腹外侧前额叶皮层与人类下额回部分脑区具有同源对应关系;神经示踪实验表明,下颞叶皮层(IT)的视觉通路与颞上回(STG)的听觉通路均向前投射至 VLPFC 区域。随后,单细胞记录在 VLPFC 确认了对面孔特异的面孔细胞以及对复杂叫声敏感的声音反应神经元。
然而,同一脑区内并存单模态视觉与听觉神经元不足以直接证实二者存在视听多模态整合。面孔反应区与听觉反应区可能仅在空间上紧邻,双模态刺激呈现可能仅独立激活两群独立的神经元。因此,验证前额叶多模态整合的核心依据在于记录单个神经元对孤立视觉、孤立听觉以及视听联合刺激的非线性反应(多感觉增强或抑制)。此外,叫声神经元主要表征叫声的声学频谱特征还是抽象的行为意义,直接影响到该脑区信息加工层级的界定;前额叶不同亚区构筑边界的变异也给生理记录位点的精确解剖定位带来挑战。
Romanski 在此综述中系统梳理了四类证据:人猴细胞构筑对比、颞叶向前额叶的轴突投射、面孔与叫声的单单元电生理响应,以及人类言语与手势交互的 fMRI 研究。文章旨在评估猕猴在社会交往中的面孔–发声视听整合回路是否可作为人类言语视听加工的演化参照。相关推论主要基于跨物种结构与功能对应性,仍受制于实验刺激广度、分区边界争议及非人灵长类演化谱系间证据的间接性。
研究思路
综述围绕四条相互印证的证据链展开论述:其一,细胞构筑学比较,确立猕猴 VLPFC(45 区与 12/47 区)与人类下额回的解剖对应关系;其二,神经通路示踪,证实 VLPFC 同时接收下颞皮层的视觉特征输入与颞上回外侧带/旁带的听觉特征输入,且听觉投射符合“听觉双流”拓扑分工;其三,清醒动物单单元电生理记录,系统展示面孔选择性神经元、复杂发声调谐神经元以及视听整合神经元的分布与调谐特性;其四,人类 fMRI 的手势–言语多模态激活模式,检验人类下额回与猕猴 VLPFC 功能域的相似性。
文章以此构建假说框架:猕猴 VLPFC 将具体面孔与同类叫声时序绑定的神经计算机制,可能构成了人类语言中将抽象概念与听觉词汇、发音口型及伴随手势相联结的神经演化雏形。作者同时对解剖构筑分界(如 45 区与 12/47 区交界)的变异进行了分析,提出结合下前额凹窝(IPD)的生理记录功能定位可提供更为稳定的区域参考。
方法
本篇综述整合了既往发表的猕猴解剖学、电生理学与人类影像学数据。解剖学证据源自恒河猴(Macaca mulatta)的组织学细胞构筑染色与顺行/逆行轴突示踪:示踪剂注射于经电生理定标的听觉皮层外侧带亚区(前外侧 AL、中外侧 ML、后外侧 CL)、旁带皮层、下颞叶(TE/TEO)及颞上沟(STS),标记其向前额叶皮层的轴突末梢分布。
电生理数据源自清醒恒河猴 VLPFC 的单单元微电极记录。视觉刺激包括不同注视方向、旋转角度的面孔与非面孔几何图案;听觉刺激包括恒河猴常见发声类型(如低价值觅食呼唤 grunt、同伴联络音 coo、侵略性威胁叫声 pant threat、高价值食物叫声 harmonic arch 等)及人工控制声音;多模态实验播放熟悉猕猴发声的真实视频,解耦提取并呈现纯音频(AUD)、纯视频面孔(Vis)以及视听联合刺激(AV),定量比较放电率的非线性增强或抑制。人类影像学参照来源于言语与手势任务的 fMRI 激活定位数据(如 Xu 等人的手势–言语跨模态研究)。
主要结果
- 细胞构筑对应性:猕猴 VLPFC 位于主沟腹侧、弓状沟下肢前方,主要包括 45 区(可细分为 45A 与 45B)与 12/47 区(对应人类 47 区,细分为 12vl 与 12o)。45 区深层(III/V 层)分布显著的大锥体细胞,第 IV 层颗粒层致密且髓鞘化明显;45 区向 12 区的过渡以下前额凹窝(IPD)为界,伴随大锥体细胞密度的降低(图 1)。下前额凹窝是听觉调谐与视听整合神经元富集的标志性结构。
- 视听感觉通路的前额叶汇聚:VLPFC 经钩束接收下颞皮层 TE/TEO 的腹侧视觉投射,并接收来自颞上听觉区的轴突传入。听觉投射呈现空间拓扑分工:前侧带(AL)及相邻旁带主要投射至吻侧与腹外侧前额叶,构成负责复杂声音识别的“听觉客体通路”;后侧带(CL)及相邻旁带主要投射至背外侧前额叶,构成负责声源定位的“听觉空间通路”(图 2)。腹侧视觉“是什么”流与腹侧听觉“是什么”流通向同一 VLPFC 解剖功能区汇聚。
- 面孔选择性神经元分布:单单元记录显示,VLPFC 存在特异性响应面孔的神经元,其对面孔刺激的发放率约为主流非面孔物体刺激的两倍,且未在背外侧前额叶观察到类似集中分布。面孔细胞聚集于弓状沟附近 45 区、IPD 附近的 12vl 区以及眶额皮层外侧部,对表情变化、特征组合、注视方向及头部三维旋转角度具备选择性;该电生理定位与功能磁共振在 VLPFC 识别出的前额叶“面孔补丁”空间重合(图 3)。
- 同类发声调谐神经元:在 IPD 及其邻近区域存在局灶性听觉反应区,神经元对同类叫声及复杂声学刺激产生选择性放电。当使用 10 类自然发声测试时,多数听觉神经元选择性调谐于 2–3 类声学物理频谱相近的叫声,而非跨越不同声学结构但在行为情境上具有相似意义的发声,表明该区域当前编码侧重于“听觉客体”的物理声学特征(图 4)。
- 视听多模态整合效应:在真实发声视频测试中,VLPFC 约半数记录神经元表现出多模态特性,包含双模态响应神经元以及对视听联合刺激呈现非线性响应的神经元(多感觉增强或多感觉抑制,图 5)。视听整合神经元表现出对特定面孔–叫声组合的配对偏好,在空间分布上呈现分化:后侧(45 区)以视觉为主且多感觉比例较低,前外侧(IPD、12vl)高度富集针对叫声及对应面孔口型动态匹配的细胞;多数多感觉神经元表现为视听联合抑制。由于记录到的视觉神经元比例(55%)高于听觉神经元(18%),整合神经元主要集中分布于听觉终末投影带内。
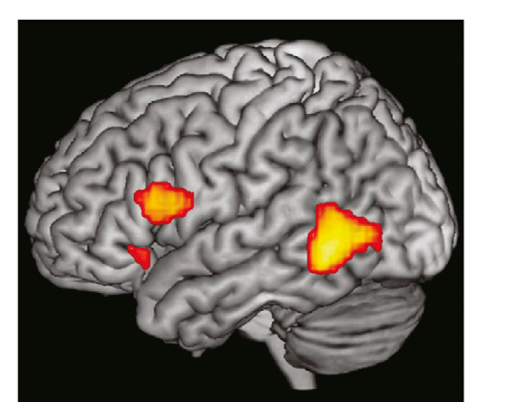
- 人类下额回的对应多模态表征:人类 fMRI 研究表明,在言语聆听与手势观察任务中,下额回呈现稳定的双模态重合激活,主要位于 44/45 区大簇及 47 区前端局灶簇(图 6),提示人类 IFG 在言语认知之外,具有整合发声与伴随动作视觉信号的多模态基础。
图注解读
图 1 · 人与猴腹侧前额叶的细胞构筑图
原文图注:Fig. 1. Organization of ventral PFC. Maps of the cytoarchitectonic organization of ventral PFC are shown for the human (A and B) and macaque brain (C–E). (A) Brodmann map (1909) of the human brain with areas 44, 45, and 47 marked on the IFG. Reproduced with permission from Brodmann (1909). (B) Map of the human brain color-coded to match the corresponding homologous regions in the macaque brain shown in D. (C) Map of M. mulatta. (D) Map of macaque brain. (E) Photomicrograph of VLPFC in macaque monkey with cytoarchitectonic areas labeled. The IPD is marked in D and in E.(原文注为多处授权转载,此处有省略)
展示人类与恒河猴腹外侧前额叶细胞构筑对应关系:A 为人类大脑 Brodmann 分区图,标出下额回 44、45 与 47 区;B 通过颜色编码标示人类脑区与 D 中猕猴同源分区的对应;C 与 D 为猕猴前额叶分区图;E 为猕猴 VLPFC 冠状组织学切片微缩照相,标注 45A、45B、12L、12O 及下前额凹窝(IPD)。解剖标定显示猕猴 45 区与 12/47 区与人类下额回同源,IPD 在此作为微电极记录的重要解剖参照。
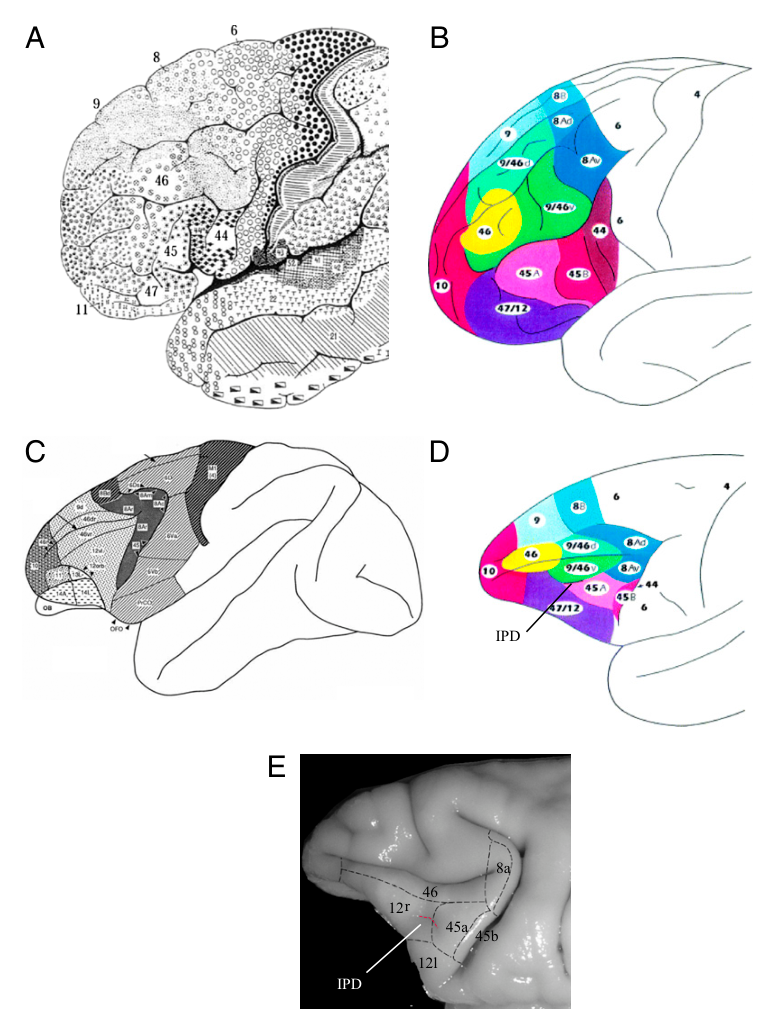
图 2 · 听觉传入的双流与前额叶靶区
原文图注:Fig. 2. Dual streams of auditory afferents target the PFC. (A) The auditory cortex core (A1) surrounded by the belt (box delineates the lateral belt cortex shown in B). Injections placed into the auditory belt cortex at similar frequency mapped locations in AL (red), ML (green), and CL (blue) are shown as colored polygons. (C) The resulting labeled retrograde cells and anterograde fibers are shown in three coronal sections through the PFC from rostral to caudal, with the same color coding as in B to indicate the source of the injections. (D) Summary of projections. Rostral and VLPFC receives stronger innervation from the anterior belt and adjacent parabelt regions whereas dorsolateral PFC receives the greatest innervation from caudal auditory belt and parabelt regions. Adapted from ref. 33.
展示听觉向前额叶投射的双流架构:A 与 B 展示听觉初级核心区(A1)与外侧带各亚区(AL 红色、ML 绿色、CL 蓝色)的示踪剂注射位点;C 为前额叶三个吻尾冠状切面上的逆行标记神经元胞体与顺行轴突末梢分布;D 为投射终末汇总示意。前侧带(AL)主要支配吻侧与腹外侧前额叶(VLPFC),后侧带(CL)主要支配背外侧前额叶,证实腹外侧前额叶是听觉客体识别流的靶区。
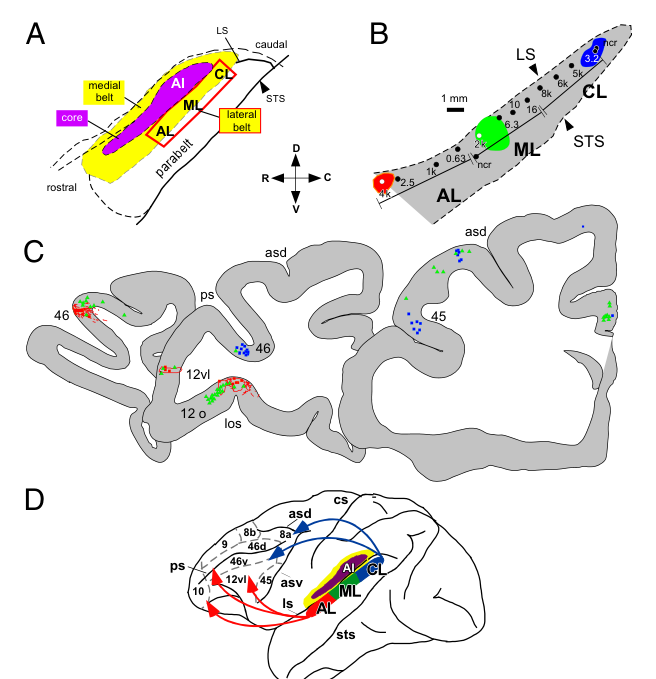
图 3 · VLPFC 的面孔反应神经元与面孔补丁
原文图注:Fig. 3. Face-responsive neurons in the VLPFC. (A and B) Face-responsive neurons recorded by O'Scalaidhe et al. (19) are depicted. (A) Region recorded in the PFC is indicated with a circle on the lateral brain schematic of the rhesus macaque brain. (B) Flat map of the recorded region in the PFC is shown with face cells outlined in black and gray. (C) Face responsive cells that were selective for forward and 30° rotated face view (50). Stimulus images courtesy of Michael J. Tarr, Center for the Neural Basis of Cognition and Department of Psychology, Carnegie Mellon University, http://www.tarrlab.org/. (D) Location of face selective patches in the VLPFC and in the orbitofrontal cortex is shown in yellow (51). A red arrow indicates a similar portion of the VLPFC in the single unit data portrayed in B and in the fMRI data in D. Reprinted by permission from Macmillan Publishers Ltd: Nature Neuroscience (ref. 51), copyright (2008).
结合单单元电生理与 fMRI 定位前额叶面孔表征:A 与 B 在大脑侧视图与平展图上标明记录位点与面孔细胞分布;C 展示单神经元对正向及偏转 30° 面孔视角的选择性放电(纵轴为放电率 spikes/s,横轴为时间);D 为猕猴 fMRI 测得的前额叶面孔选择性补丁(黄色区域),红色箭头指示单细胞数据与影像学定位在 VLPFC 区域的空间对应性。
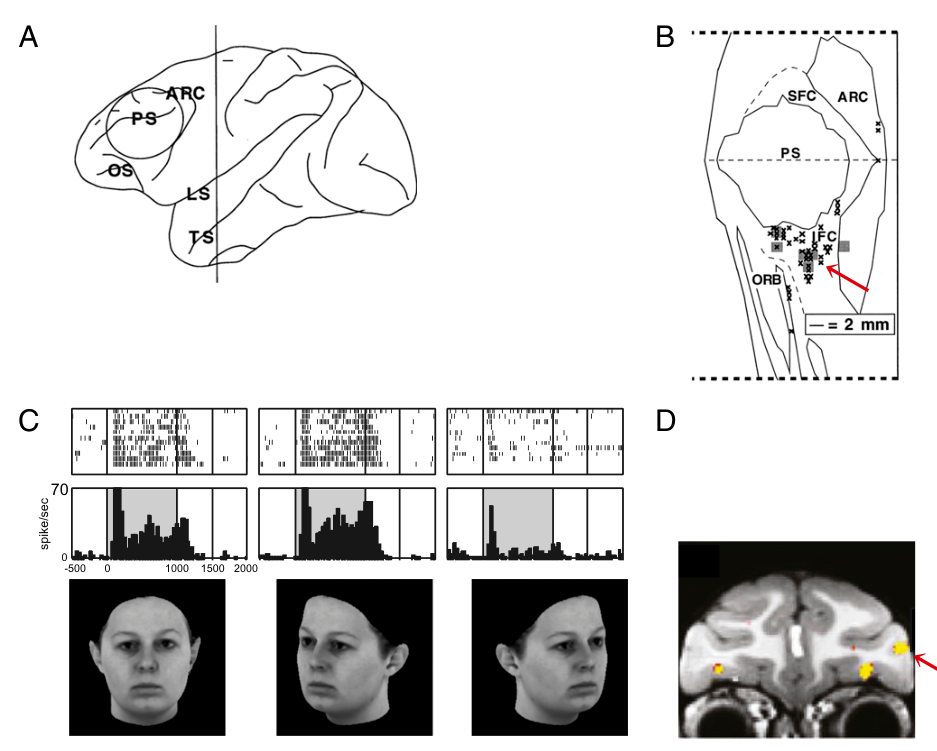
图 4 · 叫声反应神经元与叫声类型选择性
原文图注:Fig. 4. Auditory responsive neurons in VLPFC. A single-cell example of responses to four different vocalization stimuli is shown in the top part of the figure. The response is shown as raster and shaded spike density function in response to a "grunt" vocalization (low-value food call), an aggressive "pant threat" vocalization, a "coo" vocalization (low-value food and affiliative) and a harmonic arch (high-value food). The waveforms of the calls are shown below the rasters. A schematic of the PFC is shown indicating the locations of auditory responsive neurons. Adapted from ref. 11.
单个 VLPFC 神经元对四种同类叫声刺激的电生理响应:上方为对 grunt(觅食呼唤)、pant threat(攻击性威胁)、coo(社群联络)与 harmonic arch(高价值食物)四种发声的点阵图(raster)与放电密度曲线,下方附各声音的时域波形;下方前额叶示意图中,x 标记听觉反应神经元的解剖位点(主要位于弓状沟下肢前方及主沟腹侧的 IPD 邻近区)。神经元对部分物理频谱相似的发声产生特异发放,对其他发声无明显响应。
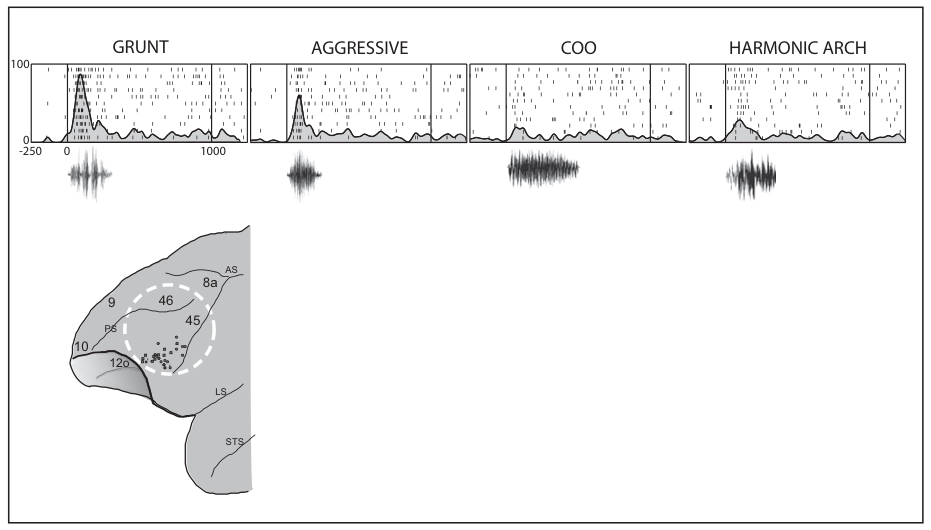
图 5 · 多感觉神经元:增强与抑制两类
原文图注:Fig. 5. Multisensory neurons in the VLPFC. The responses of two single units are shown in A and B as raster/spike density plots to an auditory stimulus alone (a vocalization, AUD) and face (Vis) and both presented simultaneously (AV). Right: Bar graph of mean response to these stimuli. Cell in A exhibited multisensory enhancement and cell in B exhibited multisensory suppression. Locations where multisensory stimuli (red squares), visual responses (yellow diamonds), and auditory responses (blue circles) are depicted on lateral view of frontal lobe in D, with the inset shown larger in C. Adapted from ref. 63.
VLPFC 多感觉整合单单元示例:A 与 B 展示两个神经元在纯发声(AUD)、纯面孔视频(Vis)及视听同步(AV)条件下的放电密度图与平均放电率柱状图。A 细胞表现为视听联合增强,B 细胞表现为视听联合抑制。D 与 C 展示额叶侧视图上多感觉细胞(红色方块)、纯视觉细胞(黄色菱形)与纯听觉细胞(蓝色圆点)的解剖分布,多感觉与听觉反应神经元高度聚集于下前额凹窝(IPD)周围。
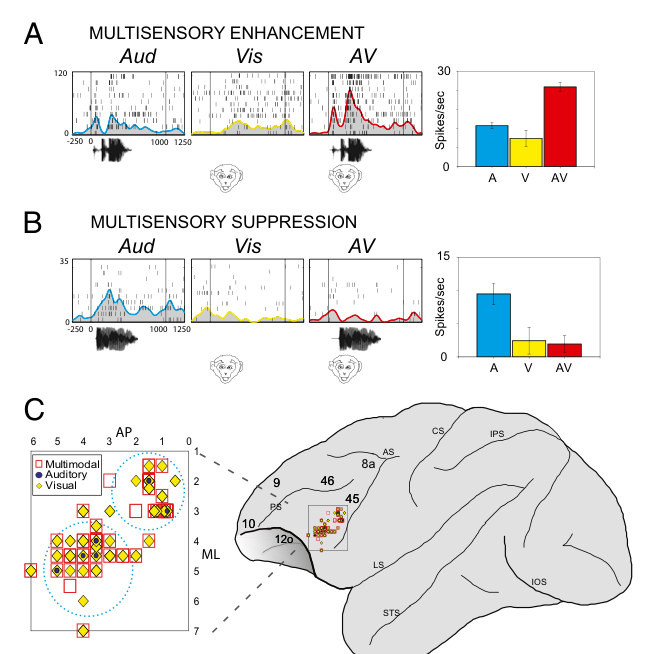
图 6 · 人类额叶言语与手势反应区的汇聚
原文图注:Fig. 6. Convergence of speech and gesture responsive regions in the human frontal lobe. Shown are three activation clusters that were active for speech and gesture conditions. There is a large activation cluster in the posterior temporal lobe and in the IFG areas 44 and 45 and a small focal activation rostrally in area 47. Reproduced from ref. 87.
人类脑功能成像中言语与手势共同激活脑区:显示出三个重合激活簇,分别位于颞后叶、下额回 44 与 45 区,以及 47 区前端的局灶激活区。图谱展示了人类下额回在加工听觉语言与伴随视觉姿态动作时的多模态重合模式,与猕猴 VLPFC 面孔–叫声多模态汇聚形成跨物种对应。
讨论
作者结合解剖学与神经生理学证据,提出猕猴 VLPFC 面孔与叫声整合系统为理解人类下额回言语视听加工提供了比较神经学基础。猕猴通过该通路建立同类面孔表情与特征声音的跨模态联结,这一计算构架在演化过程中可能拓展为人类大脑将视听口型、伴随手势及符号概念相互绑定的语言神经环路。
针对解剖构筑学边界的争议,作者指出 45 区与 12/47 区的分界在不同示踪文献中存在命名与划分差异(如 45A 区接收颞上沟与下颞叶输入的比例报道不一),建议结合功能反应特性与 IPD 解剖标志进行综合判定。在细胞生理特征方面,多数视听多模态神经元表现为联合抑制而非增强,这一非线性抑制可能反映了跨模态特征间的相互竞争与精确调谐,其具体计算功能仍待深入解析。此外,人类功能成像中非配对视听刺激诱发的激活改变方向与灵长类电生理记录的异质性差异,提示宏观 BOLD 信号可能综合了不同亚型神经元的多样化反应。作者强调,这一功能同源性假说需要结合更多灵长类物种的电生理与功能连接证据进行系统检验。
一句话总结
本综述阐明了猕猴腹外侧前额叶皮层整合面孔与同类发声的解剖通路与单单元生理机制,为探讨灵长类社会交流信号向人类视听言语系统的演化过渡提供了比较神经学依据。