一句话定位:这是 Romanski 为 PNAS "In the Light of Evolution VI: Brain and Behavior" Sackler 研讨会写的一篇综述,梳理了十余年猕猴腹外侧前额叶(VLPFC)研究中关于面孔与声音整合的解剖学与电生理证据。它的核心主张颇具进化色彩:猕猴 VLPFC 的"面孔—叫声"整合区,可能正是人类下额回(IFG)语言区处理"言语—手势"视听整合的前身。想理解"语言脑区从哪来",这是一份结构清晰的单细胞视角综述。
研究背景
人类额叶的语言加工区位于下额回(inferior frontal gyrus, IFG),按 Brodmann 分区包括 44 区(盖部)、45 区(三角部)与 47 区(眶部)。理解这块皮层的困难在于:没有其他哺乳动物拥有组织结构相似的额叶,只有狭鼻类(catarrhines,旧世界猴与猿)具有细胞构筑学上可辨认的 44/45/47 区,而新世界猴的额叶沟回平坦、前额区界定不清——动物模型的缺乏长期阻碍机制研究。另一侧的已知是:灵长类前颞与颞上沟(STS)的多模态区投射到腹外侧前额叶;猴 VLPFC 存在面孔选择神经元与对复杂声音(包括同类叫声)反应的神经元;人类 IFG 参与言语与手势的视听整合(McGurk 效应即为例证)。
缺口在于把这些证据串成一个功能与进化的论证:猕猴 VLPFC 的面孔区与听觉区在空间上相邻,它们是否真的在单细胞水平整合社会交流信号?整合神经元分布在哪里、有什么选择性?这种整合与人类 IFG 的言语—手势整合是否构成结构(细胞构筑同源)与功能(整合社会信号)上的连续体?Romanski 的假设是:作者假设,至少在早期类人灵长类(anthropoids,包括猴与猿)中,腹侧前额叶已开始特化于视听交流信号的加工与整合。,其后在人类中被修饰并偏侧化到左半球以承担语言。
研究思路
作为综述,作者的策略不是新实验,而是把四条证据链并排铺开、让它们互相咬合:一是细胞构筑学(cytoarchitecture)比较,确立猕猴 VLPFC(45 区与 12/47 区)与人 IFG 的结构同源性;二是解剖追踪(顺行/逆行示踪),确立 VLPFC 同时接收颞上回的听觉输入与下颞皮层的视觉输入,且听觉输入本身呈"双流"组织;三是单细胞电生理,逐一展示面孔神经元、叫声神经元与多感觉神经元的反应特性与分布;四是人类言语与手势加工在 IFG 的激活重叠证据。,并注明其与猕猴单细胞视听整合证据处于不同证据层级。,把人 IFG 的激活格局与猴 VLPFC 的功能域对齐。逻辑链是"同源结构—汇聚输入—汇聚反应—人类对应物",最后落到进化推论:猕猴把面孔与叫声"联结"起来的机制,是人类把抽象概念与声音、图像、手势联结起来的初级形式。值得一提的是,作者对解剖学上的争议(45 区与 12/47 区边界在哪)采取了透明的态度,明确指出功能定位(IPD 附近)可能比单纯构筑学分界更可靠。
方法
本文为综述,本身不含新实验;其"材料"是既往猕猴研究与人类影像研究的汇总。解剖学证据主要来自恒河猴(Macaca mulatta)的细胞构筑染色分析与顺行/逆行神经示踪:示踪剂注射于生理学定位的听觉 belt 区三个亚区(AL、ML、CL)及旁带(parabelt)、下颞皮层与 STS,标记其向前额叶的投射。电生理证据来自清醒行为猕猴 VLPFC 的单细胞记录:视觉研究中呈现面孔与非面孔刺激(包括不同注视方向与旋转角度的人/猴面孔),听觉研究中使用约十类恒河猴叫声(grunt、coo、pant threat、harmonic arch 等)及复杂非叫声声音,多感觉研究则播放熟悉猴子发声的影片,把音轨与画面拆开单独或联合呈现,比较单模(AUD、Vis)与视听联合(AV)反应。人类对照证据来自 IFG 的 fMRI 研究(尤其 Xu 等的言语—手势实验)。文中反复强调的一个分析要点是:记录位点需与解剖学上的"听觉带 VLPFC"(IPD 附近)对应,以避免因分区边界不定而误标。
主要结果
- 结构同源:猕猴 VLPFC 位于主沟腹侧、弓状沟下肢前方(下凸面),包含 45 区(与人类 45 区对应,进一步分 45A/45B)与 12/47 区(与人 47 区同源,再分 12vl 与 12o);45 区深层 III/V 层有大锥体细胞、第 IV 层厚且髓鞘致密,与 12 区的分界以大 III 层锥体细胞的消失为标志(图 1)。下额沟/IPD 的位置在个体与亚种间有变异,而 IPD 正是听觉与视听神经元反复被记录到的地方。
- 输入双流汇聚:VLPFC 经钩状束接收下颞皮层 TE/TEO 的视觉投射,同时接收颞上回的听觉投射;听觉投射呈拓扑组织——前侧 belt(AL)与旁带支配吻侧与腹侧 PFC,尾侧 belt(CL)与旁带支配背外侧 PFC,构成与视觉系统背/腹流类比的两条听觉流:吻侧—腹外侧前额叶的"听觉客体"域与背外侧的"听觉空间"域(图 2)。视听两流的腹侧成分汇聚到同一个 VLPFC 域。
- 面孔神经元:O'Scalaidhe 等记录到 VLPFC 面孔细胞对面孔刺激的放电约为非面孔的两倍,仅见于 VLPFC 而不见于背外侧 PFC,分布在三个小簇(弓状沟附近 45 区、IPD 内外的 12vl、外侧眶皮层);它们对表情、特征、注视角度敏感,还有对面孔视角(正脸与旋转 30°)的选择性;fMRI 在同样位置确认了前额叶"面孔补丁"(图 3)。
- 叫声神经元:VLPFC 存在一个离散的听觉反应区(IPD 附近),其神经元对叫声与复杂非叫声声音反应;用 10 类叫声检验发现,神经元倾向对 2–3 类声学形态相似的叫声反应,而非对行为意义相似者反应,提示编码偏向"听觉客体"属性;该区活动也与声音分类及听觉决策的调制相关(图 4)。
- 多感觉整合及其偏向:播放发声猴影片时,VLPFC 约半数记录神经元呈多感觉性——要么对音、画都反应(双模),要么对 AV 联合刺激呈现增强(multisensory enhancement)或抑制(multisensory suppression)(图 5);作者强调这可能是低估,因为刺激集有限且神经元对特定的"面孔—叫声"配对有选择性。视听整合神经元偏好面孔—叫声而非非面孔非叫声配对;分布上呈两簇:后侧(45 区)以视觉为主、整合功能较一般,前外侧(IPD、12vl)偏向叫声及其对应面孔,为社会交流特化;多数多感觉神经元呈抑制型。视觉反应神经元比例(55%)远高于听觉(18%),故整合细胞集中在听觉带附近。
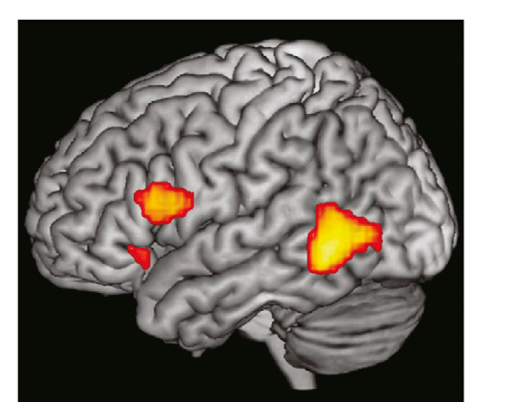
- 人类对应物:Xu 等的 fMRI 显示,观察手势与聆听相配话语激活 IFG 的两个区——44/45 区(三角部与盖部)的大簇与 47 区(眶部)的小簇(图 6);作者据此主张 IFG 的功能超出经典听觉言语加工,其本质可能是"把意义与声学或视觉符号联结起来"。
图注解读
图 1 · 人与猴腹侧前额叶的细胞构筑图
原文图注:Fig. 1. Organization of ventral PFC. Maps of the cytoarchitectonic organization of ventral PFC are shown for the human (A and B) and macaque brain (C–E). (A) Brodmann map (1909) of the human brain with areas 44, 45, and 47 marked on the IFG. Reproduced with permission from Brodmann (1909). (B) Map of the human brain color-coded to match the corresponding homologous regions in the macaque brain shown in D. (C) Map of M. mulatta. (D) Map of macaque brain. (E) Photomicrograph of VLPFC in macaque monkey with cytoarchitectonic areas labeled. The IPD is marked in D and in E.(原文注为多处授权转载,此处有省略)
五联图:A 是人类 Brodmann 分区图(44/45/47 标于 IFG),B 用颜色把人脑分区与猕猴同源区对应,C/D 是两种猕猴分区图,E 是猕猴 VLPFC 的显微照片,标注 45a/45b、12l、12o、IPD 等。读图的关键是 B→D 的颜色对应:它把"结构同源"这个论证的第一环可视化;IPD(下前额凹窝)在 D、E 中被特别标出,因为它是后文听觉与视听神经元的焦点地标。支撑主要结果第 1 条。
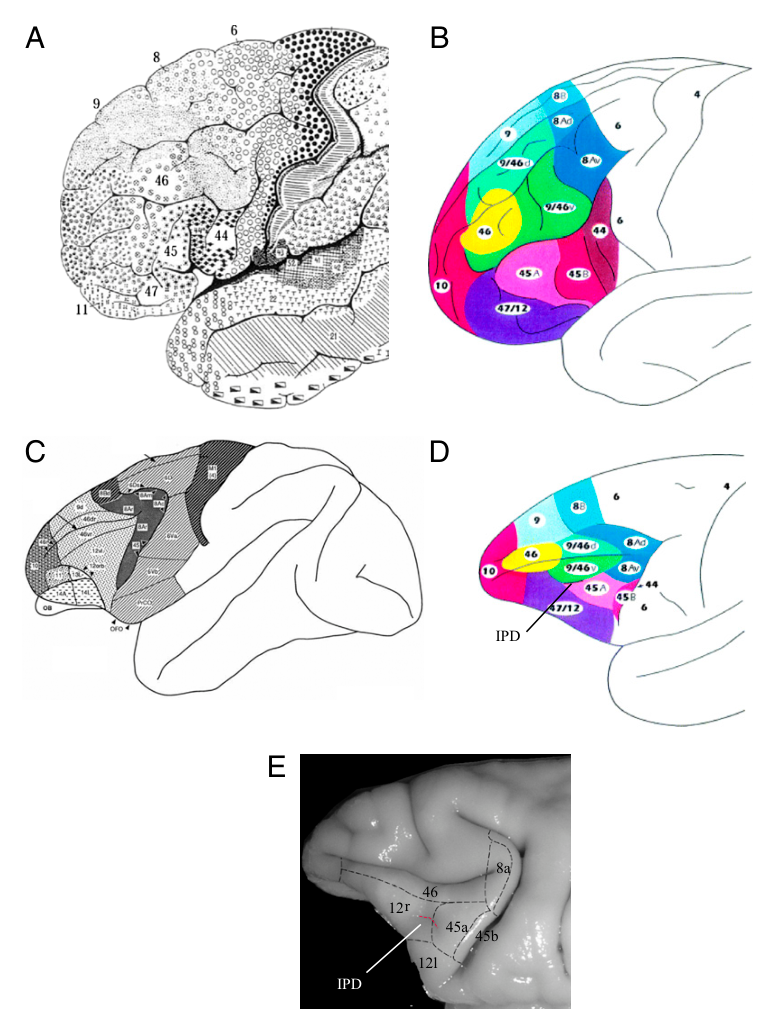
图 2 · 听觉传入的双流与前额叶靶区
原文图注:Fig. 2. Dual streams of auditory afferents target the PFC. (A) The auditory cortex core (A1) surrounded by the belt (box delineates the lateral belt cortex shown in B). Injections placed into the auditory belt cortex at similar frequency mapped locations in AL (red), ML (green), and CL (blue) are shown as colored polygons. (C) The resulting labeled retrograde cells and anterograde fibers are shown in three coronal sections through the PFC from rostral to caudal, with the same color coding as in B to indicate the source of the injections. (D) Summary of projections. Rostral and VLPFC receives stronger innervation from the anterior belt and adjacent parabelt regions whereas dorsolateral PFC receives the greatest innervation from caudal auditory belt and parabelt regions. Adapted from ref. 33.
读图顺序:A/B 是听觉皮层核心—belt 结构与三个频率匹配的注射位点(AL 红、ML 绿、CL 蓝),C 是三个吻尾冠状切面上的标记细胞/纤维,D 是投射总结图。结论一目了然:红(前侧 belt)的纤维涌向吻侧与腹外侧 PFC,蓝(尾侧 belt)的纤维涌向背外侧 PFC——"听觉双流"的前额叶终点图,支撑主要结果第 2 条,也是"腹侧听觉流终止于 VLPFC"立论的核心图。
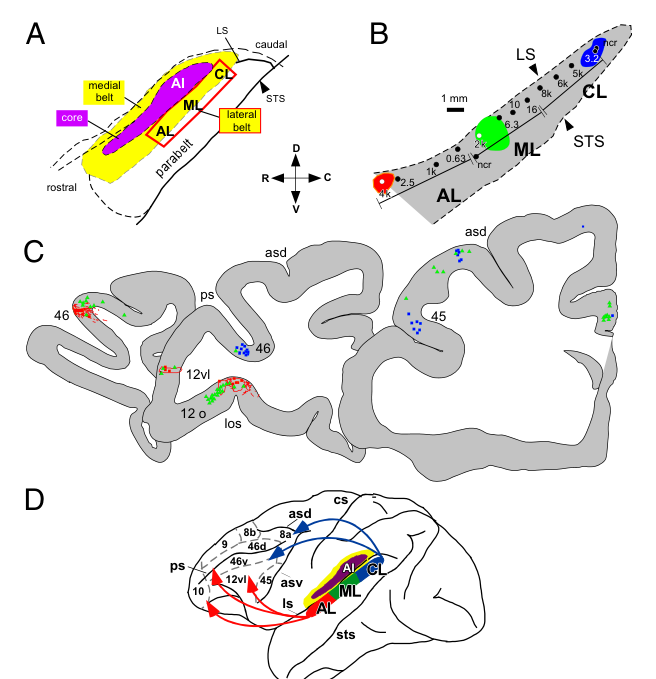
图 3 · VLPFC 的面孔反应神经元与面孔补丁
原文图注:Fig. 3. Face-responsive neurons in the VLPFC. (A and B) Face-responsive neurons recorded by O'Scalaidhe et al. (19) are depicted. (A) Region recorded in the PFC is indicated with a circle on the lateral brain schematic of the rhesus macaque brain. (B) Flat map of the recorded region in the PFC is shown with face cells outlined in black and gray. (C) Face responsive cells that were selective for forward and 30° rotated face view (50). Stimulus images courtesy of Michael J. Tarr, Center for the Neural Basis of Cognition and Department of Psychology, Carnegie Mellon University, http://www.tarrlab.org/. (D) Location of face selective patches in the VLPFC and in the orbitofrontal cortex is shown in yellow (51). A red arrow indicates a similar portion of the VLPFC in the single unit data portrayed in B and in the fMRI data in D. Reprinted by permission from Macmillan Publishers Ltd: Nature Neuroscience (ref. 51), copyright (2008).
A/B 来自单细胞研究:侧视图上圈出记录区, flat map 上黑灰轮廓标出面孔细胞的位置;C 展示对正脸与旋转 30° 脸有选择性的细胞的刺激—反应示例(纵轴为 spike/sec,横轴为刺激前后时间);D 是 fMRI 面孔选择补丁(黄色),红箭头指出单细胞数据(B)与 fMRI 数据(D)中对应的 VLPFC 部位。两种方法在同一位置见到面孔选择性,是"VLPFC 参与面孔加工"最硬的互证,支撑主要结果第 3 条。
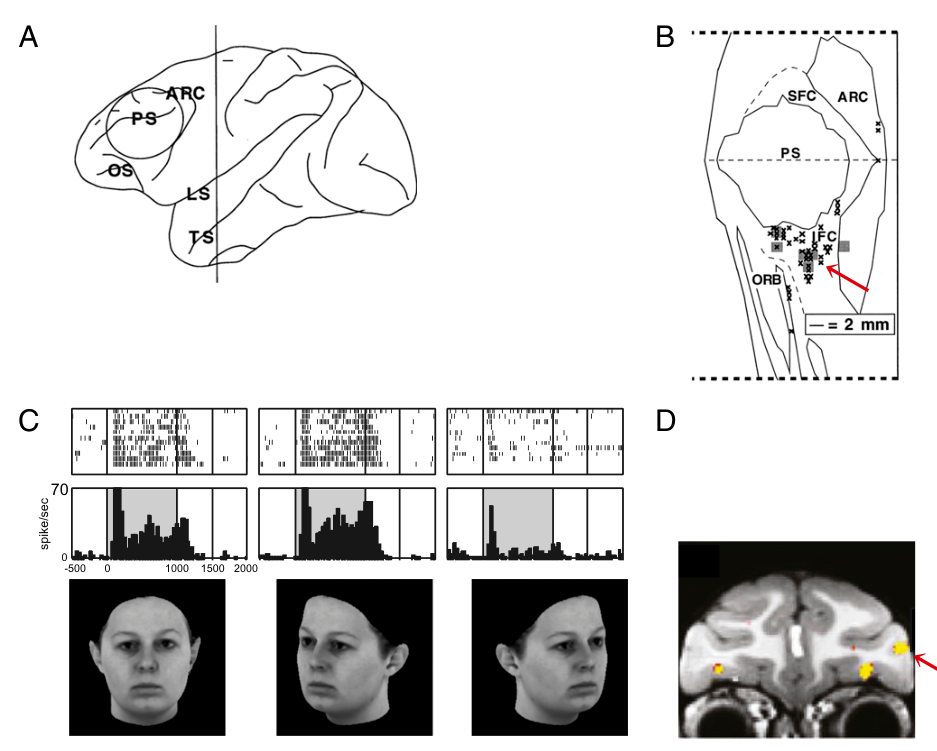
图 4 · 叫声反应神经元与叫声类型选择性
原文图注:Fig. 4. Auditory responsive neurons in VLPFC. A single-cell example of responses to four different vocalization stimuli is shown in the top part of the figure. The response is shown as raster and shaded spike density function in response to a "grunt" vocalization (low-value food call), an aggressive "pant threat" vocalization, a "coo" vocalization (low-value food and affiliative) and a harmonic arch (high-value food). The waveforms of the calls are shown below the rasters. A schematic of the PFC is shown indicating the locations of auditory responsive neurons. Adapted from ref. 11.
上半部是单个神经元对四类叫声(grunt、pant threat、coo、harmonic arch,各附叫声波形与行为含义)的 raster 与阴影化 spike 密度函数,横轴为刺激时间、纵轴为放电率;下半部是前额叶示意图,x 标出听觉反应神经元的位置(弓状沟下方、主沟腹侧、IPD 附近)。读图时比较四种叫声下的放电幅度差异:神经元对部分叫声反应强、对另一些几乎不反应——这正是"对 2–3 类声学形态相似的叫声反应"结论的直观展示,支撑主要结果第 4 条。
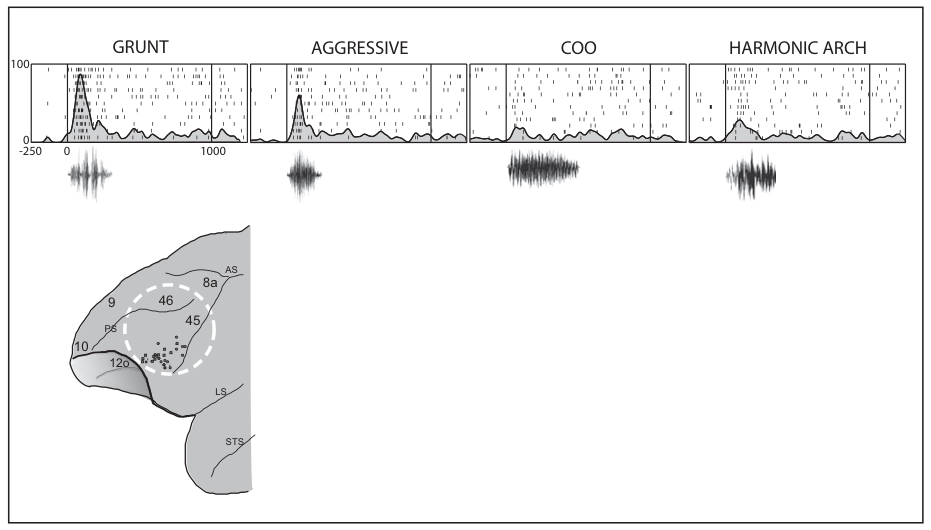
图 5 · 多感觉神经元:增强与抑制两类
原文图注:Fig. 5. Multisensory neurons in the VLPFC. The responses of two single units are shown in A and B as raster/spike density plots to an auditory stimulus alone (a vocalization, AUD) and face (Vis) and both presented simultaneously (AV). Right: Bar graph of mean response to these stimuli. Cell in A exhibited multisensory enhancement and cell in B exhibited multisensory suppression. Locations where multisensory stimuli (red squares), visual responses (yellow diamonds), and auditory responses (blue circles) are depicted on lateral view of frontal lobe in D, with the inset shown larger in C. Adapted from ref. 63.
A、B 是两个单细胞对声音(AUD)、面孔(Vis)与视听联合(AV)三种条件的 raster/spike 密度图,右侧柱状图为平均放电率:A 细胞的 AV 反应高于最强单模反应(增强型),B 细胞的 AV 反应低于单模(抑制型)。D/C 把多感觉(红方块)、视觉(黄菱形)、听觉(蓝圆点)反应位点画在前额叶侧视图上——注意听觉点与红方块集中于 IPD 附近,而黄菱形散布更广,对应"两簇多感觉区"与"视觉细胞多于听觉细胞"的分布结论,支撑主要结果第 5 条。
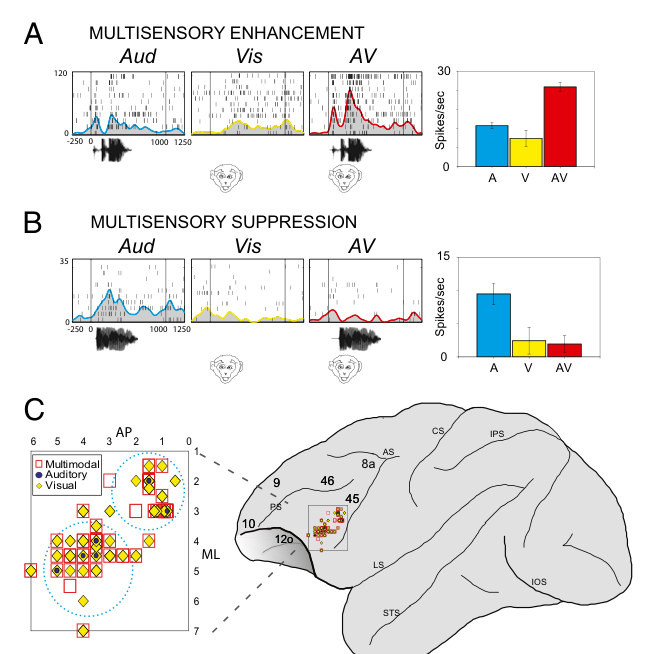
图 6 · 人类额叶言语与手势反应区的汇聚
原文图注:Fig. 6. Convergence of speech and gesture responsive regions in the human frontal lobe. Shown are three activation clusters that were active for speech and gesture conditions. There is a large activation cluster in the posterior temporal lobe and in the IFG areas 44 and 45 and a small focal activation rostrally in area 47. Reproduced from ref. 87.
这是 Xu 等人类 fMRI 结果的转载:三个对言语与手势条件均激活的簇——颞叶后部大簇、IFG 44/45 区大簇,以及 47 区前端一个小的局灶簇。读图要点是"言语与手势激活同一额区":这与猴 VLPFC 整合面孔与叫声的格局形成跨物种对应,是全文进化论证的落脚点,支撑主要结果第 6 条与讨论的推论。
讨论
作者的收束方式是把猕猴数据提升为进化论证:VLPFC 细胞对面孔—叫声对的整合,与人类 IFG 对言语—手势(McGurk 效应、唇读与语音融合)的整合构成功能同源的前身——猕猴"联结面孔与叫声",人类则更进一步"把抽象概念与图像、声音、手势联结"。这一推论与 Xu 等"IFG 在交流中的作用大于经典言语加工"的解读互相印证,也与 Passingham 关于腹侧前额叶"将视觉线索与动作联结"的观点相接:本文数据显示 VLPFC 可能把听觉线索与手势动作联结起来,这正是交流所必需。面孔身份识别的讨论也被纳入:动物同人一样会把面孔与相应的声音配对,STS 与下颞皮层的面孔身份回路通过 STS–VLPFC 的强连接把单模与多模身份信息送入 VLPFC。
作者对不确定性的交代相当直接:45 区与 12/47 区的边界尚存争议——Petrides 与 Pandya、Gerbella 等认为 45A 接收的 STG 输入多于下颞输入,与既往顺行追踪结果相抵,争议核心正是分区边界,作者建议用连接学与生理记录相结合来裁定;多感觉细胞比例可能是低估(刺激集有限);整合效应多数为抑制型而非增强型,这一非线性相互作用的含义与听皮层所见一致,但作者未强行给出功能解释;人脑与猴脑在"不一致视听刺激"上的成像结果方向也不一致(有的报告腹侧前额叶活动下降、有的报告升高),猕猴单细胞则显示升降取决于该细胞对双模刺激的原始反应,且符号还受面部特征与情绪效价影响。最后作者坦承功能同源的结论"需要来自更多灵长类物种的证据"。
一句话总结
这篇综述的力量在于把解剖(同源分区)、连接(双流汇聚)、生理(面孔/叫声/整合细胞)与人类影像(言语—手势)四层证据码成一环扣一环的叙事,但"前身—演化"的推论本质上仍是类比而非谱系证据,读时应把它当作一个启发性框架而非定论——这属于我的个人判断,非作者原话。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A, B, C, D, E, G] - Fig2: 提取质量
good,对齐度full,识别面板[A, B, C, D] - Fig3: 提取质量
good,对齐度full,识别面板[A, B, C, D] - Fig4: 提取质量
good,对齐度full,识别面板[A] - Fig5: 提取质量
good,对齐度full,识别面板[A, B, C, D] - Fig6: 提取质量
good,对齐度full,识别面板[]
关键事实与局限性声明
- 审校纠偏: {'md_section': '研究思路/主要结果', 'current_text': '确立猕猴 VLPFC 与人 IFG 的结构同源性', 'assessment': 'OVERCLAIM', 'problem': '原文以细胞构筑相似性支持或提示结构同源,并同时承认 45 与 12/47 的边界和连接归属存在争议;“确立”过强。', 'recommended_fix': '改为“提供支持结构同源假说的细胞构筑证据”。'} -> 评注: OVERCLAIM
- 审校纠偏: {'md_section': '主要结果', 'current_text': '构成与视觉系统背/腹流类比的两条听觉流', 'assessment': 'INTERPRETATION_PRESENTED_AS_FACT', 'problem': '原文使用 studies suggest 和 similar to,将其表述为由连接与生理结果支持的模型,而非已被完全确立的通路划分。', 'recommended_fix': '改为“这些结果支持一个与视觉背/腹流相类比的听觉双流模型”。'} -> 评注: INTERPRETATION_PRESENTED_AS_FACT
- 审校纠偏: {'md_section': '主要结果', 'current_text': '前外侧(IPD、12vl)偏向叫声及其对应面孔,为社会交流特化', 'assessment': 'INTERPRETATION_PRESENTED_AS_FACT', 'problem': '偏好叫声及对应面孔是观察结果;“为社会交流特化”是作者用 suggesting 和 may be specialized 表述的功能推论。', 'recommended_fix': '改为“该偏好提示前外侧神经元可能更专门参与社会交流信息整合”。'} -> 评注: INTERPRETATION_PRESENTED_AS_FACT
- 审校纠偏: {'md_section': '主要结果/人类对应物', 'current_text': '人类 IFG 的言语—手势整合证据', 'assessment': 'OVERCLAIM', 'problem': 'fMRI 激活重叠不能单独证明跨模态整合计算,也不能证明其与猕猴 VLPFC 单细胞机制功能同源。', 'recommended_fix': '限定为“跨条件激活重叠及候选功能对应”,把功能同源和演化前身明确标为作者推论。'} -> 评注: OVERCLAIM
- 补充要点: : (第 1 页)
- 补充要点: : (第 6 页)
- 补充要点: : (第 1 页)