一句话定位:这是一篇由前额叶研究者本人执笔的综述加初步数据报告:前半部分系统梳理执行功能(executive function)的定义与前额叶皮层(prefrontal cortex)自上而下(top-down)调控的证据链,后半用配对联结任务的新电生理数据追问一个悬而未决的问题——前额叶发出的"自上而下信号"究竟对应哪种神经活动。初步答案是:32% 的前额叶视觉神经元表现出配对选择性,其视觉响应潜伏期恰夹在下颞叶自下而上与自上而下信号之间,候选信号或'初步候选',与后文讨论的审慎口径一致。
研究背景
执行功能是多种神经系统协同运作的产物,是灵活达成特定目标的前提,但其定义历来因研究者而异:Baddeley 与 Della Sala 把它等同于工作记忆模型中的中央执行系统(提出可用双任务范式检验),Shallice 与 Burgess 列出需要"监督系统"的五类情境(计划决策、纠错排障、执行未熟练的新动作序列、判断危险与难度、克服强习惯反应),Rabbitt 归纳了执行控制的七个特征(应对新任务、启动与中断动作序列、阻止不当反应、快速任务切换、绩效监控、持续注意等),Smith 与 Jonides 则概括为注意与抑制、任务管理、计划、监控、编码五项。尽管表述不同,共性特征包括注意控制、行为的时间组织、复杂任务的计划调度、存取与操纵长时记忆信息、监控内外部状态等——每项都由不同的神经系统支撑,因此必须有一个系统来协调与监督其余系统。
前额叶正是这个协调者:前额叶损伤患者在多数心理测验上智商正常、长时记忆完好、知觉运动语言技能正常,但在需要建立新的适应性行动方案或在同等可能选项中取舍时,其智力活动深陷紊乱——判断、计划、决策贫弱,行为时间组织与工作记忆不良,缺乏洞察与远见,主动性下降,这类综合征被称为"执行功能障碍综合征"(dysexecutive syndrome)。然而,前额叶如何实现协调?一个被广泛接受的说法是它持续监控其他皮层与皮层下结构、并向下发送指令信号即"自上而下信号"。自上而下调制的存在已有大量证据,但这种信号本身的神经对应物(neural correlate)是什么,当时仍属未知——这就是本文要填补的缺口。
研究思路
全文的论证结构是层层收窄的漏斗。第一层用已有文献确立前额叶与后部皮层及皮层下结构的功能互动(冷却、TMS、fMRI 有效连接等),说明自上而下调制确实存在且具有行为后果;第二层分别以注意与长时记忆两大领域证明这种调制的内容——前额叶既过滤不该注意的信息,也向储存在颞叶的长时记忆发出检索指令;第三层从工作记忆入手构建一个"生理上说得通"的模型(图 1),把工作记忆拆成选择、暂存、输出、加工四个基本过程,主张自上而下信号对应其中的输出过程;第四层才落到作者自己的实验:既然 Tomita、Hasegawa 等已证明长时记忆检索受前额叶执行控制、下颞叶自上而下条件下响应潜伏期显著长于自下而上条件,那么在前额叶做配对联结任务的单细胞记录,寻找潜伏期"刚好居中"且具配对选择性的活动,就有资格作为自上而下信号的候选。这个"先定位通路、再定候选信号"的策略贯穿全文。
方法
作为综述,本文的方法部分主要是框架性论证;独有机理数据来自作者团队(Andreau and Funahashi, 2011)在猴外侧前额叶皮层的单细胞记录。实验用配对联结任务(paired association task)加 Go/No-Go 反应(图 3):'杜杆'杠杆。,注视 1 s 后呈现样本刺激 0.5 s——样本从 24 个视觉刺激(12 对任意组合的图形对)中随机抽取;随后注视点重现、进入 5 s 的延迟 1 期,猴须保持注视;延迟结束后再现一个视觉刺激,若是样本的配对联结物(matching stimulus),猴须在 0.5 s 内松开杠杆(Go)以获得奖励,若是其余 22 个刺激中的干扰物(distractor),猴须继续握杠杆熬过 1 s 的延迟 2 期(No-Go)。该任务要求被试记住任意配对联结,并在样本提示下从长时记忆中检索配对物,因此是检验"检索"这一执行成分的合适载体。
记录方面,作者从外侧前额叶采集 217 个神经元的活动,其中 68 个在样本期有统计显著的活动(sample-period activity)。分析要点有二:一是仿照 Sakai 与 Miyashita(1991)在下颞叶的经典做法,以"样本期对某配对之两个成员分别给出最强与次强响应"定义配对选择性(pair selectivity),并沿用其配对指数(pair index, PI)公式量化选择强度,以便与前颞叶神经元直接比较;二是测量样本期活动的起始潜伏期,与下颞叶在自下而上条件(73 ms)与自上而下条件(178 ms,Tomita 等 1999)下的潜伏期对照,用时间上的夹逼关系判断前额叶活动的信息流向。
主要结果
-
前额叶与后部皮层存在双向功能互动。冷却实验是奠基证据:冷却前额叶或下颞叶任一区,都会改变另一完好皮层的自发与任务相关放电、降低其刺激选择性,并造成延迟匹配任务的损伤(Fuster 等 1985);冷却双侧顶叶虽改变前额叶放电并引起伸手偏差、眼动迟缓不准、选择反应时延长,却不影响延迟任务成绩,说明顶叶只影响自下而上的感觉传递,自上而下的前额叶传出得以保留(Quintana 等 1989)。人类被试中,对前额叶施加 theta 簇经颅磁刺激(TMS)会降低纹外皮层对样本刺激的响应选择性并致工作记忆成绩下降(Lee 与 D'Esposito,2012)。发展的证据也一致:儿童前额叶-顶叶间自上而下有效连接的增强与抑制性眼动控制的年龄性改善显著相关(Hwang 等 2010)。
-
注意领域:额叶眼区(frontal eye fields, FEF)是自上而下注意信号的源头。低于诱发扫视阈值的一小束电流若先于目标出现,就能提升猴对目标亮度细微变化的检测力,产生内隐性空间注意的瞬时改善(Moor 与 Fallah 2004);而用蝇蕈醇失活 FEF 则造成空间选择性的视觉搜索缺陷(Wardak 等 2006)。机制上,当 V4 神经元感受野与 FEF 刺激位点所代表的视野位置一致时,V4 视觉响应被 FEF 微刺激增强(Moore 与 Armstrong 2003),FEF 中视觉响应神经元的空间选择性活动被认为就是注意的"心理聚光灯"(Thompson 等 2005)。在顶叶-额叶的分工上,猴做视觉搜索时:自下而上条件(pop-out,目标以颜色和朝向两个维度与干扰物截然不同、显著性自动吸引注意)下顶叶率先反映目标位置,自上而下条件(各干扰物与目标仅在一个维度上不同,需依赖记忆中的目标信息)下前额叶率先反映——自上而下信号起于前额叶(Buschman 与 Miller 2007)。人类 fMRI 中,指向注意的线索选择性激活额上回、下顶叶与颞叶皮层(Hopfinger 等 2000),空间与特征搜索信息在前额、顶叶区域加性地整合、构成"自上而下显著性地图"(Egner 等 2008),而 Granger 因果分析显示 FEF 与顶内沟对枕叶视觉区的自上而下影响显著大于反向,且 FEF→IPS 强于 IPS→FEF(Bressler 等 2008)。
-
长时记忆领域:检索特异性信息受前额叶执行控制。后部纵裂猴(posterior-split-brain)上,视觉线索传入一侧半球后,经胼胝体前部把指令传给另一侧半球去检索该线索的配对物——由于胼胝体前部是前额叶双侧通讯的关键通道,这一结果说明颞叶储存的信息其检索由前额叶掌控(Hasegawa 等 1998)。Tomita 等(1999)进一步证明大量下颞叶神经元在前端传入被切断时接收来自前额叶的自上而下信号,且其样本期活动起始潜伏期在自上而下条件下显著长于自下而上条件;自上而下信号缺位时行为表现受损。解剖上,前额叶与颞叶间的互连很强,且新近的狂犬病毒跨突触逆行示踪显示通路是分离的:V4 主要接收来自 46 区的输入,MT 则同时接收 46 区与 FEF 的输入(Ninomiya 等 2012)——不同额叶通路把功能不同的自上而下信号送达不同颞区。
-
前额叶自身的工作记忆机制可拆解为四个过程(图 1)。空间选择性延迟期活动(delay-period activity)是其暂存过程的神经对应物:它只在提示出现在特定位置时出现、只在正确操作试次中出现、持续时间随延迟长短伸缩;它既表征回溯信息(线索位置,占多数)也表征前瞻信息(即将到来的运动方向);群体向量分析显示群体活动方向在延迟期内从"线索方向"逐渐转向"运动方向"(Takeda 与 Funahashi 2004)。加工过程则不能用单个神经元解释,而应被视为具不同任务相关活动与空间选择性的神经元之间功能互动的产物——互动强度随任务条件与延迟进程动态变化(Funahashi 与 Inoue 2000;Constantinidis 等 2001),并受运动中枢反馈、边缘系统情绪动机信号与儿茶酚胺/单胺类调制输入的多重塑形。
-
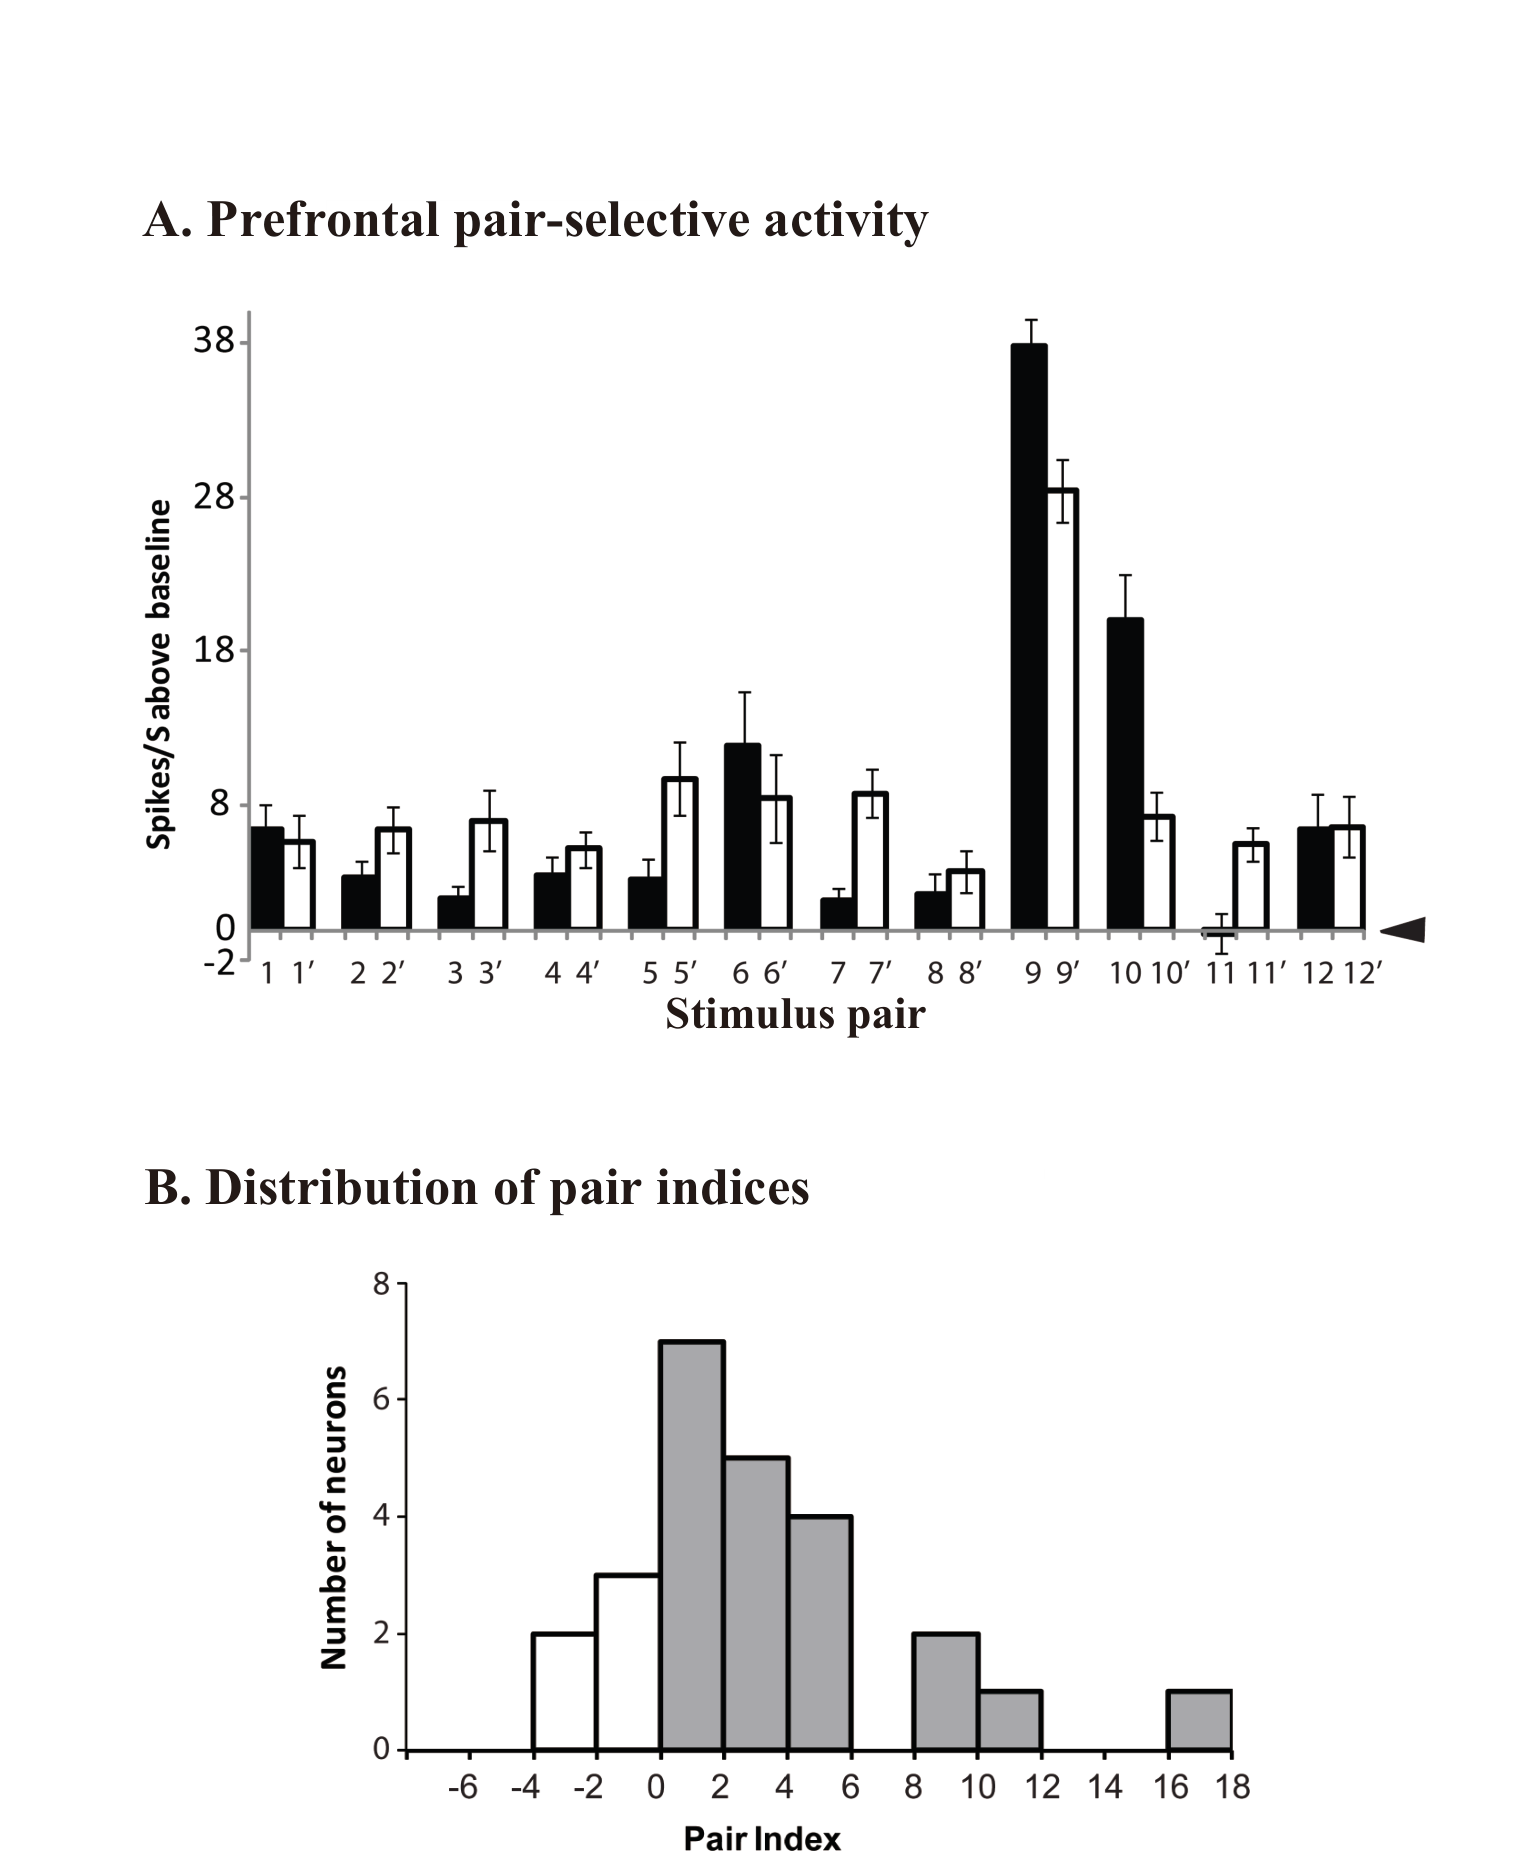
配对选择性视觉响应是自上而下信号的候选。在 217 个外侧前额叶神经元中,68 个有显著样本期活动;其中具刺激选择性的神经元内 32% 表现出配对选择性(图 4A),且正配对指数的神经元比例高于下颞叶——前额叶对联结信息的编码强于颞叶(图 4B)。时间证据是关键一步:前额叶样本期活动的平均起始潜伏期为 144 ms,长于下颞叶自下而上信号的 73 ms,却短于下颞叶自上而下信号的 178 ms。这个"时间夹心"恰好把前额叶放在视觉信息进入(自下而上)之后、颞叶检索完成(自上而下返回)之前的位置,支持配对选择性样本期活动可能是前额叶发往下颞叶、用以检索样本指定信息的自上而下信号。
图注解读
图 1 · 工作记忆的神经机制模型
原文图注:Fig. 1. A model for explaining a neural mechanism of working memory. This model is based on the results obtained by neurophysiological studies in the prefrontal cortex using spatial working memory tasks. (adapted from Funahashi, 2001).
这张示意图把工作记忆拆成四个相互衔接的神经过程:选择过程(selection process,对应感受线索期活动之类的知觉响应)、暂存过程(temporary storage process,对应空间选择性延迟期活动)、输出过程(output process,对应扫视相关活动等运动响应,也承载发往其他脑区的自上而下控制信号)、加工过程(processing process,被视为神经元间动态功能互动的产物,而非单神经元属性)。图中还画出了信号的进出:感觉输入进入选择与暂存过程,行为输出离开输出过程,长时记忆存取以双向箭头衔接暂存过程,而运动中枢反馈、情绪与动机信号、奖赏相关信号作为调制信号从旁输入。读图的要领是——模型中每一个框都对应着可在前额叶记录到的具体活动类型,宣言"抽象的中央执行"应被可观测的神经成分替换。此图支撑主要结果第 4 条,也是图 2 的构件单位。
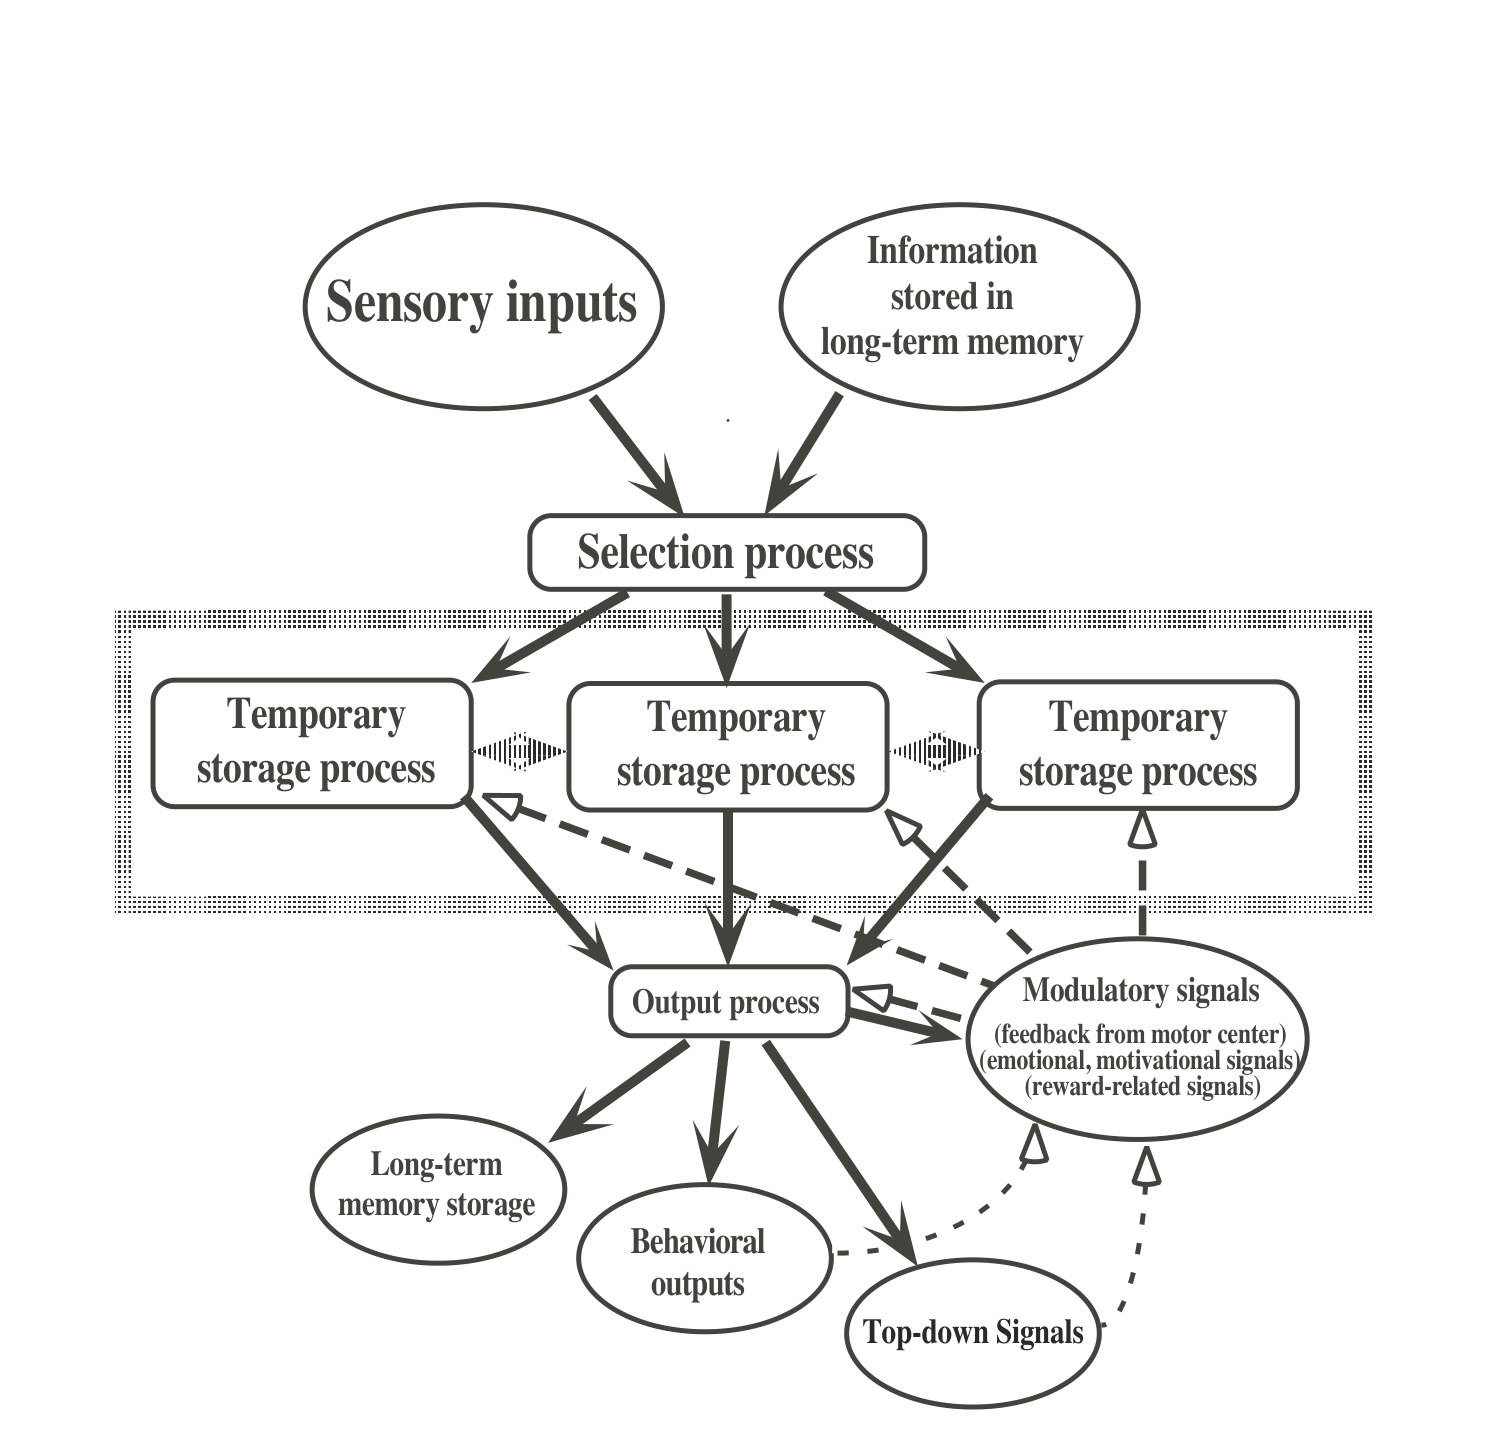
图 2 · 通用型与通道专用型工作记忆系统的互动
原文图注:Fig. 2. A schematic representation of functional interactions between a general-purpose working memory system and modality-specific working memory systems. Each working memory system includes neural components shown in Fig. 1, but processes different types of information.
这张图是图 1 的放大版场景:中心的"前额叶皮层-通用型工作记忆"(general-purpose working memory)监视(monitoring)并控制(controlling)周边多个"通道专用型工作记忆"(modality-specific working memory)系统——负责感觉加工的、负责运动加工的等等。每个专用系统内部同样包含图 1 的四个基本过程,只是加工的信息类型不同(视觉、听觉、动眼等)。图中箭头标出感觉输入直接进入感觉专用系统、运动输出由运动专用系统发出,而通用系统通过监视与控制箭头实施全局协调。读图要点有两个:其一,前额叶的优势地位来自解剖学——它与后部联合皮层多为往返连接,处在监控与指挥后部皮层的最佳位置;其二,自上而下控制信号被明确定义为通用型工作记忆的输出,是协调各专用系统的指挥棒。此图把执行功能"多系统协同"的抽象定义翻译成了可检验的架构,并与 Cohen 等的"情境信息"连接主义模型相互印证。
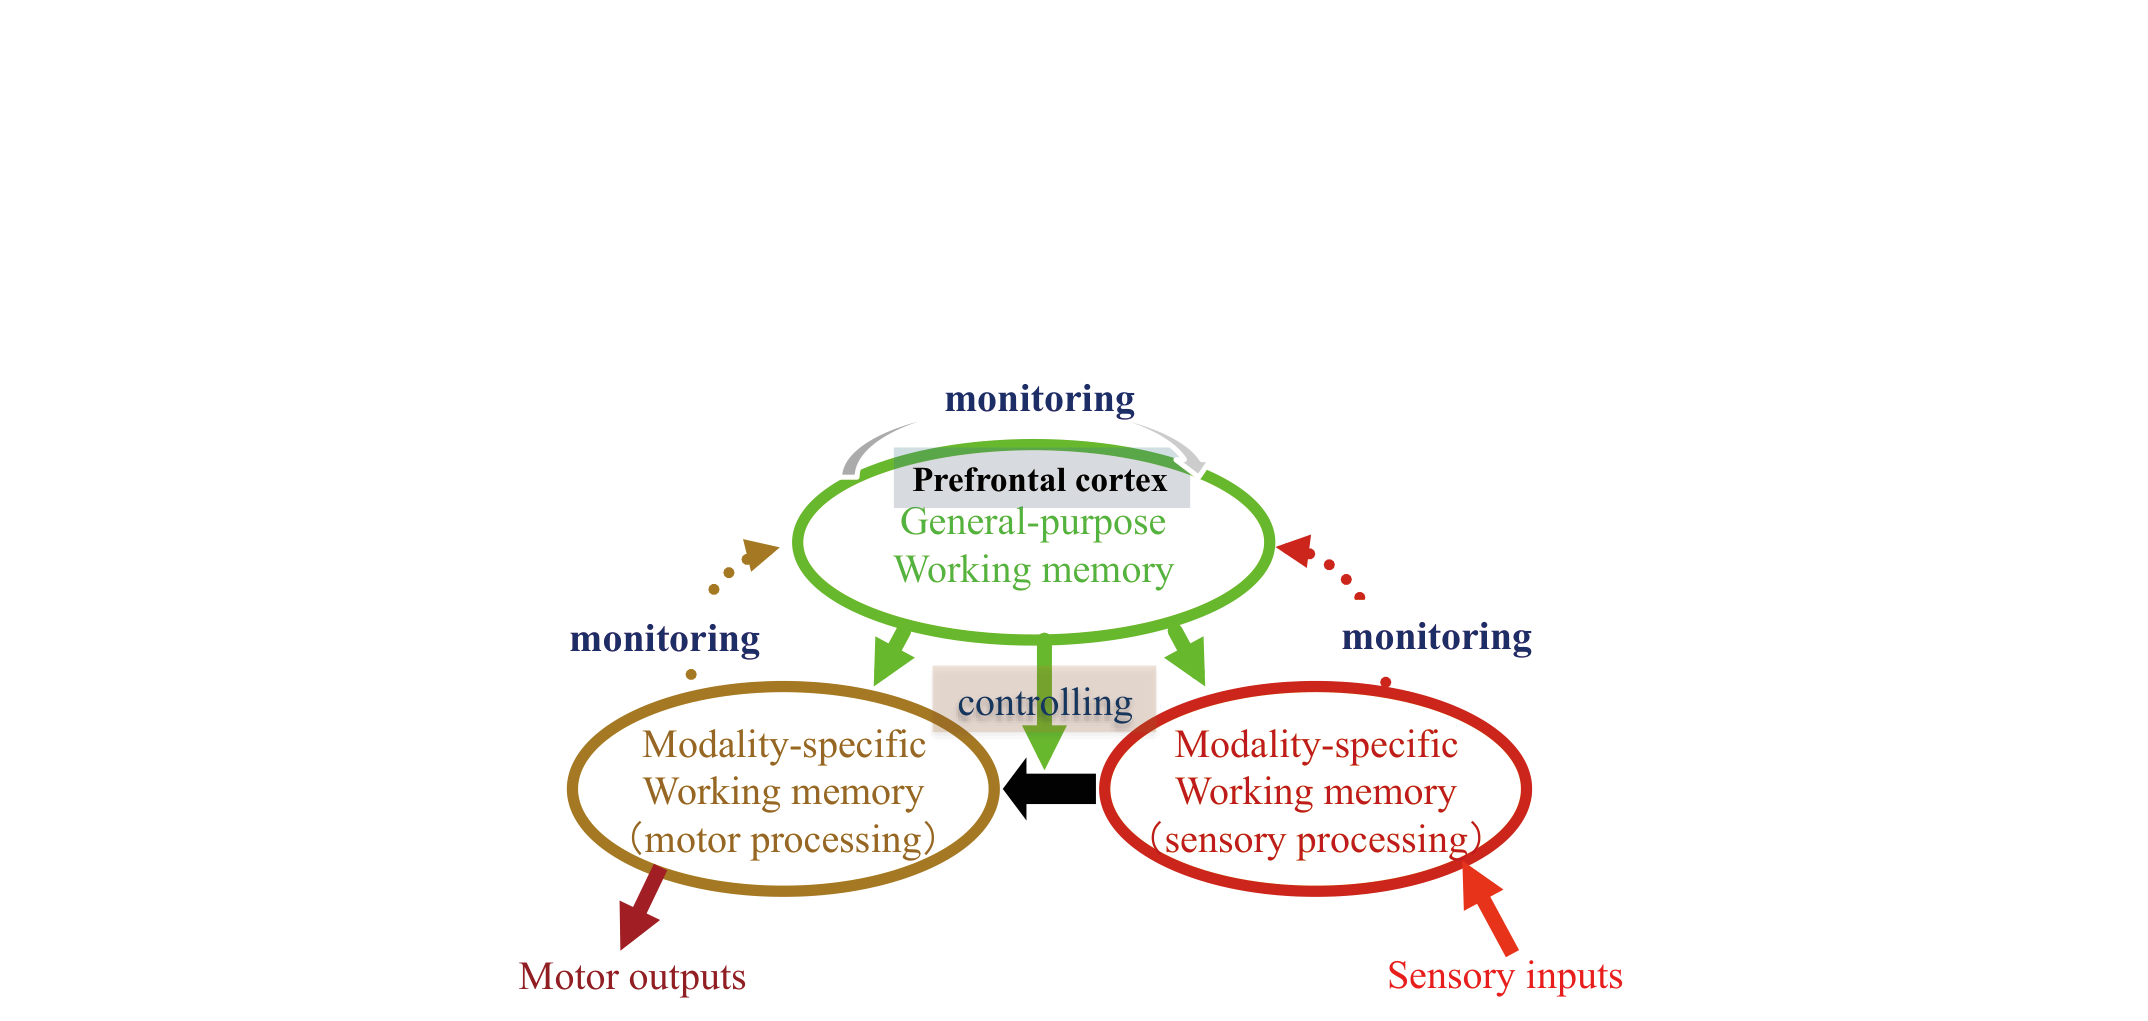
图 3 · 配对联结任务设计与刺激集
原文图注:Fig. 3. A. Schematic drawing of a paired association task that we used. B. Twelve pairs of visual stimuli that we used for the paired association task (adapted from Andreau and Funahashi, 2011).
A 是任务时序示意:按压杠杆→注视点(1 s 注视期)→样本刺激(0.5 s,从 24 个刺激中随机抽取)→延迟 1(5 s 保持注视)→检验刺激→若是配对联结物则在 0.5 s 内松杠杆(Go)拿奖励,若是干扰物则继续握杠杆经 1 s 延迟 2 后再松开(No-Go)。B 展示 12 对视觉刺激(24 个图形;删去'本实验的刺激集按同一精神构筑',或改为明确标注为推测(如'刺激形式原文未详述'))。读图时注意该设计的关键约束:样本与配对物之间没有任何感知上的相似性——联结是任意习得的,因此检验期对配对物的正确反应只能经由长时记忆检索完成;延迟 1 的 5 s 保证检索发生在没有当下视觉输入的窗口里。这张图支承方法部分,也是理解图 4 数据的前提。
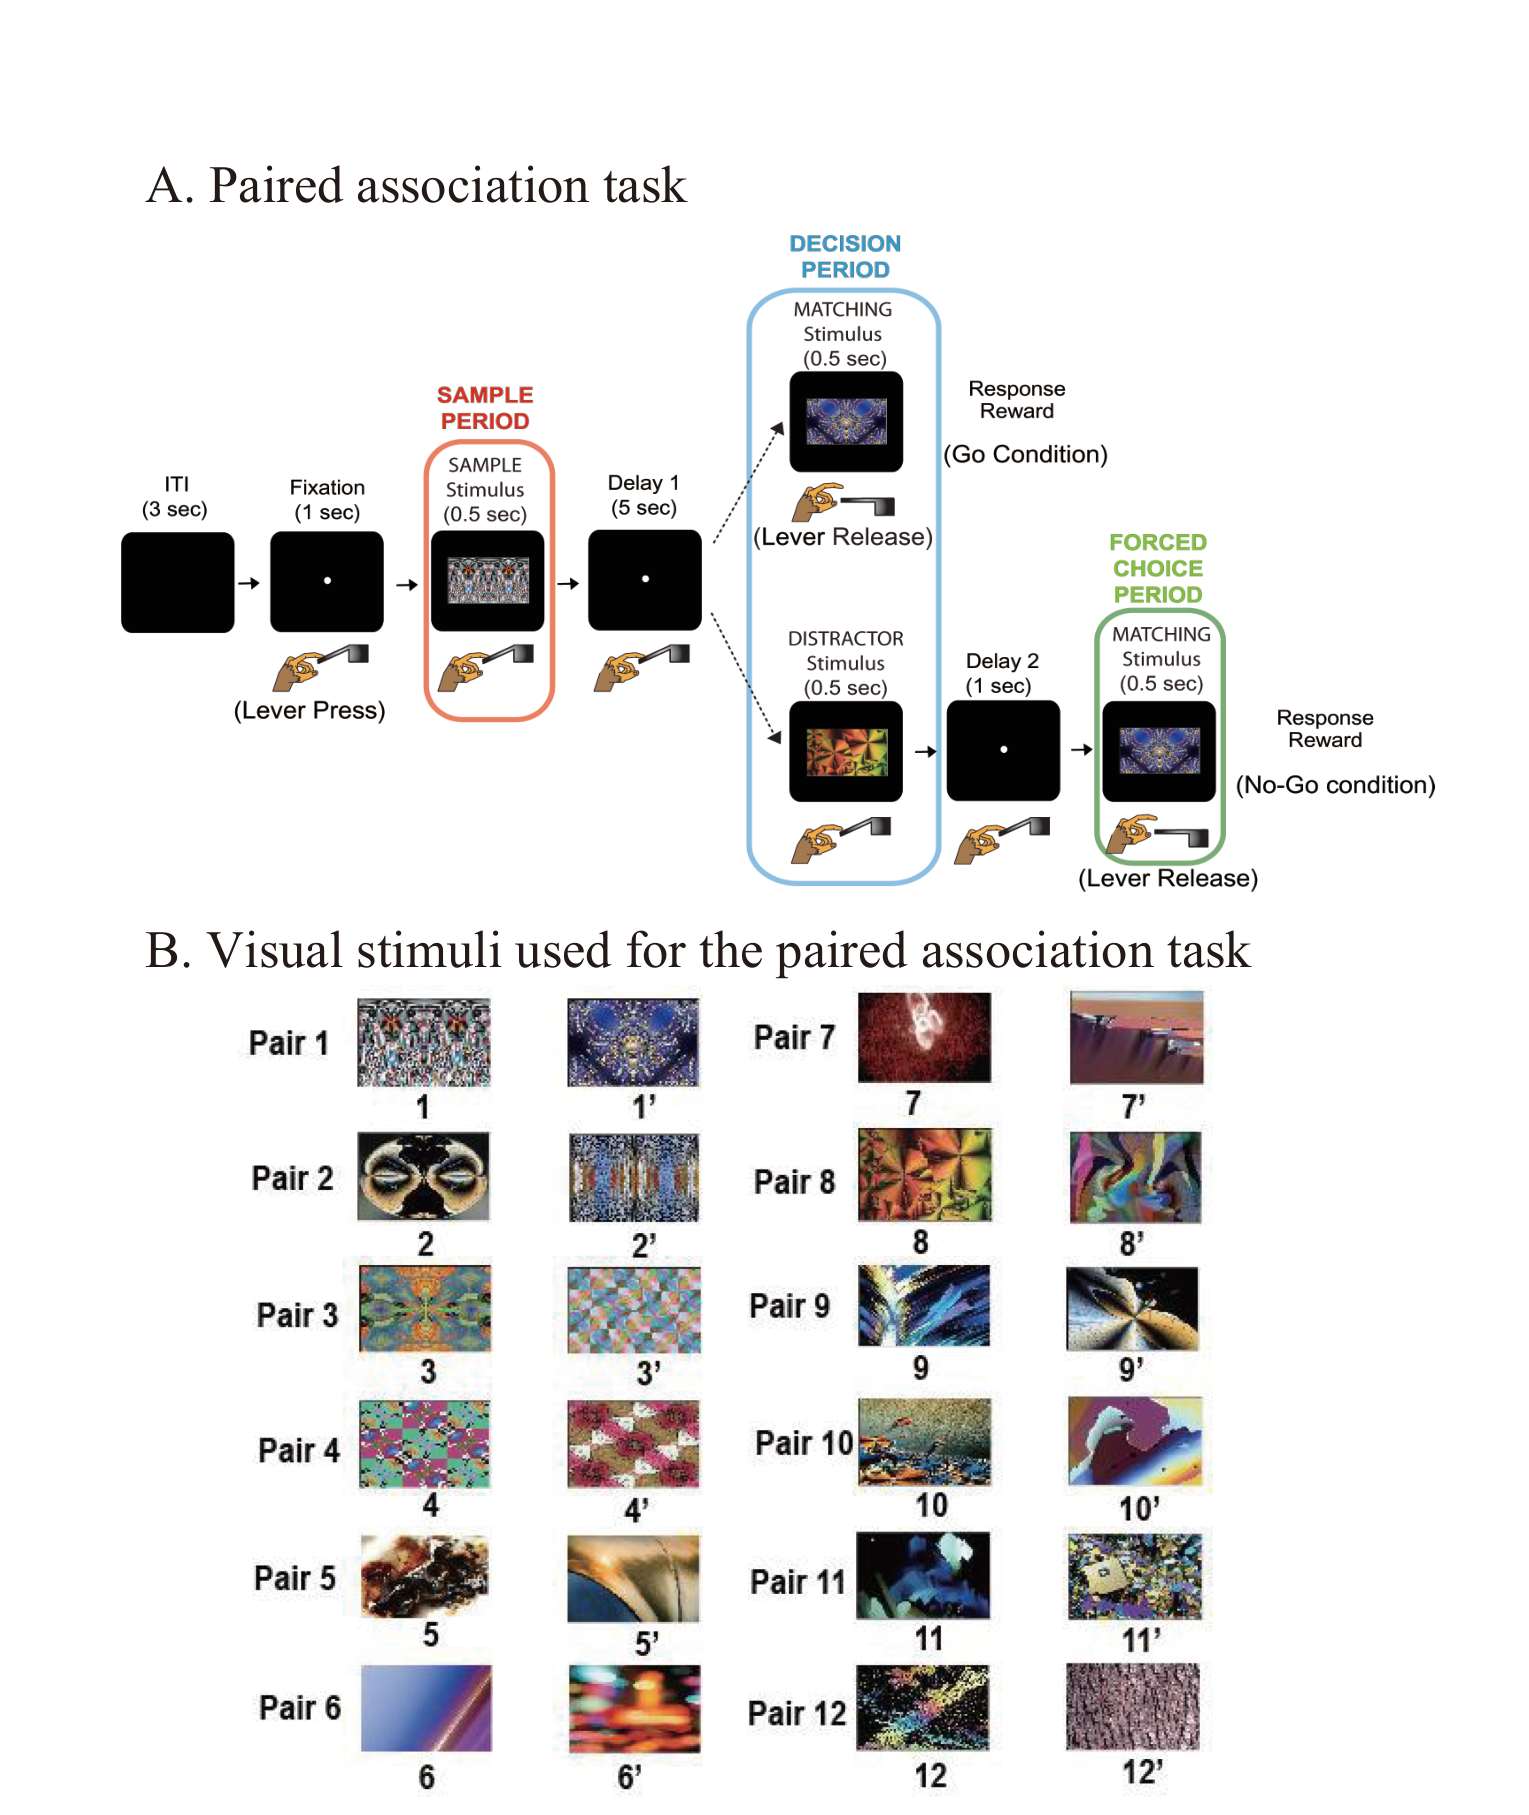
图 4 · 前额叶神经元的配对选择性与配对指数分布
原文图注:Fig. 4. A. An example of pair selectivity observed in the sample-period activity of a prefrontal neuron (L06501). In this example, the greatest and second-greatest sample-period activities were observed when stimulus pair 9 was presented as the sample stimulus. B. Distribution of pair indices, whose values represent the strength of the pair selectivity of sample-period activity. The method used to calculate pair indices was described by Sakai and Miyashita (1991) (adapted from Andreau and Funahashi, 2011).
A 给出配对选择性的单细胞实例:神经元 L06501 在样本期对第 9 对刺激的两个成员都响应,且该对的两个成员恰好占据其最强与次强响应的位置——这正是配对选择性的定义式证据。B 是全体数据的分布:横轴为配对指数(PI,按 Sakai-Miyashita 公式计算,正值代表配对两个成员的响应排名皆靠前),纵轴为神经元频数。读图要点是前额叶 PI 分布整体右偏、正 PI 神经元比例高于下颞叶的既往报告,说明前额叶对联结信息的编码强度不弱于颞叶、甚至更强。这张图为主结果"32% 的前额叶视觉神经元具配对选择性"与"配对选择性可能是自上而下信号的神经对应物"提供了定量底座。
讨论
作者的立场是把"执行功能"从抽象名词翻译成具体回路:前额叶凭借其与后部皮层及皮层下结构的广泛(多为往返的)解剖连接,处在既能监视又能指挥的最佳解剖位置;其通用型工作记忆系统的输出——自上而下信号——是协调各通道专用系统的指挥棒。注意与长时记忆两大领域是这套框架的两翼证据:注意领域里 FEF 对 V4 的增强效应与 FEF/IPS 对枕叶的 Granger 因果优势,说明自上而下信号可以定点增强特定位置的加工;记忆领域里 Hasegawa、Tomita、Sakai-Miyashita 系列工作说明自上而下信号可以被"内容特异化"——前额叶不是泛泛地"加把劲",而是携带特定联结信息向下颞叶发出检索指令。本文的初步数据把这一可能性推进了一步:前额叶内 32% 的视觉神经元表现出与下颞叶配对编码(pair-coding)神经元相似的性质,潜伏期又落在两个阈值之间,使配对选择性视觉响应成为目前最具体的候选。
作者同时坦承这份候选清单的局限:结论来自"初步结果"(preliminary results),样本量有限(217 个神经元、68 个样本期活动神经元);潜伏期证据是必而并非充分的——它只说明前额叶活动在时间上够格作为上游信号,尚未证明因果方向与决定性作用;因此文中反复强调"需要进一步研究来阐明自上而下信号的神经对应物及其特征"。与文献的对话还涉及:Baddeley 中央执行的概念在生理学上"无法定位",Ninomiya 等的分离通路提示自上而下信号可能是按目的地分流的家族,Braver、Blumenfeld 与 Ranganath 等则把前额叶在编码(腹外侧区)与检索(前部区)、工作记忆与长时记忆的分工铺陈为背景。
一句话总结
在我的理解里,这篇综述的价值在于把一个常常被挂在嘴边的术语——"自上而下"——逼到了可以实验裁决的位置:作者给出的模型(通用型 vs 通道专用型工作记忆)未必人人认同,但"潜伏期夹逼 + 配对选择性"这套候选信号的判定标准是干净可复用的。如果 32% 这个比例与 144 ms 这条时间窗在更大样本里稳住,那么前额叶的"执行"就不再是一个隐喻,而是一次具体可读出的检索指令;而在那之前,它是这篇综述留下的、值得继续追下去的悬念。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A] - Fig2: 提取质量
good,对齐度full,识别面板[A] - Fig3: 提取质量
good,对齐度full,识别面板[A, B] - Fig4: 提取质量
good,对齐度full,识别面板[A]
关键事实与局限性声明
- 审校纠偏: ISSUE_001:'本实验的刺激集按同一精神构筑'——原文未描述 Andreau and Funahashi (2011) 刺激集的具体形式,属无依据推测
- 审校纠偏: ISSUE_002:'有力候选'较原文 'may be / might be a candidate' 的初步语气偏强(讨论部分已恰当对冲,属轻微口径不一致)
- 补充要点: Rossi et al. (2007):单侧前额叶损伤联合胼胝体与前连合切断的猴,线索位置频繁切换时出现严重的目标-干扰物辨别缺陷,是'前额叶按任务需求灵活分配注意'的关键损伤证据(原文 3.2 节),笔记注意领域未提及
- 补充要点: Everling et al. (2002):前额叶神经元只在被注意位置区分目标与非目标、非注意位置区分消失——'前额叶过滤不该注意的信息'这一笔记论点(研究思路第二层)的直接实证来源未被引用
- 补充要点: 前额叶在长时记忆中的半球与区域分工:右前额叶偏检索、左前额叶偏编码(Rossi et al. 2001)、腹外侧区编码预测回忆成功率(Rugg/Brewer/Wagner)、Braver et al. (2001) 背外侧-腹外侧-前部三区在工作/长时记忆中的分工——笔记仅在讨论末一笔带过,这部分是原文 3.3 节的主体内容之一
- 补充要点: Johnstone et al. (2007) 重度抑郁中前额叶-皮层下自上而下调节失败的证据(原文 3.1 节末)