本研究探索了一种逆向推断思路:在活体状态下难以直接追踪单个突触权值动态的情况下,通过分析新异刺激与熟悉刺激诱发的神经元放电率分布差异,反推皮层回路所遵循的可塑性学习规则。作者利用猕猴下颞叶皮层(ITC)记录数据,推导出一套“低发放率抑制、高发放率增强、且阈值随细胞平均活性滑动”的速率型学习规则,并通过循环网络动力学模拟验证了该规则在维持网络稳态的同时能够定量重现实验观测。
研究背景
突触可塑性理论试图解释经验如何改变神经回路,但离体测得的学习规则与活体视觉表征之间一直隔着测量层级。单个突触可以在受控条件下表现增强或减弱,完整皮层中的放电却同时受到大量兴奋、抑制及回返输入影响;即使重复观看后响应改变,也很难直接判断是哪类连接被修改。下颞叶为缩小这一距离提供了丰富材料:短时重复常使视觉反应下降,长期熟悉化则既可降低平均活动,又可能提高选择性,并让某些推定兴奋性神经元对最有效刺激的反应更强。一个能解释经验效应的规则,需要同时容纳整体减弱与少数强反应增强。
以往模型通常先选定一种学习规则,再判断网络是否出现预期现象,但不同规则可能产生相似的定性结果,仅重现平均放电下降并不足以约束机制。反应分布提供了更细的信息:均值、低反应部分和高反应尾部如何分别变化,可以限制增强与减弱在不同活动水平下的关系。不过,从分布反推突触仍需要桥梁,因为新异和熟悉刺激集合并不等同于对同一刺激逐次追踪的纵向数据。细胞类型也不能被忽略,若把兴奋性和抑制性神经元合并,少数高反应端的增强可能被总体抑制掩盖,进而推得错误的规则形状。
本文建立兴奋—抑制速率网络,在输入分布、单调且稳定的输入—输出函数、反应秩次以及可分离学习规则等假设下,将新异与熟悉刺激的放电分布差异转换为输入变化,再估计学习对突触后活动水平的依赖。作者用不同任务数据比较推断结果,并把得到的规则放回网络检验能否重现分布变化和稳定学习。其贡献是把规则选择变成受数据约束的推断,而不是直接观测了活体突触改变。回返连接是模型中的候选塑性位置,波形分类也只给出推定细胞类型;阈值随细胞活动统计量变化的横向关系,尚不能证明同一细胞的阈值如何随时间移动。
研究思路
作者的总策略是把问题倒过来做:与其假设一条规则再看网络行为是否吻合,不如从"学习前后反应分布如何变化"这一可观测量出发,反解出与数据一致的规则形态。他们构建了一个由兴奋性与抑制性神经元组成的速率网络模型,可塑性只放在兴奋—兴奋(E-to-E)连接上,并假定学习规则是术前、术后发放率的可分离函数 ΔW(ri,rj)=fpost(ri)fpre(rj)。在这个框架下,突触输入的变化 Δh 与反应分布的变化之间有解析关系,从而 fpost(ri)——即规则对术后发放率的依赖——可以从分布差异中估计出来。逻辑链的关键一步是假设经验主要改变回环(recurrent)突触而非外部输入:图 1 显示新旧反应的差异要到活动起始后几十毫秒才拉开,正符合这一点。随后作者用两个实验室、两种行为任务的数据交叉验证规则的一致性,再把提取出的规则放回模拟网络,检验它能否在连续学习多个新刺激时保持稳定、并复现数据中的表征变化。
方法
数据来自两个实验室、两种任务的猕猴(Macaca mulatta)ITC 记录。第一种是被动注视任务:每个神经元分别对 125 张新异图与 125 张熟悉图各测一次反应,图形呈现 200 ms、间隔 50 ms;共 88 个神经元,按胞外锋电位波形宽度分为 73 个推定兴奋性与 15 个推定抑制性。第二种是调暗检测(dimming-detection)任务:猴子须在注视图形亮度轻微下降时松杆应答(以此促使动物注意图形),每侧记录 10 张熟悉与 8 张新异图形,熟悉图形在约一个月的每日训练中被看过数千次;共记录 221 个 ITC 细胞,锋宽分布的双峰不易截然分开,故取分得很开的两个阈值(500 μs 与 250 μs)归类,得 41 个兴奋性与 27 个抑制性。全部分析取刺激起始后 75–200 ms 的发放率。
推断流程(图 2)分四步:先由新异刺激的反应分布(形态近似对数正态)构造 f-I 曲线(transfer function Φ),依据两个假设——f-I 曲线单调递增,以及新异刺激的输入电流服从高斯分布(基于大量输入按中心极限定理趋于正态)——按秩把发放率与输入电流一一配对(图 2b–d);再用 Φ 的反函数把熟悉刺激的发放率映射回输入电流,假定转移函数本身不随学习改变;在"学习不改变反应的秩次"(rank preservation)这一假设下,把同一秩次的新异与熟悉输入相减,得到输入变化 Δh 随学习前发放率的函数(图 2e–g);最后扣除常数偏置并重新定标,得到 fpost(ri)。Δh 的显著性由重复从新异分布抽样构造出的 95% 置信区间判定;平滑采用 lowess。作者还报告,改用非高斯输入假设、改从熟悉分布出发,或给输入加噪声放宽秩守恒假设,结果在定性上均不变(补充图 2–4)。
主要结果
-
经验效应出现的时间进程支持回环突触假说:在被动注视任务中,兴奋性与抑制性神经元对新异(红)与熟悉(蓝)刺激的平均及最大反应的差异,起始于活动开始后几十毫秒(图 1),提示改变主要来自回环输入而非外部输入的瞬间通路。
-
反应分布的形态:个体神经元的发放率分布近似对数正态;熟悉刺激的分布整体较新异刺激左移(平均发放率更低),但右侧长尾延伸更远,即少数图形在熟悉后反而反应更高(图 2a)。
-
规则形态依赖细胞类型:合并全部神经元时(被动注视 n=88,图 3a;调暗检测 n=221,图 3d),输入电流随学习在全发放率范围只减不增;但分组后,推定兴奋性神经元低发放率呈抑制、高发放率呈增强(图 3b,e),推定抑制性神经元则全范围只减(图 3c,f)。不分组时兴奋性神经元高发放端的增强会被抑制性神经元更强的负向变化完全掩盖。
-
个体层面三分类与滑动阈值:对分布差异显著的个体神经元(兴奋性 30 个、抑制性 10 个,Mann-Whitney U 检验,5% 显著水平),兴奋性神经元可分出只负(10 个)、只正(6 个)、先负后正(14 个)三类(图 4a);把"先负后正"一类平均,得到低率抑制、高率增强的曲线,与离体实验一致(图 4c)。定义增强与抑制的分界阈值 θ,发现 θ 与该神经元反应的均值(ρ=0.85,P=10⁻³)和标准差(ρ=0.92,P=2.9×10⁻⁶)强相关(图 4e,f),而归一化阈值 θ′ 的相关消失(ρ=0.15,P=0.61;ρ=0.30,P=0.30,图 4g,h);θ 约位于均值以上 1.5 个标准差——多数刺激引起抑制,只有反应最强的少数刺激引起增强。
-
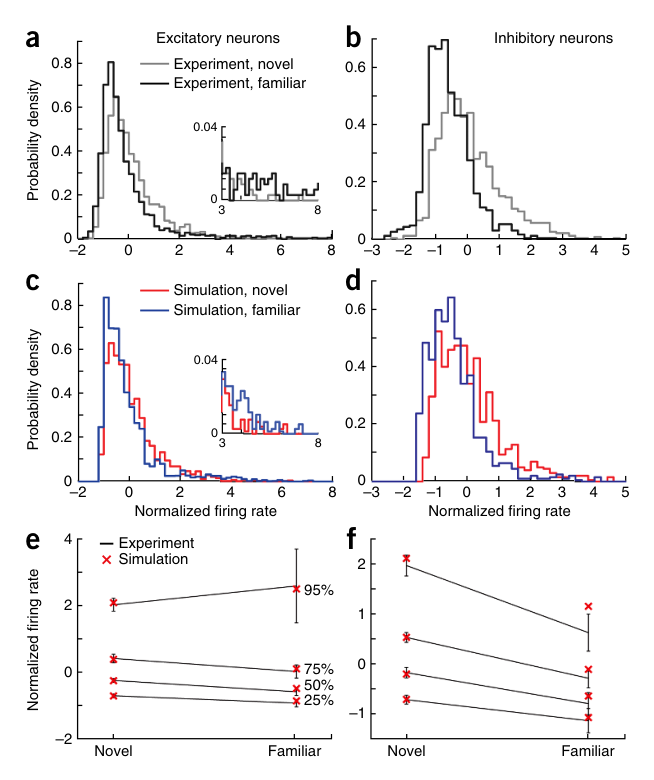
网络模拟定量吻合数据:把数据提取的 fpost 与线性 fpre,加上突触权重总和守恒约束(等价于 fpre(rj)=rj−mean(r),才避免了 Hebbian 规则典型的权重爆炸/塌缩不稳),放入 NE=4000、NI=1000 的速率网络学习多个无相关模式。学习后兴奋与抑制神经元的平均反应均下降、少数高发放兴奋神经元上升;除兴奋性的高百分比(如 95 分位)外各分位数均下降;模拟所得的新旧发放率分布(图 5c,d)与实验分布(图 5a,b)及分位变化(图 5e,f)互相对应,学习使选择性提高、表征更稀疏(sparser)。
图注解读
图 1 · 新旧刺激反应的时间进程
原文图注:Figure 1 Visual response of inferior temporal cortical (ITC) neurons to novel and familiar stimuli. (a–d) Time course of mean (a,b) and maximal (c,d) visual responses of ITC excitatory (a,c) and inhibitory (b,d) neurons obtained in a passive viewing task22. Solid curves are activities averaged over all neuron for novel (red) or familiar (blue) stimuli, and shaded regions represent mean ± s.e.m. of activities averaged over individual neurons (a−d). The gray horizontal bar represents the visual stimulation period. For more details of the experiment, see Online Methods and ref. 22.
这张图是被动注视任务的总貌。四个小panel分别给出兴奋性(a,c)与抑制性(b,d)神经元的平均反应(a,b)与最大反应(c,d)随时间的走向,红线为新异刺激、蓝线为熟悉刺激,灰色横条标出视觉刺激时段。读图的关键在于两条曲线何时分开:兴奋性与抑制性神经元的平均反应在熟悉刺激下更低,而兴奋性神经元的最大反应在熟悉刺激下更高,这种差异不是刺激起始瞬间就有的,而是在起始后几十毫秒逐步显现。这一时间差正是作者把经验效应归因于"回环输入可塑性、而非外部输入改变"的实验依据,也支撑了上文的第 1 条结果。
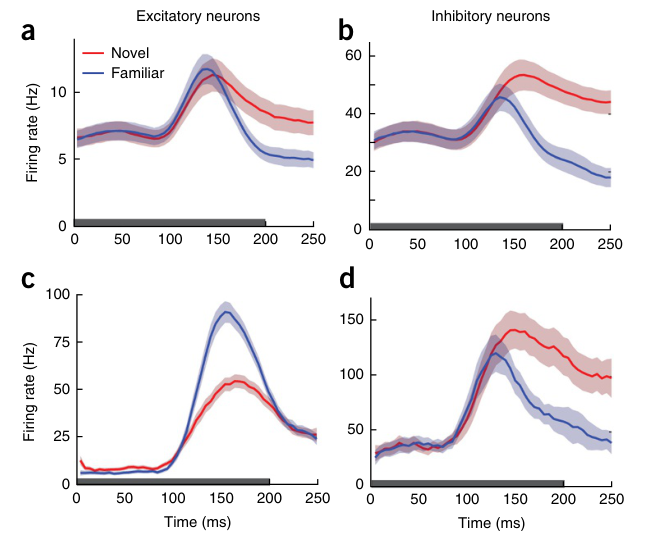
图 2 · 从分布反推规则的流程示意
原文图注:Figure 2 Inferring learning rules from distributions of firing rates. (a) Distributions of firing rates of a single ITC neuron in response to novel (red) and familiar (blue) stimuli. (b−d) Deriving a static transfer function Φ from the distribution of visual responses for novel stimuli. (b,c) Inverse cumulative distribution functions of firing rates (b) and input current (c) to novel stimuli, obtained by ordering them according to their rank. Input currents were assumed to follow Gaussian statistics and were normalized by their means and s.d., yielding mean and variance 0 and 1, respectively. Red asterisks are the median firing rate and input current (p = 0.5). (d) Input current–output firing rate transfer function Φ. The red asterisk in d shows the firing rate and input current for p = 0
(原文图注在 p = 0.5 的表述处截断;按正文叙述,e,f 给出新异与熟悉刺激发放率及对应输入电流的反累积分布,g 以学习前发放率为横轴给出输入变化与学习规则对术后发放率的依赖,灰色区域为 95% 置信区间。)
这张图是全文方法的浓缩演示,用单个 ITC 神经元对新异(125 个)与熟悉(125 个)刺激的反应分布走一遍四步推断:a 把两套分布摆在一起,可见熟悉分布左移而右尾更长;b,c 按秩排列发放率与(归一化后的高斯)输入电流,红星对应中位数(p=0.5);d 按秩配对得到 f-I 曲线 Φ,形态与离体测得的锥体细胞 f-I 曲线定性一致;e,f 用 Φ 的反函数把熟悉分布映射回输入空间,同一秩次上下比较即得逐秩输入变化;g 汇总为输入变化随学习前发放率的曲线,再经平移与重定标得到 fpost(ri)。它支撑上文的第 2 条结果,也是"分布差异足以反推出规则"这一主张的直观证据。
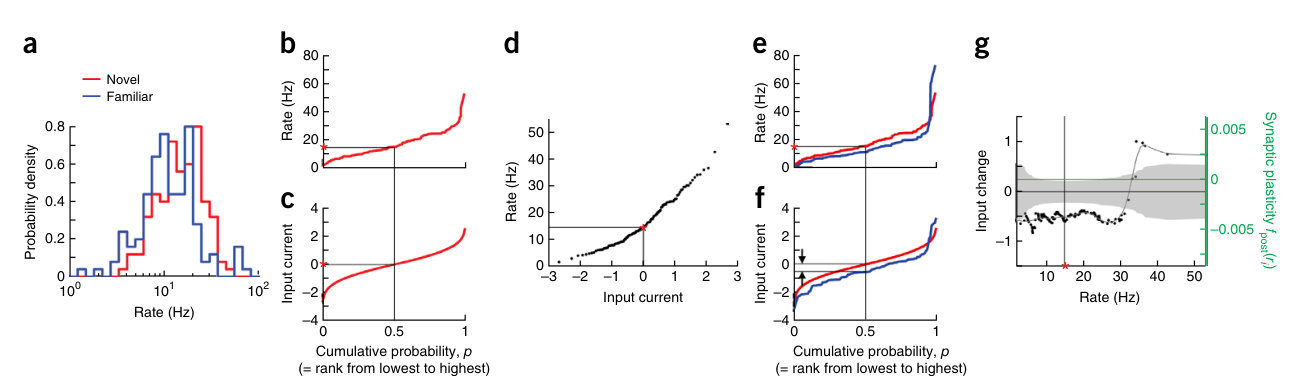
图 3 · 群体平均与分细胞类型的输入变化
原文图注:Figure 3 Effect of visual experience in ITC neurons and their dependence on different cell types. (a−c) Input changes obtained from visual responses of ITC neurons in monkeys performing a passive viewing task. The input currents were obtained from the distributions of firing rates for novel and familiar stimuli that were averaged over all recorded neurons (n = 88). Only negative changes are observed with learning (a; see Online Methods for smoothing procedure). When neurons were grouped as putative excitatory (n = 73) and inhibitory (n = 15) neurons, excitatory neurons showed negative changes for low postsynaptic firing rate and positive changes for high rate (b), while inhibitory neurons showed only negative changes (c). (d−f) Input changes obtained in monkeys performing a dimming-detect
(图注截断处:d–f 为调暗检测任务的对应分析,全部神经元与抑制性神经元仍只见负向变化,推定兴奋性神经元则负正兼有;细胞类型按锋宽阈值分出 41 兴奋性与 27 抑制性。)
这是核心结果图。每幅图横轴为学习前(新异刺激)的术后发放率,纵轴为输入变化 Δh:负值意味着熟悉化使 recurrent 突触输入减小。上下两排是两种任务(a–c 被动注视,d–f 调暗检测),左右三列分别是全部神经元、推定兴奋性、推定抑制性。读图要点是曲线穿越零线的位置与走向:合并全部神经元时两条任务都只在零线下方(a,d),说明平均而言学习是"减法";分成细胞类型后兴奋性神经元出现明确的"低率在零下、高率到零上"的斜向曲线(b,e),抑制性神经元则全程贴在零下(c,f)。这直接支撑第 3 条结果,并揭示了一个方法论陷阱——不分组会漏掉兴奋性神经元在高发放端的增强效应。
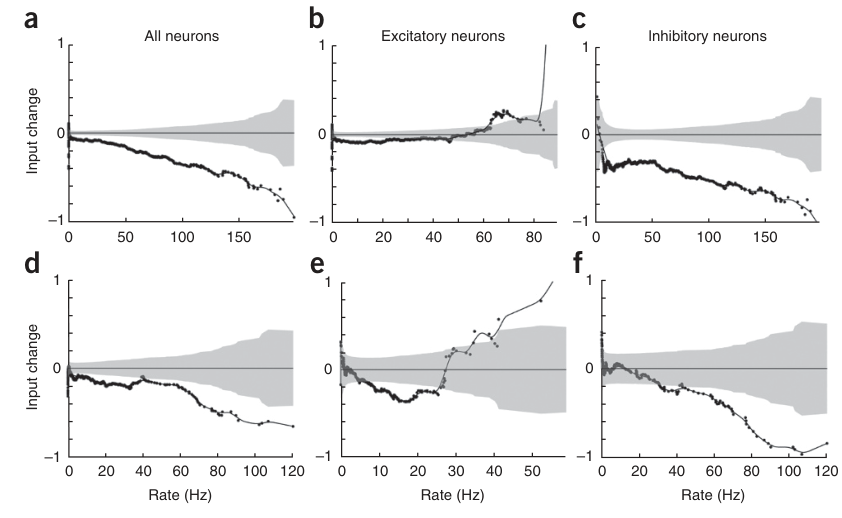
图 4 · 个体神经元分类与阈值—活动相关
原文图注:Figure 4 Effect of visual experience in individual ITC neurons and regulation of learning rules. (a,b) Input changes obtained from visual responses of individual excitatory (a, n = 30) and inhibitory (b, n = 10) neurons. Firing rates of postsynaptic neurons to novel stimuli were normalized by their mean and s.d., and input changes were smoothed (see Online Methods). Neurons were classified into three categories: those showing only negative changes (orange; 10 excitatory and 9 inhibitory neurons), only positive changes (blue; 6 excitatory neurons and 1 inhibitory), and both negative and positive changes (green; 14 excitatory neurons). Dark curves are example neurons in each class. (c,d) Average input changes in excitatory neurons (c) and inhibitory neurons (d), with shaded areas representi
(图注截断处:c,d 阴影为神经元间 1.96 s.d.;e–h 为阈值 θ 与反应均值(e)、标准差(f)的散点及相关系数,以及归一化阈值 θ′ 与二者(g,h)的对照。)
图 4 回答"个体神经元是否真的各有一条先抑后扬的规则"。横轴换成每个神经元自身归一化后的发放率(均值 0、标准差 1),不同颜色为三类输入变化形态:橙色只减、蓝色只增、绿色先减后增。读图时应注意:绿色曲线族的"穿零点"位置因神经元而异;e,f 两幅散点图表明穿零点 θ 随着神经元自身反应均值与标准差同步右移(ρ=0.85 与 ρ=0.92),而 g,h 中把 θ 除以各自均值和标准差得到 θ′ 后,这种相关消失——即阈值并不固定在某个绝对赫兹数上,而是跟随每个神经元的活动水平滑动,θ′ 约为 +1.5 个标准差。该图支撑第 4 条结果,也是"此规则与 BCM 型滑动阈值机制相呼应"这一论点的直接证据。
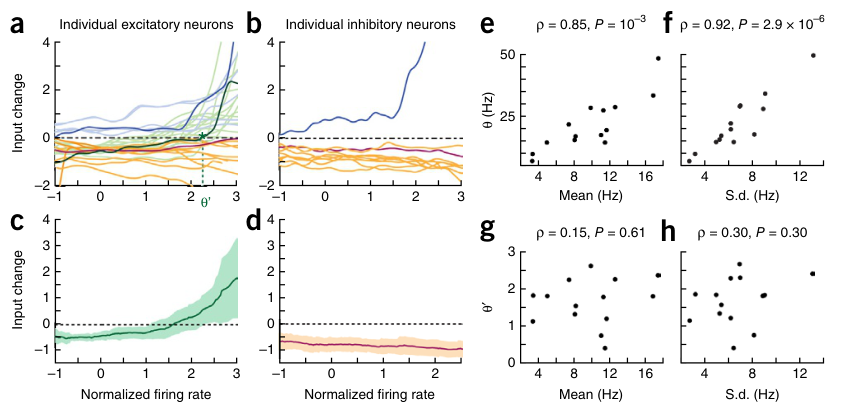
图 5 · 模拟与实验分布的定量对照
原文图注:Figure 5 Comparison between simulated and experimental data. (a,b) Distributions of normalized firing rates of excitatory (a) and inhibitory (b) neurons for novel (gray) and familiar (black) stimuli, obtained from experiment. The distributions were obtained from the activities of individual neurons showing characteristic input changes in each cell type (green curves in Fig. 4a for excitatory neurons and orange curves in Fig. 4b for inhibitory neurons). Firing rates for novel stimuli were normalized by the mean and s.d. for each individual neuron and distributions of normalized firing rates were averaged over neurons in each cell type (gray). The distributions for familiar stimuli (black) were obtained similarly, except that firing rates were normalized with the mean and s.d. of firing rat
(图注截断处:c,d 为模拟所得新异(红)与熟悉(蓝)的归一化发放率分布;e,f 为 25/50/75/95 分位在新旧刺激间的变化,实验(黑色)与模拟(红色叉)对照。)
这张图是模型的"验收单"。上排(a,b)为实验:兴奋性与抑制性神经元各自按个体均值、标准差归一化后的新异(灰)与熟悉(黑)发放率分布;中排(c,d)为模拟网络学习后得到的同构分布;下排(e,f)把比较压缩成四个分位数的迁移,横轴为归一化发放率,黑点为实验(误差棒为神经元间 s.d.),红叉为模拟。读图关键有三处:熟悉分布相对新异分布整体左移且兴奋性分布更尖、更稀疏;模拟与实验的同色曲线形状可逐段对上;分位图上唯一向上移动的是兴奋性 95 分位(高反应端少数神经元上升),其余分位均下移。这支撑第 5 条结果——数据提取的规则放进网络后,平均活动下降、选择性升高、表征稀疏化的三件事都能定量再现。
讨论
作者把发现归纳为三点:推断出的 E-to-E 规则以抑制为主但保有高发放率增强,这一"抑制占优"的形态正是数据中平均发放率下降的关键,而先前的 Hebbian 型学习规则给不出这一点;阈值随神经元活动水平(均值与标准差)滑动,与 BCM 规则(Bienenstock-Cooper-Munro rule)中"修正阈值是术后活动动态函数"的思想相呼应,除稳定学习外还可能让发放范围各异的神经元都能同时经历增强与抑制,从而扩大群体反应范围、提高选择性;抑制性神经元的变化不需要抑制性通路的可塑性——兴奋性子网平均活动下降即可经由固定的兴奋→抑制连接传导出来。作者也坦承限制:数据只提供了神经元"生命中某一时刻的快照",无法检验滑动阈值的时间尺度;可分离规则与权重总和守恒只是几种尝试中较简单的一种,更接近离体实验(如电压依赖、钙基)的更一般规则形式有待探索。与文献的对话还有一层:他们强调此前的前馈或回环学习模型都没有做过新旧反应分布的定量比较,而他们的方法可以推广——若能拿到学习前后输入层与输出层的活动,前馈与反馈回路的可塑性同样可被推断,不同塑性位点可借反应出现时间的先后区分(前馈效应应即刻出现,回环效应有内禀/突触延迟,自上而下效应约 100 ms 后才显现),并给出可检验预测:追踪同一批刺激由新变熟悉的纵向实验中,初始反应最强的图形应随重复而升高。
一句话总结
该研究建立了从活体神经元放电率稳态分布反推微回路突触学习规则的统计推断框架,所得结果呈现为具有滑动阈值特性的 BCM 型速率规则。其推导依赖于输入可分离性、单调激活函数、高斯输入分布及秩次守恒等理论前提,通过分布变化与秩次映射重构出的是可塑性规则的唯象动力学形态,为连接离体突触机制与活体表征演化提供了计算桥梁。