本方法学综述系统讨论如何将高时间分辨率的电生理测量(EEG/MEG 与事件相关电位 ERP)同高空间分辨率的代谢成像(fMRI/BOLD)进行多模态整合。文章主要涵盖两个核心领域:无任务状态下的大脑自发活动(静息态 α 节律与默认网络)以及实验驱动的任务态神经动力学(oddball-P300 与伽马同步震荡);同时结合中枢神经药物(苯二氮䓬类、卢非酰胺、尼古丁、氯胺酮等)在神经精神系统中的药理学干预作为定位模型,探讨多模态电生理在临床生物标志物开发与患者亚群分层中的应用路径。
研究背景
EEG 与 fMRI 各自提供不同的时间和空间信息:EEG/ERP 能记录毫秒级神经电活动,BOLD 则显示较慢的代谢与血流分布。多模态研究希望同时知道“何时发生”和“在哪里发生”,但头皮信号混有肌肉和其他非脑源伪迹,高频振荡尤其容易受到污染。仅有源定位也不能保证机制对应,因此需要把头皮观测、源模型、行为与药理扰动放在同一条验证链中。药物 EEG 的传统正是利用药物对递质系统的选择性作用,作为检验网络与发生器的探针。
多模态结合也不是简单把两种图叠在一起。α 节律的源、静息态网络与不同频段可能有不同对应,某种电活动与 BOLD 的相关并不表示一一同源。任务态研究还要把刺激后的时间顺序分清:早期视觉中继、P300、伽马同步和行为表现可以对应不同网络。若药物只改变某一时段或频段,而不改变传统 ERP 波形,就能帮助识别单模态分析遗漏的机制。置换检验和多队列验证则是避免小样本与过学习的重要保障。
Boeijinga 的综述从无任务的 α 与静息网络讲到 oddball、P300 和伽马同步,并用苯二氮类、卢非酰胺、尼古丁、氯胺酮等实例说明源定位、时频、相位和 BOLD 如何互补。文章希望回答:电活动与代谢网络怎样对齐,药物能否帮助区分不同加工阶段,以及这些标记能否用于临床分层。其价值在于提供研究路径而非统一结论:电与代谢各自只描述部分过程,对齐方式决定能观察到什么,传感器空间的同步也不能直接推出脑内发生器或因果连接。
研究思路
全文的逻辑骨架是"从静息到任务、从定位到计时"。第一部分处理无任务大脑:先用体素化方法(sLORETA 等)把头皮电位反演为电流密度分布,刻画 α 节律的皮层源;再进入数据驱动的模式搜索——低频 BOLD 的独立成分分析(ICA)揭示静息态网络(resting state network, RSN,含默认网络),并用同步 EEG-fMRI、MEG-fMRI 检查电振荡与代谢网络能否对上。第二部分处理"被实验线索唤起的工作大脑":以视觉 oddball/持续操作任务为平台,把血氧、电反应与行为三者对齐,核心概念是"时序测定"(chronometry)——信息沿背侧流向腹侧直至下颞域的传播链有精确的时间表;再以药物(增强或抑制兴奋性/抑制性递质)扰动这一链路,检验因果归属。作者显然把药物当作最好的"定位试剂":一个效应若随特定递质系统起落,其源定位与网络归属就更有说服力。
方法
这是一篇综述,没有统一被试队列;文中各实例的方法可归纳如下。源定位主要用 sLORETA(standardized low-resolution brain electromagnetic tomography):把头皮电位按细胞构筑学假设分配到 6239 个皮层灰质体素(5 mm 分辨率、对齐标准脑图谱或个体头部)。MEG 数据来自 148 磁力计的 WH2500 系统(BTi)。同步 EEG-fMRI 中用 32 导 EEG 的 ICA 成分作为 fMRI 的回归项("EEG-informed fMRI")。统计上强调置换检验:图 2 展示了用置换数据迭代校正的 t 阈值——若要在大脑状态改变(药物或其他)下达到 p<0.01(对应高斯 t 约 2.3),样本量需接近 100;有些团队建议阈值 t=2.4 以防多重两两比较的假阳性。行为-电生理平台是视觉 oddball 家族(含 A-X 型与 2 选 1 计数任务),ERPs 按国际指南测量;振荡分析用时频方法与相位锁定值(phase-locking value, PLV:逐试次取瞬时相位、跨试次平均向量长度,相位恒定=1、随机=0),图 7 还用了 7 周期小波(主频 39 Hz、中心 360 ms)的网络式同步作图。文中引用的具体数据集包括:α 节律的 7 名志愿者(4 女)、γ 频段睁闭眼对比的 19 人组、时频分析的 8 人组,以及尼古丁、氯胺酮(0.1 mg/kg 负荷 + 0.93 mg/kg/h 维持)、卢非酰胺(rufinamide)、劳拉西泮(lorazepam 1 与 2 mg)等药物实验。
主要结果
- α 节律的定位与药理验证:闭眼时 10 Hz 活动强、睁眼去同步化;sLORETA 显示源位于 Brodmann 17/18 区(距状裂与楔前叶高电流密度)(图 1a,b);MEG 显示自发振荡的偶极子峰值在颅骨下约 20 mm,与动物研究中的 α 发生层一致(图 1c);静脉给予约 2.5 mg 苯二氮类药物后枕部 α 完全被抑制,说明这些发生器确实处于中枢抑制性突触的控制之下。
- 电-代谢对齐的丘脑例子:把 O1/Oz/O2 导联的 α 频谱波动与全脑 BOLD 共配准,发现枕部 α 的时间波动与丘脑区域正相关;但视觉任务定位的外侧膝状体在回归中无显著作用——10 Hz 电活动关联的是未受视觉刺激激活的核团,主结果是一条与丘脑枕(pulvinar)/距状裂组成的网络,不同于丘脑背内侧核与前扣带回构成的静息网络(该例子支撑"电节律与代谢网络可对齐但不一一重合"这一方法论判断)。
- 频段各有拓扑:同步记录的头皮 EEG 分解为 δ/θ/α/β/γ 后,包含枕叶的"被动视网膜定位"RSN(第 3 号)与 α 频段正相关最高;γ 频段则不同——睁闭眼组间比较的 sLORETA 显示双侧脑岛(insula)有显著电流密度(t=4.1, p<0.05 双尾),是"非感觉域",可能指向注意/心理功能网络;γ 的地形分布无论任务与否都不同于 α(图 3)。以 C3/C4 为参考的一阶连接分析显示伽马相位差地形图广泛分布、且双侧存在恒定相位带(图 4),更接近 ICA-BOLD 的协方差模式。
- P300 的时序测定与药物:卢非酰胺降低全局兴奋性后,2 选 1 视觉 oddball 中 P3b 在 290–420 ms 窗口减弱(图 5a);同步 EEG-fMRI 显示 oddball 早期加工只对齐第 4 号 RSN(听觉/语音),而 300–400 ms 的 P300 成分关联第 1、2、3 号 RSN(核心网络)及枕-颞视觉区——随时间推进被调用的 RSN 逐级变化。源空间解显示顶叶"背侧注意簇"源在 400–600 ms 达峰,更腹侧的下颞源时间进程相似且干扰物峰早于注意靶(图 5 语境下的目标-干扰物分离)。
- EEG-informed fMRI 的药物实例:尼古丁实验中,BOLD 变化方向与行为变化相关——反应时缩短对应 BOLD 下降、变慢对应 BOLD 升高;用 P300 波幅作回归项后,中额回与中颞回的 BOLD 显著降低。氯胺酮使 ERP 降低 71%,BOLD 与 sLORETA 三维成像中显著体素都变少,且安慰剂下参与 oddball 表现的楔叶(cuneus)活动被药物消除——构成一个"准确性相关"的刺激评估网络。P300 的 sLORETA 断层最大值见于后扣带与楔前叶,兼及内侧额顶、下顶叶、颞上回后中部与背/腹外侧前额叶;老龄化使 P3b 峰潜伏期最多延迟约 60 ms。
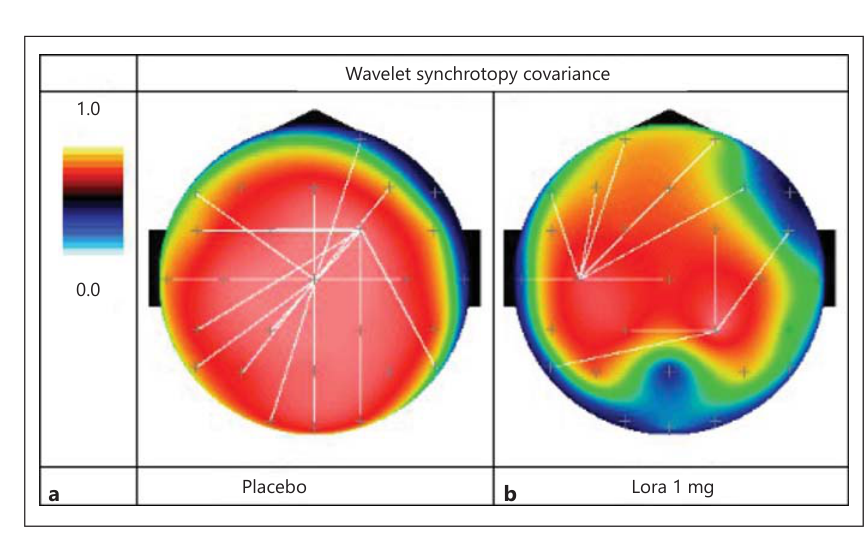
- γ 同步与药物:视觉 oddball 的时间频谱分析在 8 名志愿者 250–400 ms 间检出 40 Hz 的显著模式(图 6a);劳拉西泮 1 mg 不显著改变 ERP 波形,却显著压低认知反应的伽马暴发(图 6b),并带来神经时序的大规模重组:PLV 同步拓扑图显示对照态是"广泛而无结构"的耦合,服药 2 小时后变成更确定性的连接,偏向双侧颞顶域(图 7)。作者同时承认:从传感器空间推不出 GBR 的脑内源头,此类高频瞬时暴发的发生器至今无共识。
图注解读
图 1 · α 节律的体素化定位与 MEG 对齐
原文图注:Fig. 1. Example of sLORETA tomography of alpha power (around 10 Hz) for the difference between eyes closed – eyes open in axial (a) and sagittal (b) planes (scale for maximal current density 231 mV) for 1 individual volunteer. c MEG narrow-band filtered alpha band activity for 28 reconstructed sites out of 148 magnetometers from a WH2500 System (BTi, San Diego), aligned with the similarly filtered signal on C3 showing in-phase (inset O2)/antiphase (inset Pz) patterns over the occipital domains; epoch length for insets 400 ms. d An illustration of 'meshing' equidistant nodes for 'voxelizing' the EEG/MEG patterns in grey matter atlas.
这张图是"体素化 EEG"一节的图示核心:a、b 两面板是单个志愿者闭眼减睁眼的 α 功率 sLORETA 断层(轴位/矢位,标尺为最大电流密度),亮点落在枕叶皮层;c 面板把 MEG 窄带滤波后的 28 个重建位点与 C3 导联对齐,展示枕域同相(O2 插图)与反相(Pz 插图)的空间模式——反相恰恰说明源在枕叶皮层内而不是深部单一核团;d 面板示意把 EEG/MEG 模式"网格化"到灰质图谱等距节点上的思想。它支撑结果 1(α 源在 BA17/18、距状裂/楔前叶)。
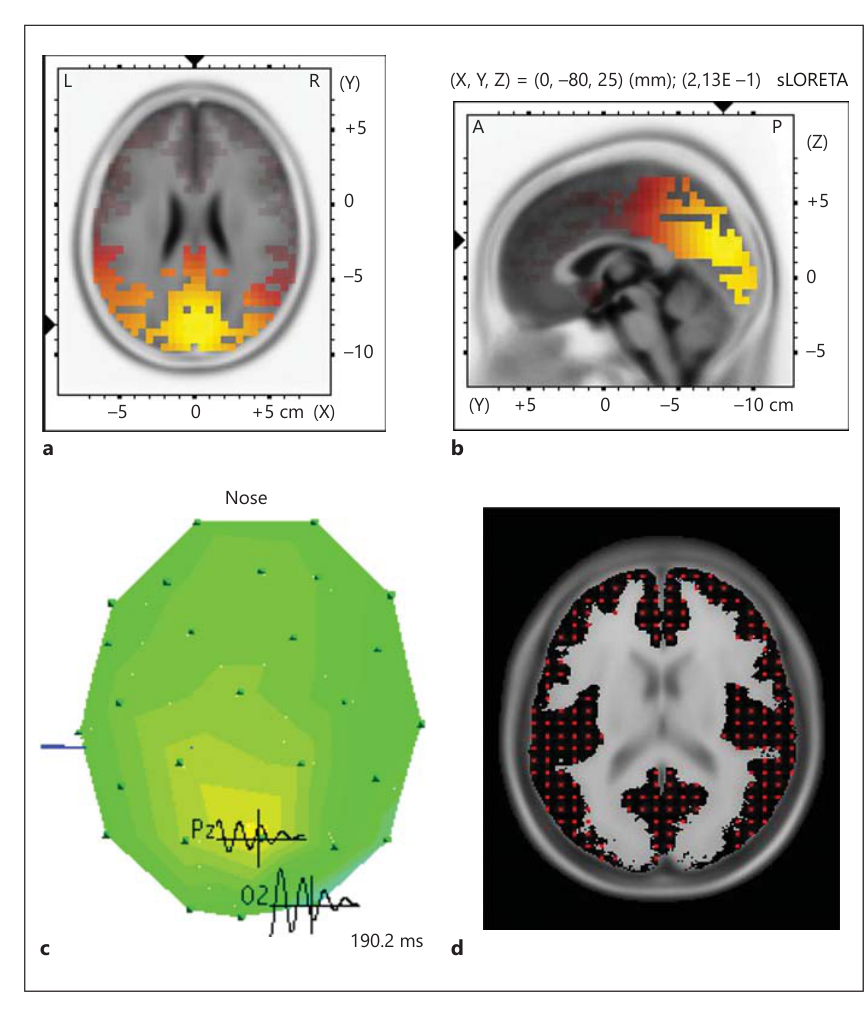
图 2 · 置换校正的 t 阈值与样本量
原文图注:Fig. 2. a Iterative adjusted t values (horizontal axis) for paired comparisons as a function of sample size (vertical axis) on the basis of permutations [10] from in-house true pharmaco-EEG data from healthy volunteers. b Analytical distribution of normalized probabilities (surface is 1.00) for an infinite number of observations depicting pragmatic thresholds (horizontal axis as in a). Note that for changes in brain state (drug-induced or other) the p < 0.01 level that corresponds to gaussian t ∼ 2.3 is attained for a sample size close to 100.
读法:a 图横轴为配对比较的(迭代校正后)t 值、纵轴为样本量,数据来自作者实验室健康志愿者的真实药物 EEG 记录,用置换法给出经验阈值;b 图是无穷观测下的归一化概率分布(面积 1.00),横轴同 a,标出实用阈值。要点在读注释:要在脑状态改变(药物所致或其他)下达到 p<0.01(高斯 t≈2.3),样本量需接近 100。这张图支撑"方法"一节的统计主张——小样本药物 EEG 的组间比较必须用置换校正,否则会系统性高估显著性。
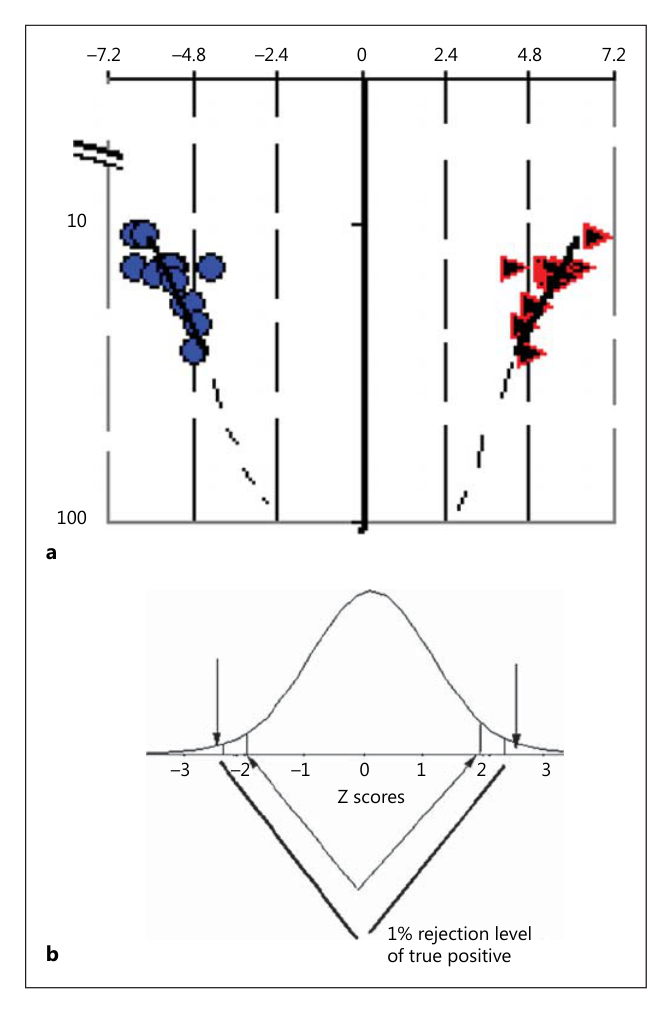
图 3 · γ 频段的源定位(脑岛)
原文图注:Fig. 3. Example of localization of gamma oscillatory EEG content for the eyes open/eyes closed comparison in a group of 19 subjects (a) using sLORETA statistical comparisons by voxel-wise paired t test performed on the mean (insula adjusted t = 4.1, p < 0.05 two-tailed) and MEG global alignment (b) of positive peak on C3 (cursor position) traces showing phase/anti-phase patterns over the 2 hemispheres.
读法:a 面板是 19 人组睁眼对闭眼的 γ 频段 sLORETA 统计图(逐体素配对 t 检验,显著处为双侧脑岛,校正 t=4.1);b 面板是 MEG 全局对齐:以 C3 上正峰(光标处)对齐的各传感器轨迹,显示两半球间的同相/反相结构。图的要点是"频段不同、拓扑不同":γ 的分布与 α(图 1)明显不同,且落在非感觉域的脑岛,提示其参与注意/心理功能网络。支撑结果 3。
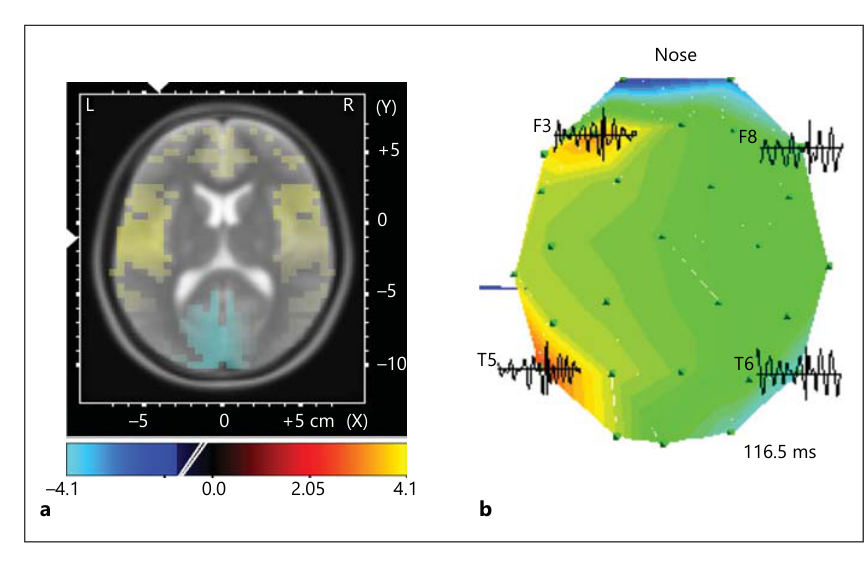
图 4 · γ 频段的一阶连接:相干与相位差
原文图注:Fig. 4. Interpolated mapping of pairwise coherence calculations on source derivation (non-monopolar) EEG epochs in a 28-electrode montage 'seeded' with respect to electrode C3 (a) and with respect to electrode C4 (b). c, d Same as above but for the average phase difference. Note the bilateral spread of constant phase (dark zone equals difference at or near zero).
读法:这是把 28 导 EEG 各 epoch 以源导联(非单极)两两计算的插值图:a、b 分别以 C3(左)、C4(右)为种子,纵轴为平方相干(0–0.5 标尺);c、d 为同样的平均相位差图(0–180°)。核心观察是注释强调的"恒定相位的双侧扩散"——黑色区即相位差为零或近零——说明 γ 频段存在跨半球近似零延迟的耦合,作者认为这更接近 ICA-BOLD 协方差模式而非局部源。支撑结果 3 后半句。
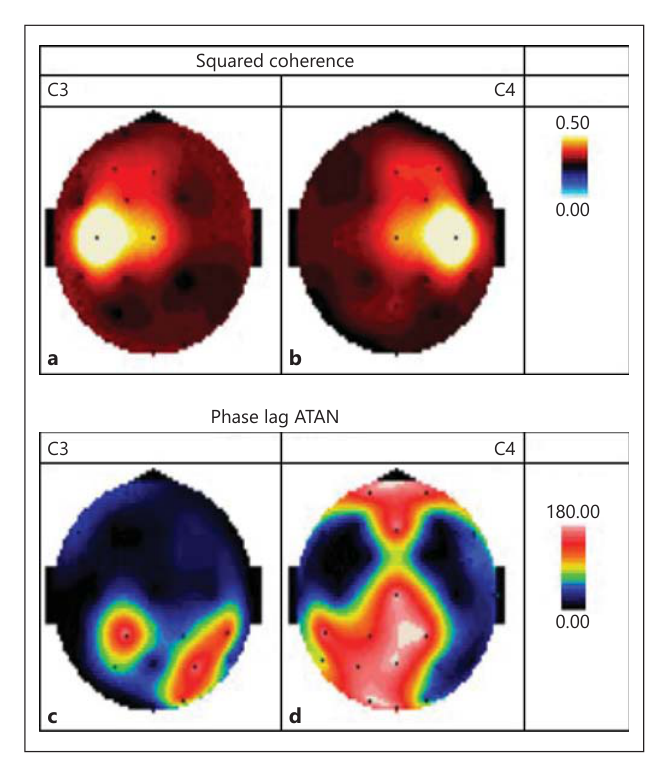
图 5 · P300 的药物敏感性与时序
原文图注:Fig. 5. a Grand mean P300 response in an 'A-X-type' visual oddball task [49] with mental counting in a 2-choice visual oddball task of targets 2 h after administration of rufinamide to dampen global excitability; the curve with the grey surface represents the drug-sensitive part of the signal. b Example of the time course of phasic gamma band response embedded in single event signals emerging after bandpass filtering; although not from the same study, the x-axes have been aligned with panel a. Filtered evoked reponses show nano-amplitude fast frequency oscillations in the gamma band (∼40 Hz). Horizontal axis: post-stimulus time in milliseconds; vertical axis: amplitude in microvolts (3 microvolts/tick in a).
读法:a 面板是 A-X 型视觉 oddball(心理计数)中靶刺激的总平均 P300:给卢非酰胺 2 小时后(抑制全局兴奋性),灰色填充的曲线部分即"药物敏感段",对应正文中 290–420 ms 的 P3b 减小;b 面板展示单次事件经带通滤波后嵌在信号中的瞬时 γ 暴发(约 40 Hz、纳安级幅度),x 轴与 a 对齐(并非同一研究)。横轴为刺激后毫秒、纵轴为微伏(a 中每格 3 μV)。此图把"ERP 波幅"与"嵌入的快速振荡"两种度量并置,支撑结果 4 与 6 的引入。
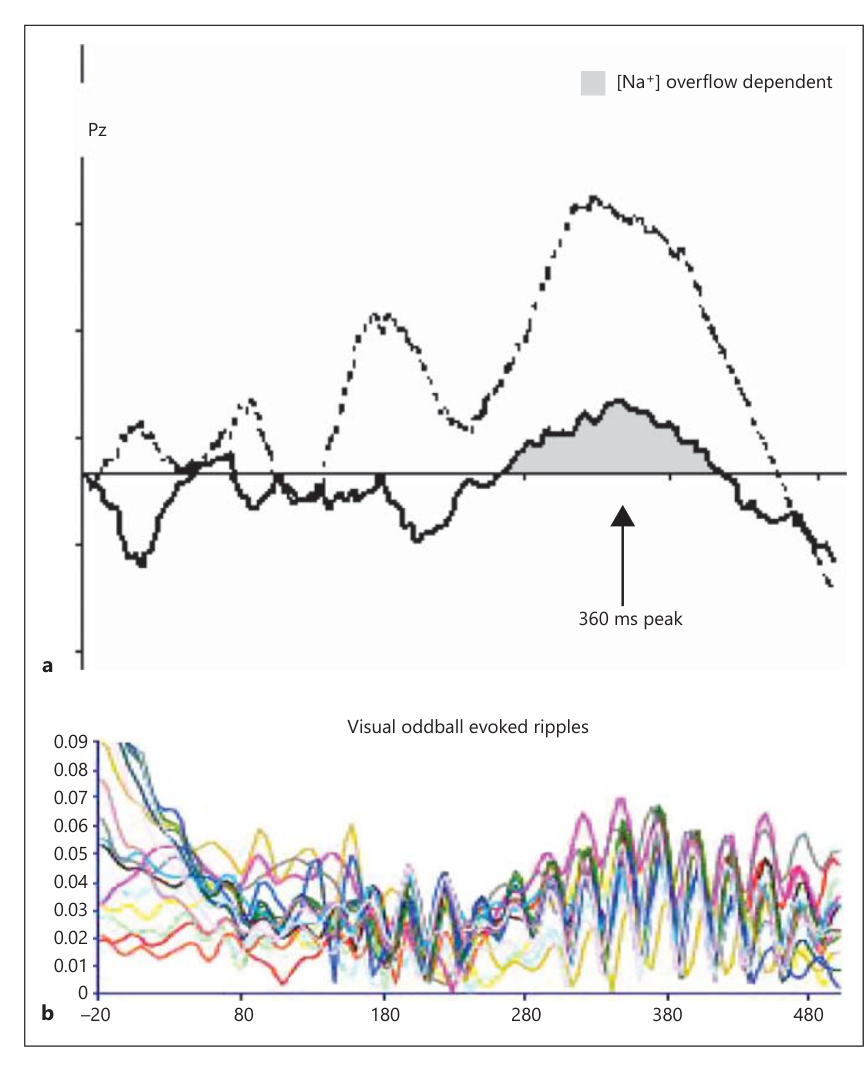
图 6 · 视觉 oddball 的时频图与劳拉西泮效应
原文图注:Fig. 6. Examples of time-frequency approach and drug effects in a visual oddball task for control condition (a) that unveiled 40-Hz patterns reaching significance in 8 volunteers between 250 and 400 ms and for lorazepam (b) at the dose of 1 mg (note that the GBR of the cognitive response has been abolished).
读法:两张单通道(Pz)时频图:横轴刺激后时间(−100 至 600 ms)、纵轴频率(约 1–50 Hz)、色标为 dB。对照条件下(a)250–400 ms、40 Hz 附近出现达显著的模式(8 名志愿者);劳拉西泮 1 mg 条件下(b)认知反应的 γ 频段响应(GBR)消失——而正文强调 ERP 波形本身并未显著改变。这正是"看波形什么都没发生、看时频才发现药物效应"的教科书式例子,支撑结果 6。
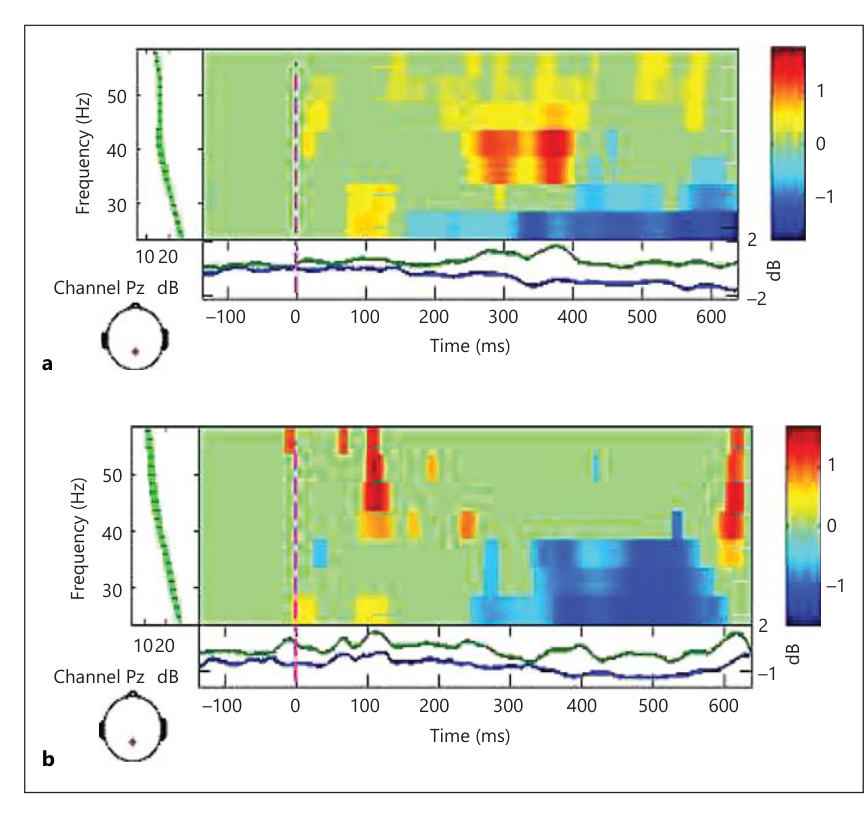
图 7 · PLV 同步拓扑:药物重组网络连接
原文图注:Fig. 7. Example illustrating modern network theory of drug effects during the visual P300. White lines correspond to the significant (p < 0.01) coupling compared to scrambled data for a 7-cycle wavelet of dominant frequency of 39 Hz centred at 360 ms; only cases 10% of highest PLVs having ±10° from zero phase have been re-transcribed. The topographic map corresponds to 'PLV synchrotopy': the control state (a) yields a widespread pattern without much structure, whereas 2 h after lorazepam (b; lora 1 mg; see fig. 5b and 6b) a more deterministic connectivity (at least interelectrode) highlights preferably bilateral temporoparietal domains.
读法:这是把 P300 时段当作网络来画的图:对主频 39 Hz、中心 360 ms 的 7 周期小波,白线表示相对打乱数据的显著耦合(p<0.01),且只保留 PLV 最高 10%、相位在零相位 ±10° 内的连接。对照态(a)连接广泛但缺乏结构;劳拉西泮 1 mg 服后 2 小时(b)连接更"确定",集中在双侧颞顶域。所谓 PLV 同步拓扑(synchrotopy)即按电极对相位同步强度作的地形图。此图支撑结果 6 的后半——GABA 增强不是"关闭"同步而是重组同步,同时体现传感器空间分析的边界(推不出脑内源头)。
讨论
在综合讨论中,作者指出多模态技术能够兼顾代谢成像的高空间分辨率与单试次电生理的高时间分辨率。文内给出的静息态网络对应包括:第 1 号 RSN 对应任务控制与内省加工,第 2 号对应背侧注意,第 3 号对应视觉中继,第 4 号对应听觉与言语,第 5 号对应躯体感觉,第 6 号腹侧流则参与内源性心理过程。作者同时指出多模态整合的客观局限:某一模态检出的特征模式在另一模态中未必存在对应物;跨模态数据间可能出现不一致(如苯二氮䓬类使 α 功率显著下降,但在该频段的纵向相干分析中未见显著药物效应);高维特征判别存在过拟合风险,需要在独立队列中交叉验证;此外,高频 γ 暴发的神经起源在传感器空间难以直接反推至确定解剖结构。在临床应用层面,MEG 频谱重心与特征功能连接有助于提升认知评分预测精度,多模态方法有望为精神分裂症与认知障碍的临床亚型划分提供生理学生物标志物。
一句话总结
本综述的核心观点在于:电生理与血流动力学代谢成像反映了神经活动的不同侧面,两者在特征频段、反应波幅及相位同步维度的对齐方式直接决定了所能提取的神经机制信息。通过引入特异性药物干预(如卢非酰胺对 P3b 的特异调节,劳拉西泮对 γ 频段的选择性改变),多模态联合有助于建立比单一静态激活映射更具验证性的机制证据链,为神经精神疾病的病理评估提供了多维度技术框架。