这篇文章问了一个"任务语境"的问题:同一批下颞叶(inferior temporal cortex, IT)神经元,在猴子只是被动看图与必须做身体/物体分类时,类别表征会不会不一样?作者用同一套带噪声的图像在两种任务间切换,记录 95 个 IT 单个神经元,发现分类任务显著提高了神经元的类别选择性。机制上不是简单的"全局调高音量":偏好类别的增益更大、同时整体放电变异性更小,两者共同把"信噪分离"拉开——IT 的类别表征是随行为需求实时可塑的。
研究背景
视觉物体分类把无穷多的视觉刺激组织成有意义的组,是物体识别研究的核心问题之一。IT 皮层位于腹侧视觉通路的末端,是最早出现类别选择性神经元(如对面孔、身体有选择性响应的神经元)的视觉区,且与前额叶皮层、记忆相关皮层和联合区有密集连接,因此被认为是"自下而上的细节视觉信息"转化为"更抽象的类别信息"的关键节点。先前研究已在单个神经元和群体两个层面确认了 IT 的类别表征(如 Hung 等 2005;Kiani 等 2007),fMRI 也在猴和人中找到对面孔、身体等特定类别响应的皮层斑块;本团队早先的电刺激研究(Afraz 等 2006)更表明 IT 类别选择簇的活动与知觉分类成绩之间存在因果联系。已知任务需求可以调制 IT 响应的幅度:Richmond 和 Sato(1987)发现视觉辨别任务中 IT 响应比单纯注意刺激时增强,Sato(1988)却报告模式辨别时响应被抑制,Koida 与 Komatsu(2007)发现颜色分类任务中活动增强、颜色辨别中反而下降,Suzuki 等(2006)则未见差异——结论并不一致,而且这些研究针对的都是"响应幅度"。
真正的缺口在于:行为需求对 IT 神经元"类别选择性"本身的影响从未被直接检验过。类别选择性是 IT 神经元在视觉层级中的标志性属性,也是视觉分类能力的生理基础;既然电刺激效应与神经元类别选择性水平相关,那么当一个动物被要求认真分类时,它的 IT 类别表征是被放大了、还是保持不变?这个问题决定我们该把 IT 看作一台"固定编码器"还是一块"按需重构"的画布。
研究思路
作者的设计思想是"刺激完全相同、行为语境不同":让两只猴在同一记录 session 内交替执行被动注视(奖励只与是否注视挂钩,与图像类别无关)和身体/物体二选一分类(奖励取决于分类是否正确)两种任务,视觉输入逐毫秒一致,从而把任何神经差异归因于行为需求。为了不让结果只反映某几个"好认"的刺激,图像集系统地加入了四档像素噪声(10%–60%),制造从易到难的知觉歧义梯度,便于考察任务难度对调制的剂量效应。分析上分层推进:先用 d′(d-prime,基于均值差与标准差比的信号检测指数)刻画单个神经元的类别选择性在时间上如何变化;再在群体层面用线性支持向量机读出类别信息,看选择性改善是否转化为群体解码优势;最后把 d′ 的提升拆解成两个候选成分——平均放电率的增强与放电变异性的降低——分别用响应调制指数(RMI)和 Fano 因子(Fano factor, FF;方差/均值)量化,并做"速率匹配"控制,排除"变异下降只是因为发放变多"这类平凡解释。这个拆解链条把"哪里变了"回答到机制层面。
方法
被试为两只成年雄性猕猴,立体定位(stereotaxic)植入头部固定装置和记录舱。,用钨丝微电极在颞上沟下岸及 TE 区(分别位于耳间线前 12–18 mm 与 13–20 mm)做细胞外单细胞记录;先在被动快筛任务上确认单元有视觉响应才正式进入交替任务。刺激是 7×7 度灰度照片:身体类(人、猴、四足动物三个子类,不含面部特征)与物体类(飞机、汽车、椅子三个子类)各 90 张(每子类 30 张),每张图生成 10%、30%、45%、60% 四档噪声版本(对 X% 的像素赋予均匀分布灰度),共 720 张含噪图与 90 张 100% 全噪声图随机不重复呈现;全噪声图因不含类别信息而排除出分析。被动任务中图像呈现 70 ms、间隔 850–950 ms,猴子只要把注视保持在 2.4×2.4 度窗口内即按时间获奖;分类任务中图像 70 ms 呈现后延迟 500 ms,再在屏幕左右各 10 度处给出红、绿两个眼动目标,猴须在 300 ms 内扫视到与身体/物体对应的一侧并保持 150 ms,答对才给苹果汁奖励(两猴的类别-键位对应相反)。每个 session 内两个任务以 90 试次的块交替进行,起始任务随机;分析仅纳入两种任务中至少完成一半试次的 session,且分类任务只用正确试次;两猴因行为与结果趋势一致而合并分析(n=95:猴1 74 个、猴2 21 个)。
分析的关键指标:d′ 在刺激后 100–400 ms 的 300 ms 窗口内计算(时间过程用 100 ms 滑动窗、1 ms 步进),正值代表偏好身体、负值偏好物体;RMI=(分类任务均值−被动任务均值)/(两者之和)×100;FF 在 100 ms 滑动窗内取"放电话数方差/均值",并另做以两任务中最常见的放电率为匹配率,只纳入放电率在该值 ±10% 以内的窗计算平均 FF;群体解码用线性 SVM(75% 试次训练、25% 测试,重复 100 次),并定义"成绩调制百分比"=(分类任务成绩−被动任务成绩)/被动任务成绩×100。统计以单尾单样本 t 检验为主,分布正态性经 Kolmogorov-Smirnov 检验确认。为排除猴子"背图"的可能,训练完成后另测:40 张新图混 40 张旧图,P 均 ≥0.13。或直接写'猴1 P=0.13,猴2 P=0.14'。
主要结果
- 分类任务中 IT 神经元的类别选择性整体提升(图 2)。示例神经元(体细胞 C52、物体细胞 C83)在分类任务中的 d′ 时间曲线明显高于被动任务(P<10^-5);群体层面同样成立:身体神经元(n=51,P<10^-5)、物体神经元(n=44,P=0.000011)在 100–400 ms 内两类任务的 d′ 都有显著分离。以身体神经元为例,d′ 提升 0.0488±0.0102,51 个中有 38 个(74.5%)单细胞显著提高;物体神经元 d′ 向负向移动 0.0552±0.0105,44 个中 33 个(75%)显著——约四分之三的类别神经元对自己偏好的类别变得更"挑剔"。
- 选择性提升与任务难度的关系:d′ 调制随噪声增加呈上升趋势(10% 噪声 0.0223,60% 噪声 0.0625),但在 95 个神经元上未达显著(Pearson r=0.0881,P=0.0872,图 2F)——趋势指向越模糊的图像越需要类别化增强,但证据不充分。
- 机制之一:偏好类别的增益增强(图 3)。分类任务中两类图像的响应都增强,但偏好类增强更多:身体神经元对身体的 RMI 为 4.97%(P=0.000016)、对物体仅 1.93%(P=0.043);物体神经元对物体 7.72%(P=0.000001)、对身体 3.92%(P=0.00095)。"偏好类 RMI 减非偏好类 RMI"的差值在两组神经元群体上都显著为正(身体神经元 ΔRMI=3.05%,P=0.00011;物体神经元 ΔRMI=3.80%,P=0.000024),两组之间无差异(P=0.74);单细胞层面 74.51% 的身体神经元与 81.82% 的物体神经元呈现显著的选择性增益。作者区分了解释:全局的响应提升可能只是警觉度提高,而偏好类特有的更大增益则是任务特异的视觉注意。
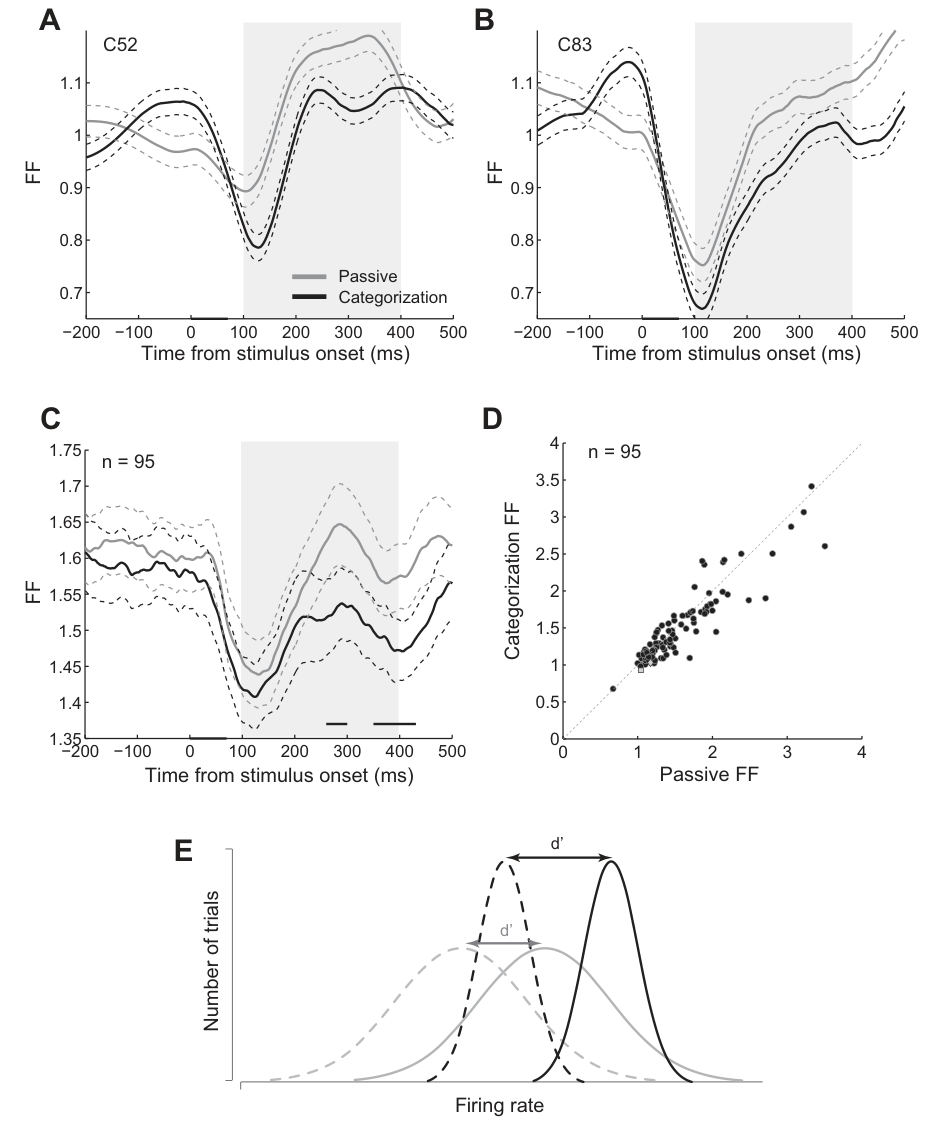
- 机制之二:两类响应的变异都下降(图 4)。Fano 因子在刺激后晚期于分类任务中明显更低(群体 t 检验显著,两猴合并 P=0.0013);速率匹配后效应仍在:保留原数字,可加一句'(原文如此;按 35/51 计算应为 68.6%,疑为原文笔误)',群体 FF 调制身体神经元 0.1044、物体神经元 0.0460。FF 调制在身体图与物体图之间没有差异(P=0.14),也就是说噪声减小对偏好与非偏好类别一视同仁。结果 3 与 4 合起来构成图 4E 的示意模型:偏好类分布右移更多、两类分布同时变窄,d′ 随之增大。
- 群体层面可读出的类别信息同步增强(图 2G)。线性 SVM 的成绩随神经元数增长,身体神经元在分类任务中最高达约 70%,接近猴子的平均行为成绩(72.9%);两组神经元在两种任务中均有"分类>被动"的显著差异,成绩调制百分比身体神经元(11.67%±2.77)显著大于物体神经元(6.24%±2.89,P=0.021)。另有一个基线细节:身体神经元 d′ 绝对值整体高于物体神经元(P=0.0168)。
图注解读
图 1 · 任务设计与猴子行为成绩
原文图注:Fig. 1. Task and performance. A: passive fixation task. ISI, interstimulus interval. B: body/object categorization task. C: the noiseless image set. D: exemplar body and object images in different noise levels. Numbers below the images show percentage of the added noise in each column of images. E: order of the tasks in a session. Blocks of passive and categorization tasks were interleaved. There were 90 trials in each block. F: monkeys' performance in the categorization task. Error bars indicate the SE.
读法:A、B 分别画两种任务的时间线——被动注视任务里图像流以 70 ms 呈现、间隔约 900 ms,分类任务里"注视 → 70 ms 图像 → 500 ms 延迟 → 红绿目标 → 眼动选择";C、D 展示无噪声图像集与同一张图在 10%–60% 四档噪声下的样子(数字为加噪像素比例);E 表示每个 session 内分类块(C,深灰)与被动块(P,浅灰)以 90 试次为单位交错、起始任务随机;F 是行为成绩随噪声水平(10/30/45/60/100%)递减的曲线。这张图为整个实验提供了"两种任务共享同一视觉输入"的关键前提,并界定了 100% 全噪声条件下猴子只有约 48%、略高于机会的行为基线。
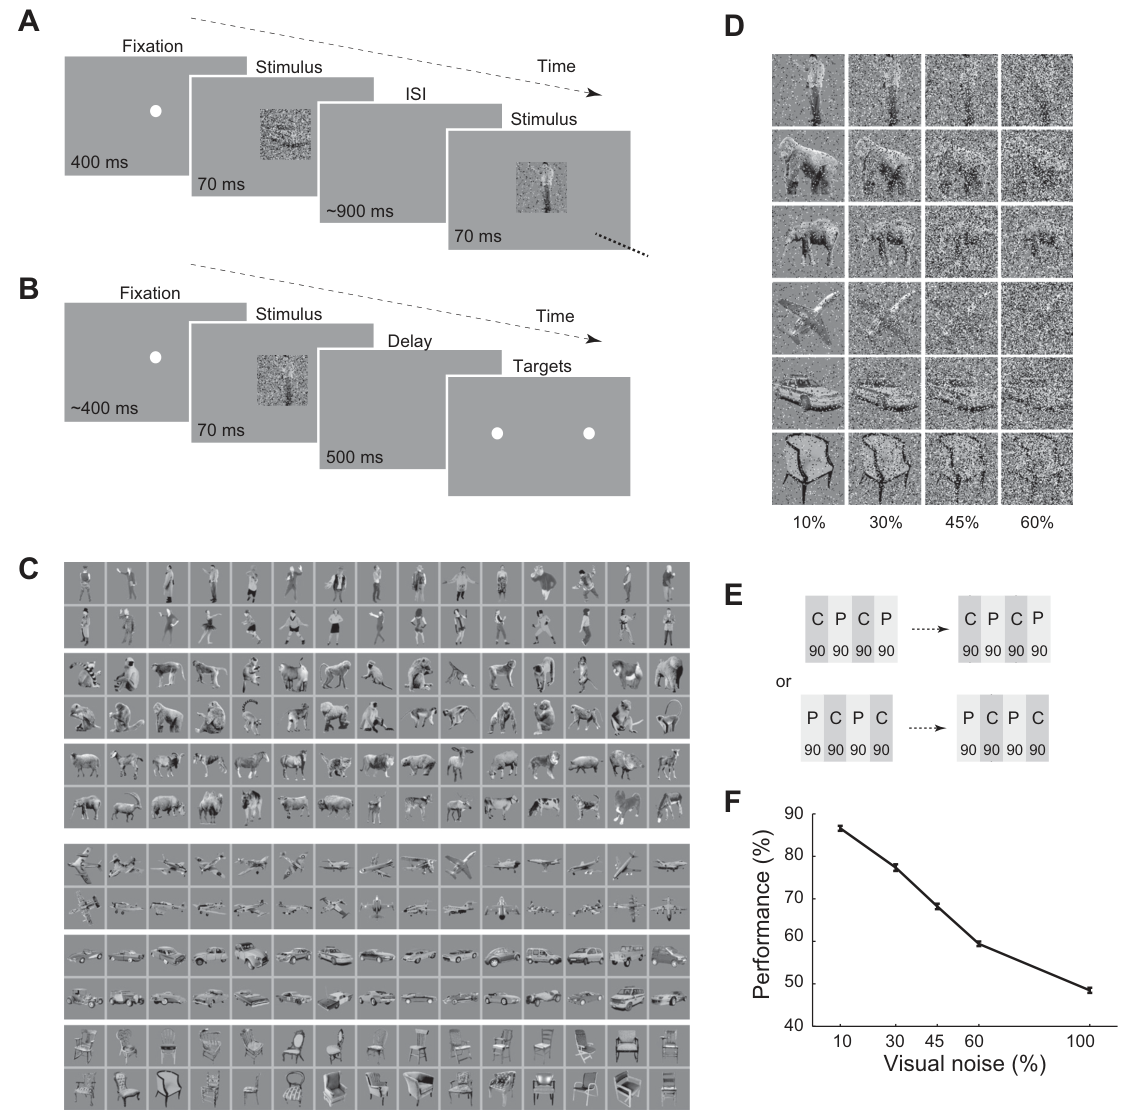
图 2 · 分类任务中类别选择性(d′)提升
原文图注:Fig. 2. Improvement of the category representation during the categorization task compared with the passive task. A and B: selectivity index (d') of exemplar body (A) and object (B) neuron in the categorization and passive tasks measured in 100-ms sliding windows. The gray box represents period of evoked activity used for further analysis. The dashed lines represent the SE of each condition with 1,000 bootstraps. The black bar on the x-axis represents the stimulus epoch. C and D: mean d' of population of body neurons (C) and object neurons (D) in categorization and passive tasks. The gray line above the x-axis shows the significant difference between d' in categorization vs. passive task (t-test, α = 0.05).
读法:A、B 两条时间曲线展示示例神经元:横轴为刺激起始后的时间,纵轴为 d′,黑色实线(分类)与浅色线(被动)在灰框(100–400 ms 分析窗)内明显分开;C、D 把同样的比较搬到群体均值(n=51 身体、n=44 物体神经元),x 轴上方的灰色条标出各时刻两任务差异显著的时间段。E 是"单细胞 d′ 调制量 vs 分类任务 d′"的散点(灰点猴 1、黑点猴 2,箭头指示例神经元),正斜率说明选择性越强的神经元提升越多(r 约 0.71/0.72);F 按噪声水平汇总调制量;G 画 SVM 成绩随神经元数累计上升的曲线,分类任务实线在被动任务虚线之上。此图支撑主要结果 1、2、5。
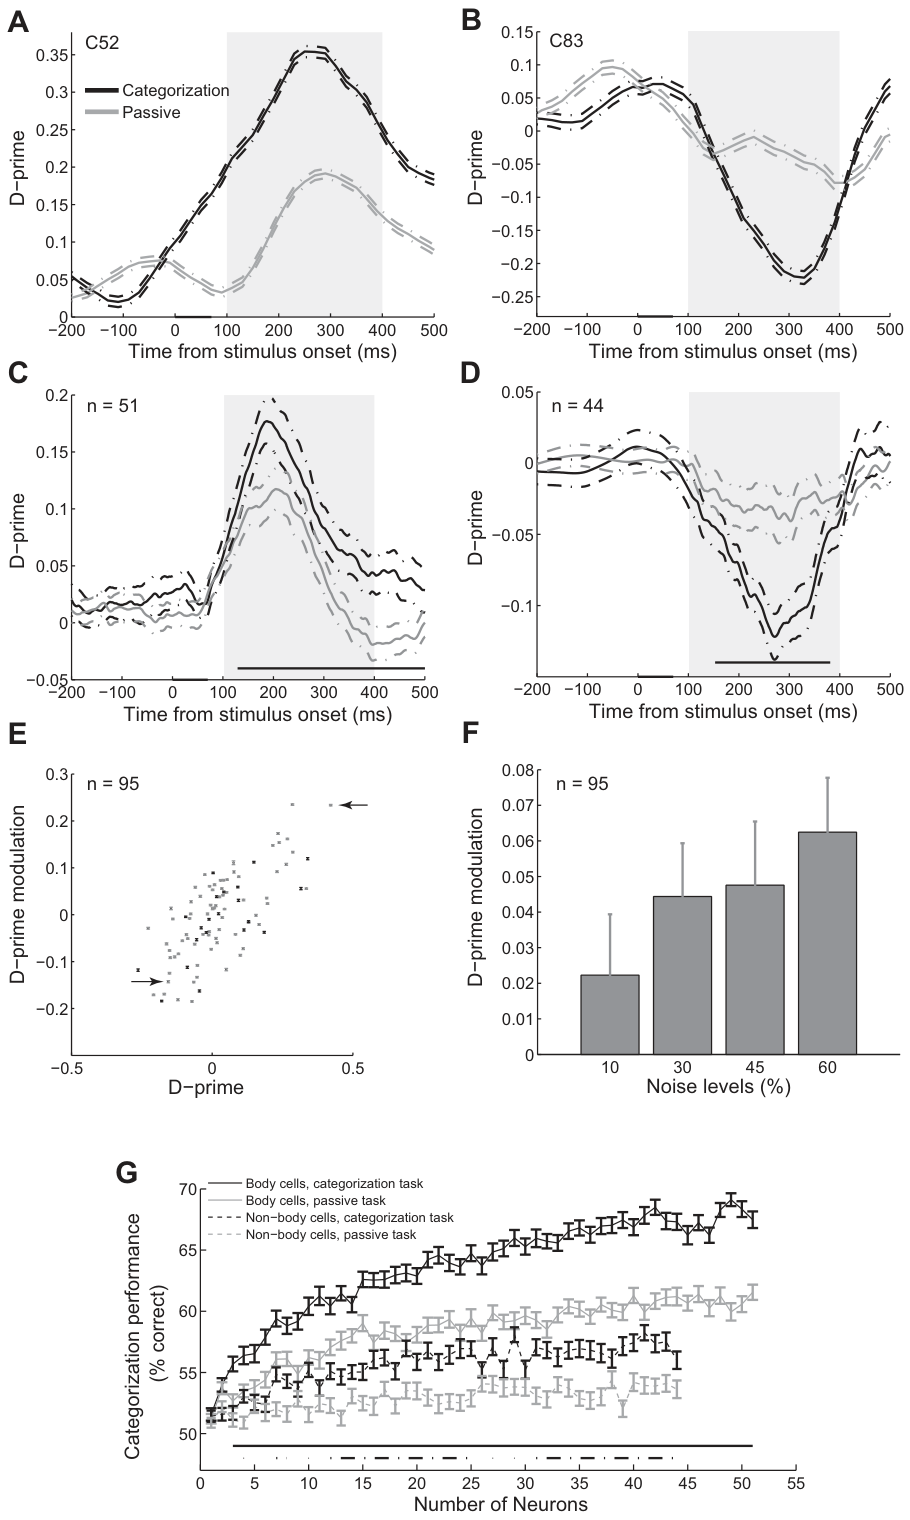
图 3 · 响应率的调制:偏好类增强更大
原文图注:Fig. 3. Modulation of firing rate in categorization task compared with passive task. A and B: the histogram of the response of the exemplar body (A) and object (B) neurons to different image categories in passive (left) and categorization (right) tasks. Shaded areas represent the SE of each condition across trials. C and D: the histogram of the normalized response of the population of body (C) and object (D) neurons to different image categories in passive (left) and categorization (right) tasks. E: response modulation index (RMI) difference was measured as RMI for preferred category minus RMI for nonpreferred category in body (left) and object (right) neurons. The arrow represents the mean value of the distribution. The vertical dashed line represents 0 or no difference.
读法:A、B 是示例神经元的 PSTH:左列被动任务、右列分类任务,各自画偏好类别与非偏好类别两条曲线,可直观看到在分类任务里"偏好类那条线"被抬得更高;C、D 是归一化的群体 PSTH(n=51/44);E 是两张 RMI 差值直方图(每根代表一个单神经元的"偏好类 RMI − 非偏好类 RMI"),分布整体偏向正值(箭头为均值),零线以左代表例外。这张图把"任务需求"效应从笼统的增强中分离出"类别特异的增益"成分,支撑主要结果 3。
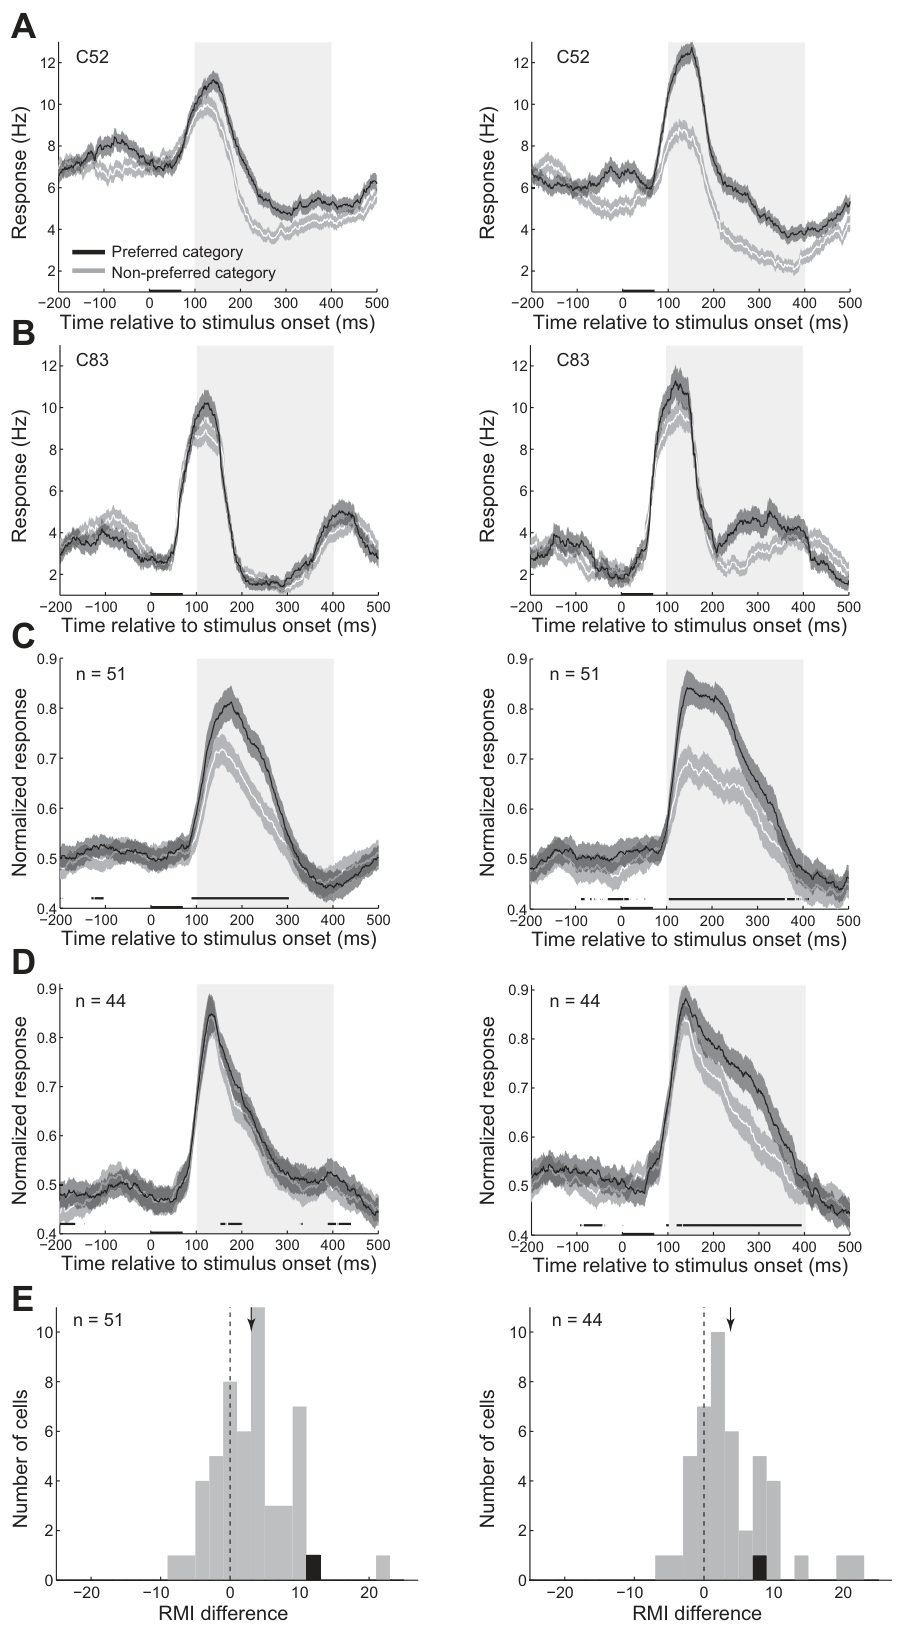
图 4 · Fano 因子下降与类别表征改善的示意模型
原文图注:Fig. 4. Modulation of the response variability in the categorization task compared with the passive task. A and B: Fano factor (FF) of the exemplar body (A) and object (B) neurons measured in 100-ms sliding windows in different tasks. C: mean FF of the population of neurons in different tasks. The gray line above the x-axis shows the significant difference between FF in categorization and passive tasks (t-test, α = 0.05). D: rate-matched FF in categorization vs. passive task. Each data point represents 1 neuron. The diamond and square data points represent the exemplar single body and object neurons, respectively. The oblique dashed line represents the diagonal line. E: schematic model of category representation improvement in the categorization compared with the passive task. Black and gray lines represent the categorization and the passive tasks, respectively. Solid and dashed lines represent the distribution of the neural responses to the preferred and nonpreferred categories, respectively.
读法:A、B 时间曲线上分类任务的 FF 曲线(黑)在刺激后在被动任务(灰)之下;C 是群体均值,x 轴上方灰色时段标出显著差异;D 是单细胞散点,横纵轴分别为被动与分类任务的速率匹配 FF,多数点落在对角线下方(分类更小),一个超界的猴 2 数据点被注明未画出(x=5.87,y=5.19);E 是示意分布图:黑线(分类)相对灰线(被动)整体右移、其中实线(偏好类)移得更多,且黑线更窄——两名"增量"与"减噪"一起把类别间分布拉开,即 d′ 增大的机制图示。支撑主要结果 3、4。
讨论
作者首先把结果放回"任务调制 IT 响应幅度"的既有文献中:以往对幅度的调制方向并不一致(增强、抑制或无效应均有报告),而本文的新贡献在于首次直接检验了任务需求对"类别选择性"的调制。对两个机制成分,作者分别给了认知层面的解释:响应的整体提升可能与分类任务中更高的警觉性有关,而偏好类别特异的更大增益则反映了任务导向的视觉注意;响应变异性的下降则与近期关于注意降低 V4 响应变异性、去相关内在活动涨落的报告(Cohen & Maunsell 2009;Mitchell 2007、2009;Noudoost & Moore 2011)相呼应——早期研究认为 V1、V4 的响应可靠性不受自上而下信号影响,新近证据相反,本文把这一结论推进到三个方面:比较的是两种行为需求下的状态而非同一任务内的注意调制、测的是 IT 而非 V4、并且用了"每个类别样例只呈现一次"的丰富刺激集(以往研究都依赖对同一刺激的重复呈现)。作者强调这种灵活的切换不同于长期学习与训练造成的 IT 选择性改变(如 Kobatake 1998、Sigala & Logothetis 2002):猴子在同一 session 内多次在两种任务间切换,类别表征随之从一种模式变到另一种,是一种即时、可逆的状态调制。
关于调制信号的来源,作者给出的假说是来自下游前额叶的"层级式"自上而下反馈(任务规则的反馈),它可能改变 IT 内部及 IT 与上下游区域间的突触权重与功能连接;结合"反向层级理论"(reverse hierarchy theory)与猴子已高度训练的事实,作者推测 IT 中可能为每个任务建立了两种突触/连接状态,自上而下信号的作用只是把 IT 在两种状态间"开关",直到下一次任务切换。此外作者提示这一发现支持"两个任务的信息共存于同一 IT 神经群体"的既有证据(Hung 2005;Sugase 1999)。局限方面文中着墨不多:单细胞记录的样本只来自两只猴、95 个单元,且分析只包含正确试次;调制信号的确切来源(前额叶还是其他)文中明确表示需要专门设计的后续研究来回答。
一句话总结
读完这篇我最深的印象是"IT 并不是一台只管输出的自动编码器,而是一块根据下游需求调整对比度的画布":分类任务让偏好类的信号更亮、让所有类别的噪声更小——用信号检测的语言说,任务需求同时搬动了分布的均值和方差。这种"增益再分配 + 可靠性提升"的组合,在我看来正是理解腹侧流与注意/执行区如何握手的一个干净切口;不过效应量本身其实很小(d′ 调制约 0.05–0.06、FF 下降约 0.05),其行为学意义有多大,还得靠群体解码那一环(11.67% vs 6.24% 的成绩调制)来撑。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A, B, C, D, E, F] - Fig2: 提取质量
good,对齐度full,识别面板[A, B, C, D] - Fig3: 提取质量
good,对齐度full,识别面板[A, B, C, D, E] - Fig4: 提取质量
good,对齐度full,识别面板[A, B, C, D]
关键事实与局限性声明
- 审校纠偏: 未发现明显过度推论。MD 将'警觉度提升解释整体增益、任务特异注意解释偏好类增益'明确归为作者解释;讨论中前额叶反馈来源与'两种突触状态开关'也标注为作者假说。一句话总结中'实时可塑'的措辞与作者结论一致,且 MD 主动指出效应量很小(d′ 约 0.05–0.06、FF 约 0.05),未把相关调制夸大为因果机制
- 补充要点: 负结果遗漏:FF 调制量(分类−被动)在身体神经元与物体神经元两组之间无显著差异(2 样本 t 检验 P=0.15),MD 只报告了'身体图 vs 物体图之间无差异(P=0.14)',未提细胞组间比较;该负结果与 RMI 组间无差异(P=0.74)共同支撑'变异下降是非类别特异的'这一结论,值得补上
- 补充要点: 全噪声(100%)条件的奖励规则(随机 50% 奖励)未在方法中提及;MD 仅在图 1 读法中给出 48.48% 略高于机会的成绩(含 1.52% 偏向物体选择,P=0.016),奖励规则是理解该条件为何排除出分析的背景
- 补充要点: d′ 调制量与分类任务 d′ 的单神经元相关(猴1 r=0.71、猴2 r=0.72)正文主要结果未单列,仅在图 2 读法中出现;这是'选择性越强提升越多'的关键证据,可在主要结果 1 中补一句