这是一篇由 Hirabayashi 与 Miyashita 撰写的专题综述,系统总结了清醒行为猕猴颞叶皮层微回路(microcircuit)计算原理的实验进展,归纳出三条核心机制:其一,Hebb 提出的“相位序列”假说在物体联想记忆提取的微回路中得到实验确证;其二,皮层层间微回路的信号流动方向随记忆编码与提取的任务情境发生功能性反转;其三,跨层级皮层区域间遵循“前体编码先形成、再增殖扩散”的物体表征演变规律。该文从微回路相互连接神经元之间的编码变换视角,阐述了视觉信息加工与记忆巩固的突触回路基础。
研究背景
从阐明单个神经元对特定视觉刺激的选择性调谐,跨越至揭示皮层神经网络如何实现记忆提取与物体表征,中间亟需对突触尺度的神经编码变换建立定量描述。Hebb 早期提出的细胞集群(cell assembly)理论将神经元间的时间协同视作认知加工的基本单元,并引入按固定时序依次激活的“相位序列”(phase sequence)概念来解释更为复杂的思维与记忆过程。随后,多电极同步记录与交叉互相关技术的成熟,使评估相邻单细胞间的协同作用成为可能;初级视皮层研究亦证实,复杂感受野特性可通过简单感受野细胞的突触汇聚实现初步整合。然而,在高级视觉与记忆中枢(如颞叶皮层),微小解剖范围内的神经元如何协同执行表征计算,长期缺乏直接的电生理证据。
以往针对灵长类颞下叶(IT)与内侧颞叶系统的研究多偏向于宏观功能定位或单个神经元调谐刻画。宏观功能磁共振成像能够界定参与物体识别与联想学习的脑区,却无法解析皮层柱内部毫秒级、单细胞尺度的有向信息流;常规电生理记录常将神经元孤立分析,难以揭示神经信号如何在局部微回路中逐步变换。在物体成对联想记忆任务中,神经元表现出线索保持活动(cue-holding)、配对回忆活动(pair-recall)或成对联合表征(pair-association)等多样化功能特性,但这些表征究竟是由独立细胞分散编码,还是沿着明确的微回路时序依次级联传递,此前缺乏系统整合。
针对上述问题,Hirabayashi 等人通过在清醒猕猴颞叶皮层开展精细的多微电极阵列记录,将微回路界定为解剖间距小于 300 µm 的局部神经元集群,并运用非参数格兰杰因果与信息论分析,系统梳理了微回路内部及跨区域的信息变换规律。本综述旨在提炼局部微回路计算的普适性原理,强调基于微回路实测连接来解析编码演化。需指出的是,微电极采样技术在单次实验中仅能捕捉极少数神经元对,所重构的有向信息流属于典型微回路抽样,尚未涵盖全脑所有中间神经元亚型;成对联想任务依赖长期的认知训练,其所揭示的突触可塑性与回路反转机制在一般自然视觉场景下的普遍性仍有待进一步拓展。
研究思路
本综述的论证逻辑围绕“微回路尺度界定 → 区域内记忆信号流 → 层间动态反转 → 跨区域表征级联”依次递进展开。作者将微回路明确定义为:空间物理间距小于 300 µm(大致相当于单根皮层柱或密集连接球体)的神经元局部网络;将“微回路计算”严格界定为通过单细胞间实测的有向突触交互推导出的神经表征变换。
全文依托经典成对联想记忆任务(pair-association task)构建分析体系:首先在围嗅皮层(perirhinal cortex,area 36)内识别负责线索保持的神经元(CH)与负责配对回忆的神经元(PR),应用频域格兰杰因果分析检验两者间的信息流动方向与振荡频段,评估相位序列的物理实体;进而将视野转向皮层层状结构,追踪浅层与深层之间在学习编码期与记忆提取期的信号流向切换;最后跨越下颞叶 TE 区与围嗅皮层 area 36,追踪稀疏的前体表征神经元如何通过区域间前向与侧向循环连接实现表征扩散,形成完整的微回路计算逻辑图景。
方法
综述汇总的实验证据主要来自成年猕猴在成对联想任务中的微电极电生理记录。行为任务包括:线索呈现、延迟保持以及配对选择三个阶段,要求动物通过视觉线索回忆出与之匹配的另一物体图像。
记录技术主要应用单进针多微电极系统或微驱动电极对,解剖定位于下颞叶皮层 TE 区及内侧颞叶围嗅皮层(area 36)。微回路分析以相距 <300 µm 的神经元为分析单元;计算方法结合了移位校正互相关直方图(SSCC)、频域非参数格兰杰因果分析(多锥形交叉谱分解)以及基于香农信息论的解码互信息评估。层间记录结合皮层微电流刺激诱发场电位以精确定位皮层层状分布(颗粒层及上、下层)。跨脑区分析则利用逆向示踪染料结合同步记录,量化 TE 区向 area 36 投射的突触汇聚度。
主要结果
- 物体记忆提取的信号流方向呈现明确的 CH → PR 级联。在围嗅皮层(area 36)内同步记录单神经元对并开展格兰杰因果分析显示:编码同一物体对的线索保持神经元(CH)与配对回忆神经元(PR)之间,在延迟期记忆提取阶段信号流显著由 CH 流向 PR,反向因果极为罕见;且该定向信息流在 gamma 频段(40–70 Hz)内达到峰值,证实记忆信息由保持表征向提取表征的有向转化(图 1、2)。
- 信号在 PR 神经元群体内展现时序级联扩散。在由多个 PR 神经元构成的局部微回路中,信号流并非同步发放,而是表现为从早期活化的 PR 神经元向晚期活化的 PR 神经元依次单向传递;时序领先的 PR 细胞通过局部侧向突触连接驱动下游 PR 细胞,构成了局部网络中表征级联扩散的典型图景。
- 皮层层间信息流动随认知状态发生功能性反转。在 area 36 的层间微回路中,信号流动方向直接受任务阶段调节:在外界视觉刺激输入与编码阶段,信息流主要自浅层(颗粒上层)向前反馈流向深层(颗粒下层);而在记忆延迟期与自主回忆阶段,深层神经元则反向驱动浅层神经元,呈现由深至浅的自下而上驱动,推翻了皮层层间连接固定单向的经典假设(图 2B)。
- 跨区域联结表征遵循“TE 少数前体创建 → area 36 循环增殖”的级联规律。在 TE 区与 area 36 的层级投射中,表征成对联想信息的神经元分布极不均匀:TE 区中仅有约 5% 的神经元能够编码成对物体联结(前体表征),其机制依赖于少数汇聚连接(约 12 个 TE 单特征神经元汇聚投射至一个联结细胞);而当该前体信号投射至 area 36 后,通过局部致密的双向循环突触网络反复整合,使 area 36 中联结编码神经元的比例大幅上升至约 30%,实现了联结表征的全面增殖(图 3、4)。
图注解读
图 1 · 微回路与物体联想记忆任务的组织框架
原文图注:Figure 1. Microcircuits and their organization for object association in macaque temporal cortex. (A) Schematic diagram showing activities of functionally different classes of neurons in macaque inferior temporal (IT) cortex. In this task, monkeys were presented with a cue stimulus first, and two different objects were then presented following the delay period, one of which was the paired-associate of the cue-stimulus and the other a distracter. The monkeys were then rewarded when they correctly chose the paired-associate. Monkeys were trained to learn six pairs of objects. Using this task, several types of IT neurons showing different response patterns have been identified [42,43,75]. These neurons potentially interact during the cue and/or memory retrieval period in the task. (B) Potenti……
这张总览图分三步铺垫全文问题。A 面板画出任务时间线与三类功能神经元(线索响应、配对编码,以及细分的 CH 与 PR)各自的放电模式;B 面板是"潜在连接图"——线索信息如何经微回路操作被转换为联想性物体表征或目标提取信号(图中以问号标出待检验的问题);C 面板把问题抬升到皮层层级:一个区域经微回路操作产生的变换后编码,会被传到下一个区域、由该区域固有的计算原则继续加工。它支撑的是全文的提问方式,而非某条具体结论。
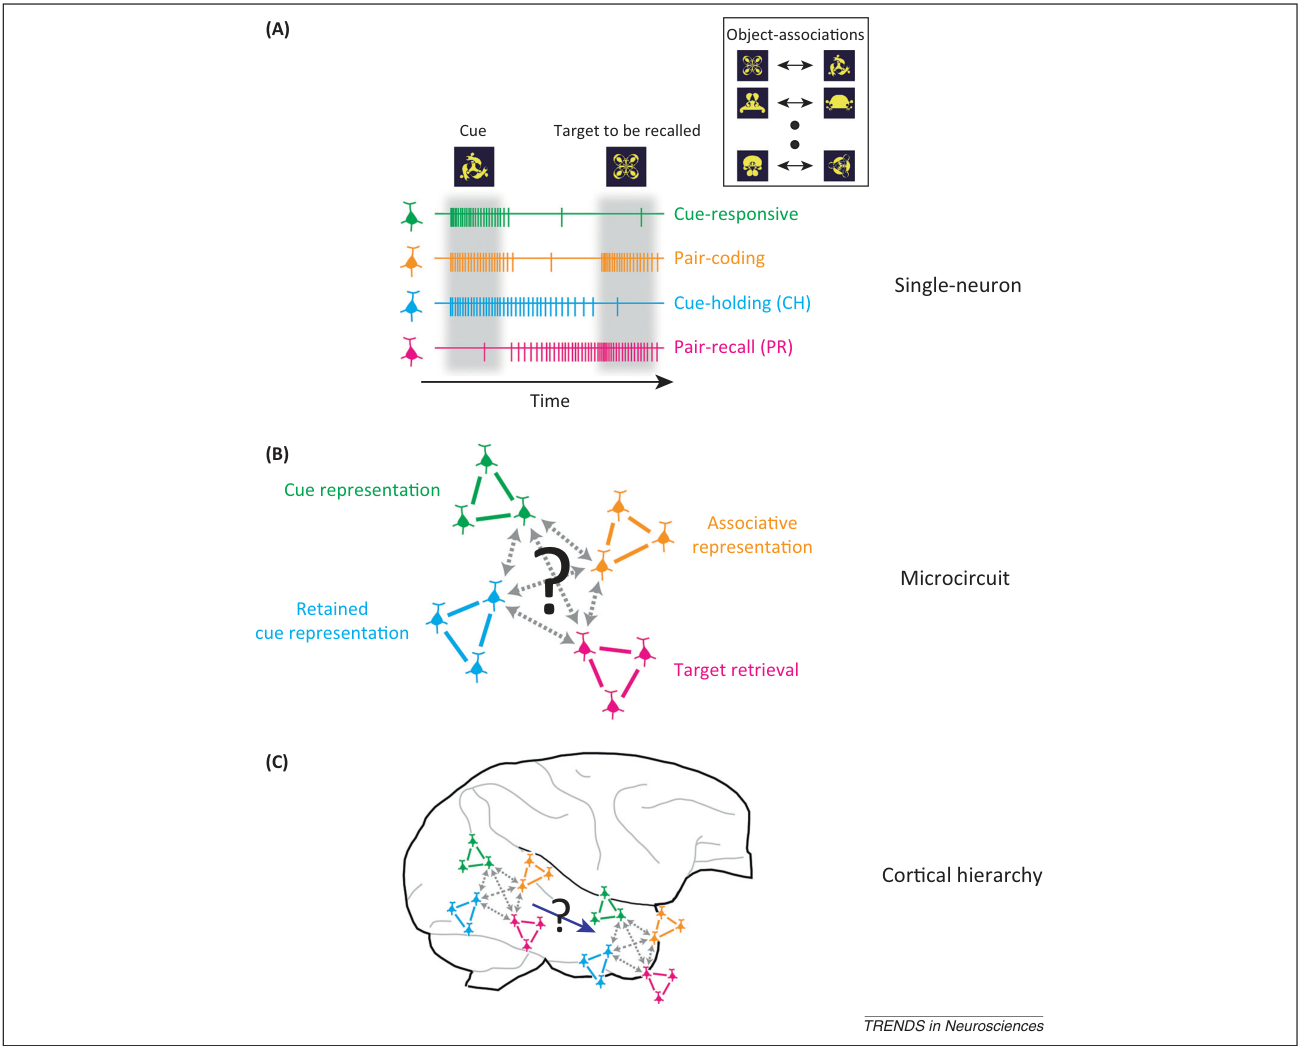
图 2 · 物体记忆提取微回路中的信号流
原文图注:Figure 2. Information flow in a microcircuit of macaque perirhinal cortex underlying retrieval of object association memory. (A) Population results of the Granger causality from cue-holding (CH) neurons to pair-recall (PR) neurons (top) and in the opposite direction (bottom). Vertical white lines represent cue onset and offset. Note that CH and PR for the causality analysis encoded the same object pair. During the memory retrieval period, neuronal signal flow emerged predominantly in the direction from CH to PR. (B) Population results of the Granger causality for CH–PR1–PR2 triplet recordings. Top, Granger causality from PR1 to PR2 triggered by that from CH to PR1. Abscissa, the time from the maximum Granger causality from CH to PR1 in each triplet……
读法:A 面板是人群平均的 Granger 因果时频图,横轴为线索呈现后的时间、纵轴为频率,颜色深浅代表因果强度;上图为 CH→PR 方向,下图为 PR→CH 方向——提取期(线索消失后)只有 CH→PR 方向在 gamma 段(30–120 Hz)显著,方向性一目了然。B 面板把三元组记录按"各自 CH→PR1 因果峰值时刻"对齐,可见 PR1→PR2 的因果紧随其后,而 PR2→PR1 则弱得多。C 面板是微回路模型示意:蓝(CH)与红(PR)神经元的亮度表示放电率,箭头表示有向交互。此图支撑结果 1 与 2。
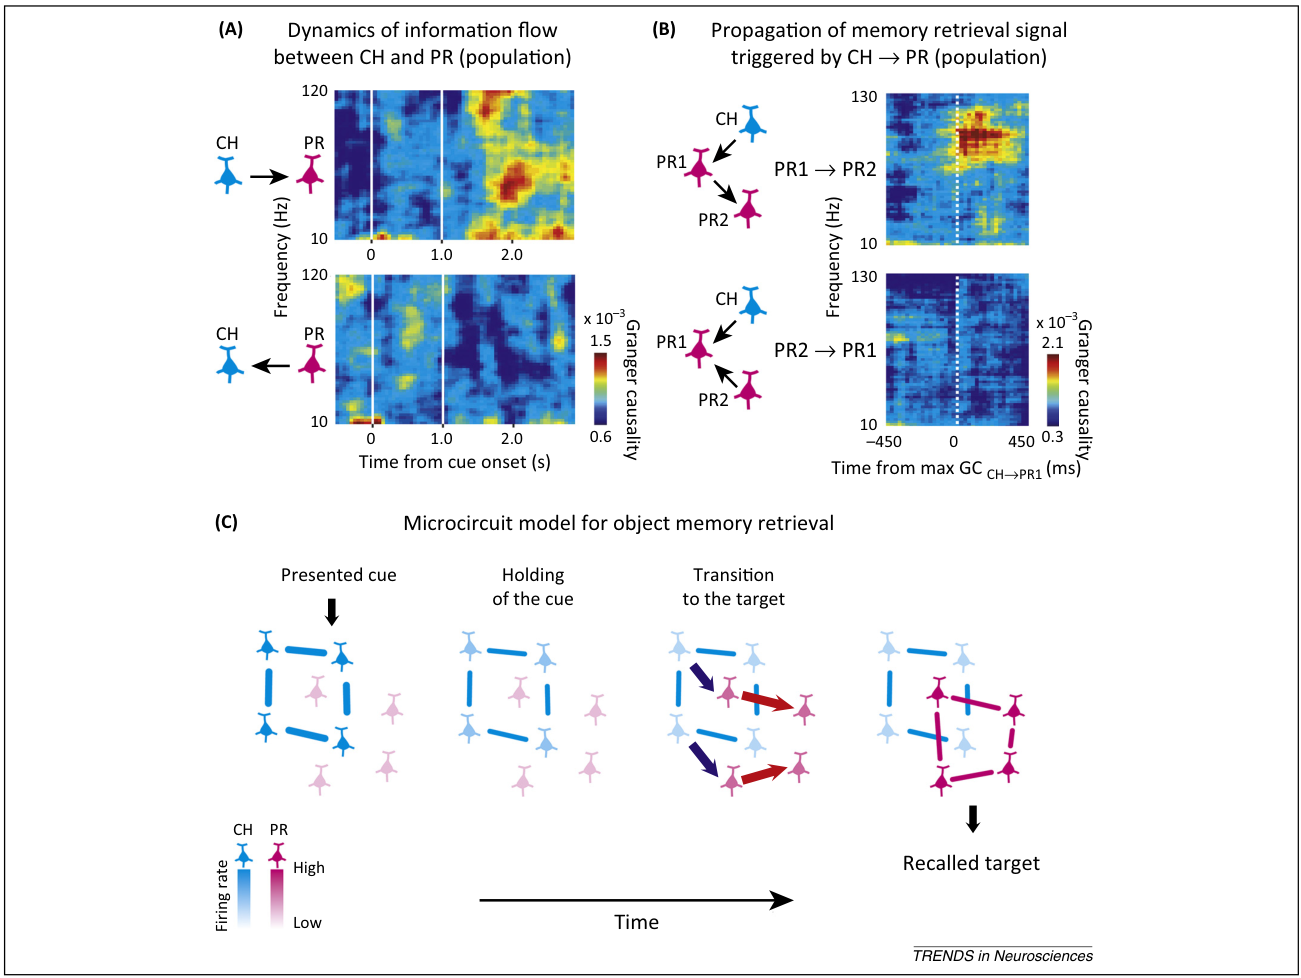
图 3 · 跨颞叶区域的联结表征回路
原文图注:Figure 3. Neuronal circuits for associative object representation across macaque temporal areas. (A) Response profiles of pairs of TE neurons that exhibited significant functional connectivity in the direction from source-neurons (bottom) to target-neurons (top). Functional connectivity was predominantly observed in the direction from neurons coding for a single object to neurons encoding a learned pair of objects, suggesting that converging microcircuits generate the representations of learned object associations. These converging microcircuits were predominantly observed in area TE, but not in area 36, suggesting that the representations of object associations are generated in area TE, but not in the higher-order area 36. (B) Dynamics of associative coding for source- and target-neurons……
读法:A 面板展示 area TE 中一例有向连接对的响应谱:source 神经元(下排)对单个物体反应最强,target 神经元(上排)则对该物体的配对联想(optimal paired-associate)反应最强——连接恰好把"单物编码"变换为"联结编码"。B 面板把 area 36 中各连接对的联结编码指标(pair-coding index,PCI,即神经元对所有学过物体对的响应相关)按 source 神经元 PCI 半最大值时刻对齐:source 的联结编码在线索呈现后快速上升,target 的则缓慢爬升。C 面板给出层级模型:TE 创建少数前体联结编码,转移到 36 后经循环交互增殖为该区主导表征。此图支撑结果 4,是"前体编码创建与增殖"原则的核心证据。
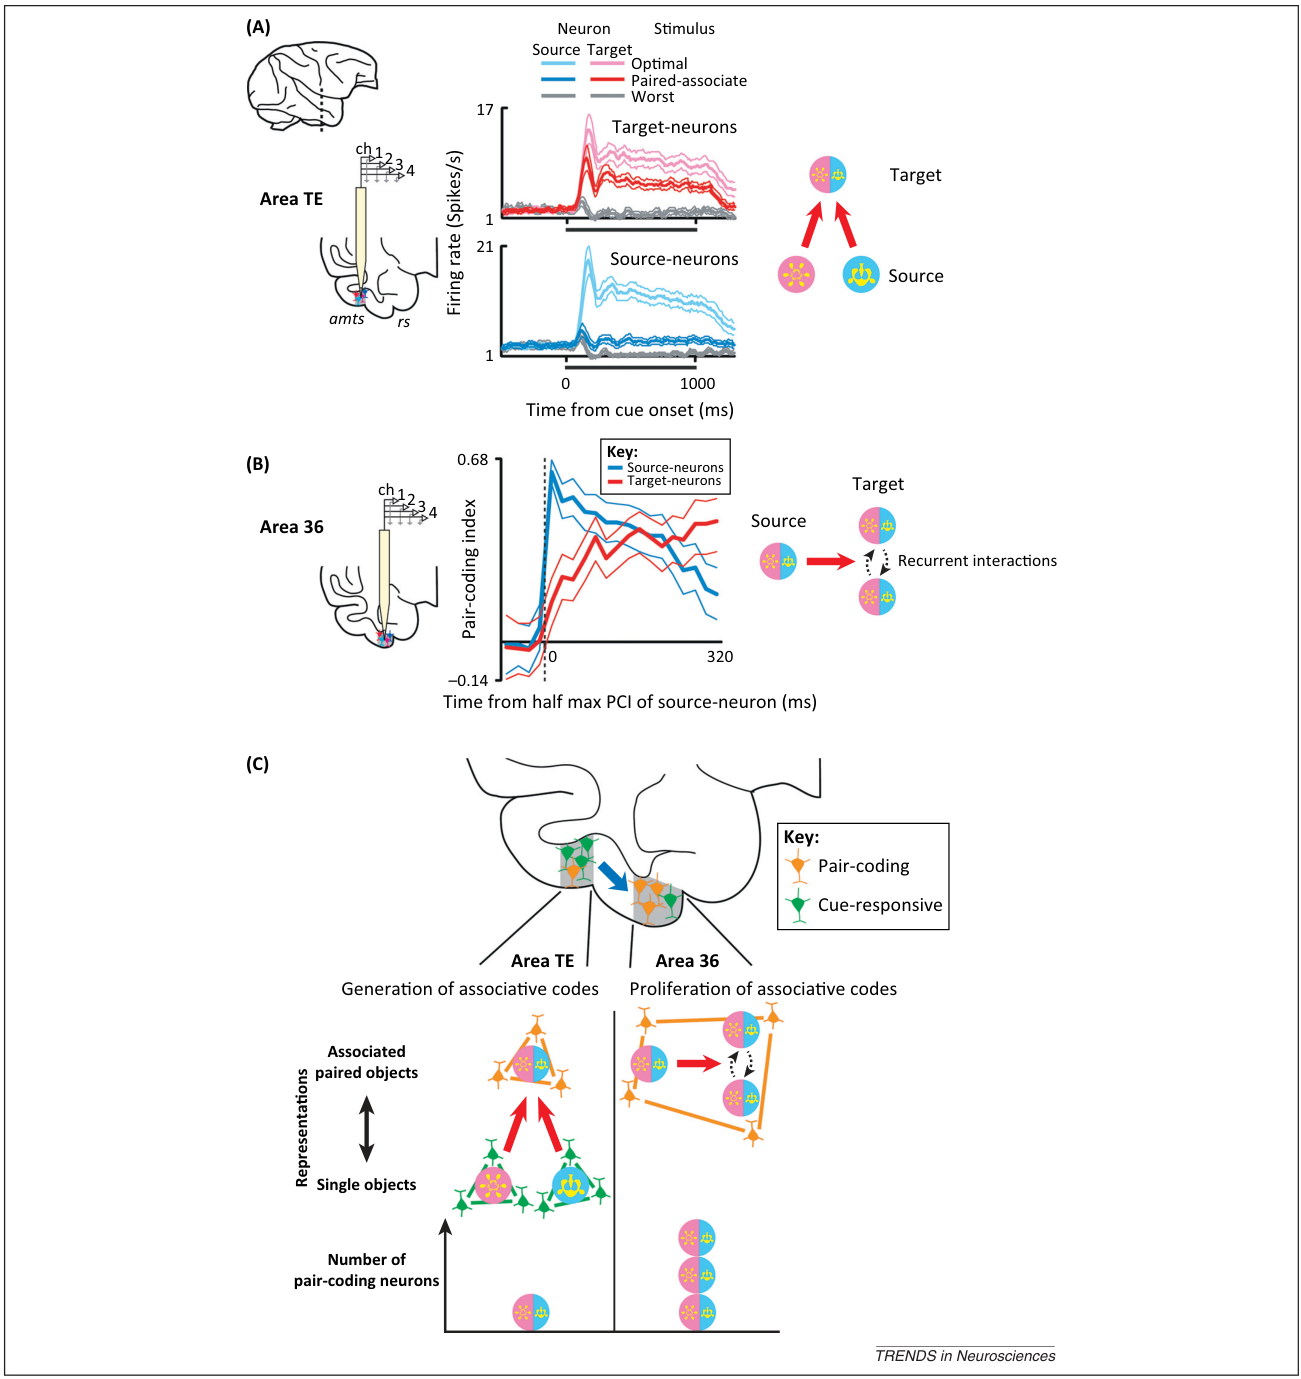
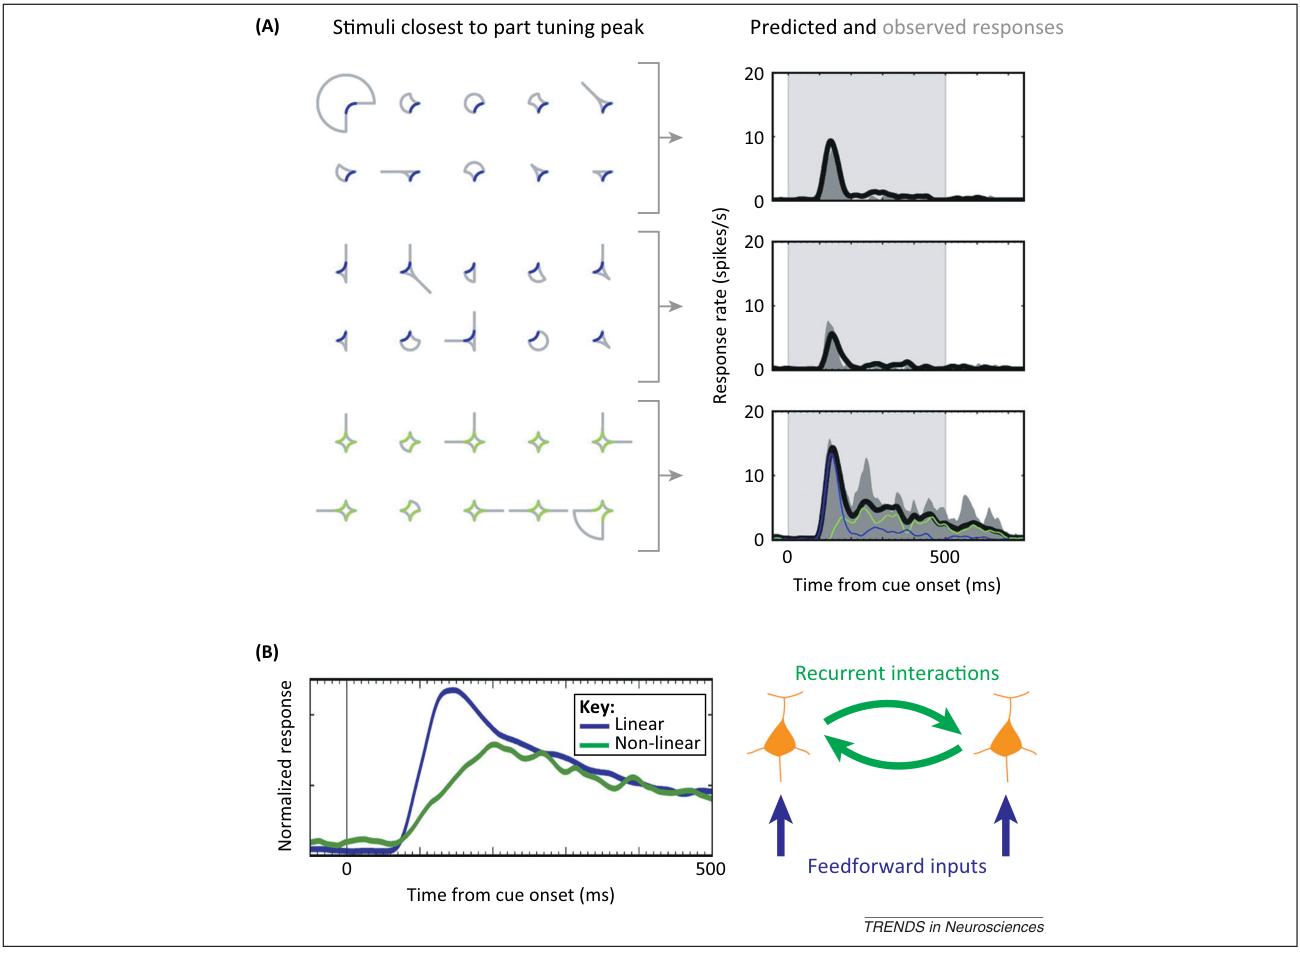
图 4 · 循环交互导致的表征渐进发展
原文图注:Figure 4. Gradual development of neuronal representations constructed by complex processing via recurrent neuronal interactions. (A) Response profile of a representative neuron in the IT cortex. In this study, neuronal response profiles to a large (>1000) stimulus set were fitted by model functions in which responses were represented by the weighted sum of several different terms, each corresponding to the response to a contour fragment in a stimulus or a combination of the fragments. Left: example stimuli including contour fragments that locate near the tuning peaks. This neuron responded primarily to two different contour fragments (left, blue) and their combination (left, green). Right: observed (grey histograms) and predicted (black traces) responses to the example stimuli. Blue and gr……
读法:A 面板是后 IT 一例神经元的响应拟合:左侧为调谐峰附近的示例刺激,右侧灰色直方图为实际放电、黑色曲线为模型预测;关键看右下角的分解——对单个曲率的线性响应(蓝)出现得快,对曲率组合的非线性响应(绿)发展明显更慢。B 面板给出线性与非线性成分的群体动态(非线性慢于线性)及机制示意:前馈输入解释快成分,调谐相似神经元间的循环交互解释慢成分,混合前馈与循环的网络模拟基本复现了观察到的动态。此图支撑结果 5:非线性、组合性的物体表征需要循环加工来逐步合成。
讨论
作者将综述中的实证证据归纳为三项核心微回路计算原理:首先,Hebb 提出的“相位序列”概念不再仅停留于理论假设,而在围嗅皮层中确立了具体的突触回路实体——表现为从线索神经元向回忆神经元的单向有向传递,以及在回忆神经元集群内部的时序链式扩散;其次,皮层微回路的层间信息流向并非固定解剖结构决定的单向通路,而是能够根据视觉编码或记忆提取的行为需求发生动态反转,展现了局部神经网络高度的功能灵活性;第三,跨脑区复杂表征的建立遵循“前向汇聚创建前体编码、循环交互实现表征扩散”的级联规律。
与传统层级视觉理论(如强调单向逐层特征抽取的传统前馈模型)相对照,本综述指出高级皮层内的表征构建深度依赖局部双向循环回路与层间反馈调控。在方法学层面,将分析尺度严格限定于解剖物理间距 <300 µm 的微回路范畴,避免了将全脑宏观关联混同于局部突触计算的局限。综述指出的未来研究方向包括:微回路内兴奋性神经元与不同抑制性中间神经元亚型在信号反转中的分工机制;以及类似的前体创建与增殖原理是否广泛适用于语义知觉和空间导航等更广泛的认知域。
一句话总结
本综述将灵长类颞叶皮层的物体记忆提取与表征过程凝练为三条微回路计算原理:线索向回忆神经元的单向时序驱动、层间信号流向随认知任务的功能性反转,以及联结表征在跨脑区传递中由少数前体经循环网络增殖扩散的演变规律。