同样的 fMRI 现象——刺激重复后脑活动下降——在纹状外视觉皮层被称作重复抑制(repetition suppression),在内侧颞叶却被称作新异性信号(novelty signal);这两者是同一机制的两种说法,还是各自独立的过程?Bunzeck 与 Thiel 在这篇综述里动用一支"药理学操作系统"来裁决:分别阻断或增强 GABA、乙酰胆碱(ACh)与多巴胺(DA)三条递质系统,看它们是只扰动与此相关的重复抑制,还是全面压制新异反应。他们的结论指向后者:重复抑制与启动行为由 GABA 和 ACh 把守,而新异性编码及其时间进程由边缘多巴胺系统单独调控——对做传抑制建模或临床记忆障碍研究的读者来说,这是一篇把"抑制背后的分子"讲清楚的少有综述。
研究背景
自猴下颞叶单细胞记录揭示神经元对重复刺激的反应显著下降以来,人类功能成像在纹状外皮层、额叶与内侧颞叶(medial temporal lobe, MTL)都观察到了大尺度上的类似效应。但概念层面一直有个双关困境:Wiggs 与 Martin 把重复后减弱看作重复表征的精细与处理效率提升,常与行为启动(behavioral priming,对重复刺激反应更快)挂钩;Ranganath 与 Rainer 则把同一效应包装为"对新异信息的增强反应",与长期记忆编码(Tulving 等的经典 PET 工作)相连。两者天然地承担了不同功能角色——MTL 损伤毁掉外显编码却保得住启动(Scoville & Milner)——但由于 BOLD 信号的模糊性,成像文献往往在视觉区叫它重复抑制、在 MTL 叫它新异性信号,从神经递质层面做系统拆分的工作几乎空缺。
作者选择从药理学 fMRI 入手,这条路径在人类研究中允许"系统性给药+脑活动测量"的在体操作,虽比动物实验(可做脑内注射特异性激动剂/拮抗剂或光遗传)粗糙,却能借助药物 × 任务交互这一统计设计来压制血管性混杂(药物改变脑血流会把所有条件同向搬动,交互项才敏感于刺激特异性变化)。当时的具体缺口有三:一是 GABAergic 系统对重复抑制的调制在人类影像学上几乎无人研究(连动物研究也是空白);二是 ACh 证据彼此矛盾(多数行为研究看不到胆碱能阻断后的启动损伤,但 Thiel 团队的两个范式看见了);三是新异性处理与多巴胺的关系仍停留在间接(BOLD 无法指认 DA),需要以 DA 前体、拮抗剂与电生理时间动态补全因果链。
研究思路
综述的组织逻辑是一条"从视觉皮层走向边缘系统"的证词链。第一步给出方法论底盘:解释为何药物 × 任务交互设计能规避血管混杂、为何系统性给药既是限制也是高于动物实验的现实折中[[51,56]]。第二步用 Thiel 团队的两个经典范式——词干补全(word-stem completion,学习阶段读词并评定喜好,扫描时默写补全词干;启动量以学习词比例相对基线列表的超出量计量)与面孔重复(学习阶段对著名/非著名面孔做"是否名人"判断,扫描时以反应时作为启动指标)——并行施加 GABAergic 与 cholinergic 操作:2 mg 口服劳拉西泮(lorazepam,苯二氮卓类 GABA-A 正性变构调节剂)与 0.4 mg 静脉东莨菪碱(scopolamine,毒蕈碱型 ACh 受体拮抗剂),检验它们对两个范式中重复抑制与行为启动的影响。第三步把视野转向新异性:先以 Lisman 与 Grace 的"海马—SN/VTA 环路"模型(海马比较输入与既往记忆/情境预测,检测到不匹配时经伏隔核等把新异性信号传到中脑 DA 神经元,后者向海马释放 DA 促进长时程增强(LTP)与编码)搭骨架,再以改良 oddball 范式分离"物品新异性"(item novelty)与"情境偏差"(contextual deviance)、情绪效价与目标性等显著性形式,然后进入本研究组合拳——100 mg 左旋多巴(levodopa,DA 前体)、8 mg 加兰他敏(galantamine,胆碱酯酶抑制剂)分别作用于多巴胺与胆碱能系统,看它们在新异性处理与纯视觉区的重复抑制上各打哪里。
这套设计的聪明之处在于"双重分离":若重复抑制与新异性真是一枚硬币的两面,那么任何一处增高或减低的递质操作都应同时搬动 SN/VTA/MTL 的新异性反应与颞叶视觉区的重复抑制;反之,改为:跨研究结果提供了药理学可分离的证据,但尚不足以构成严格的同实验双重分离。事件相关电位(ERP)与脑磁图(MEG)的时间分辨率被拿来补 BOLD 的短板——重复抑制/新异性差异在刺激后多少毫秒出现、由哪个源承载,正好检验"DA 调控时间进程"这一预测。
方法
改为:本文以健康成人药理学fMRI和MEG研究为核心,同时综合普通人类影像、电生理、健康老龄化、癫痫患者颅内记录及动物实验。词汇与面孔启动:Thiel 等(2001;2002)各自分设三个药物组(安慰剂、lorazepam、scopolamine),在扫描内测试阶段比较旧词干/旧面孔与新词干/新面孔的 BOLD;还纳入情绪效价与注意操控的变体(Bentley 等,2003,使用胆碱酯酶抑制剂 physostigmine 推高胆碱水平)。新异性处理主实验(Bunzeck 等,2014):被试看室内/室外场景图片(新奇、第二次呈现即 familiar、第五次呈现即 very familiar 三档重复深度),在扫描中做室内外判断;分设安慰剂、100 mg levodopa、8 mg galantamine 三组,测 SN/VTA、海马、海马旁皮层及中枕回、梭状回等区域的 BOLD,另在编码后 24 h 测再认记忆并与药物对 SN/VTA 新异性信号的削弱程度做相关。MEG 衍生实验(Eckart & Bunzeck,2013)同样设三组药物处理,以"新 vs 非常熟悉"的对比提取神经新异性信号的时间窗口并做源定位。结构—功能关联部分以磁化转移成像(magnetization transfer ratio, MTR)量化健康老年人(55–77 岁)SN/VTA 的髓鞘/神经元完整性,与新异性信号幅度和词语学习成绩相关。
统计与分析要点:药理 fMRI 的核心推断是 drug × repetition(或 drug × novelty)交互,而非简单的"药物抬升某区活动";部分研究附加灌注 MRI 检验脑血管耦合未变;物品新异性与情境偏差等显著性概念的分离有赖改良 oddball 设计(Bunzeck & Düzel, 2006),这是锁定"DA 专属物品新异性"的关键装置;频率域证据——伏隔核的颅内电极记录(Zaehle, 2013)——则以 theta(4–8 Hz)与 beta(20–30 Hz)功率的下降把物品新异性与情境偏差区分开,且编码期的 theta 功率变化可预测后续记忆成绩。
主要结果
-
GABAergic 操作几乎整体可见地削弱重复抑制,但只有特定范式。在词干补全任务中,安慰剂条件下左侧纹外皮层、左中/下额、左下顶、右小脑、左丘脑与左扣带均表现出对"旧词干"的活动减弱;这几个区域全部被 2 mg lorazepam 与 0.4 mg scopolamine 显著调制(药物 × 重复抑制交互;图 2 上半部分为安慰剂,下半部分为药物)。纹外皮层的具体机制是:lorazepam 把"新词干"的活动压了下去、对旧词干无变化,说明药物损伤的是新异信息的初始加工,与"学习前给药而非学习后给药才破坏启动"的行为证据吻合(Vidailhet 等,1994)。
-
同样的 GABAergic 操作在面孔重复任务中毫无作为:即便同一批被试在词干任务上启动受损,面孔启动与面部相应脑区的重复抑制(右侧梭状回)都完好无损(图 3)。这表明药理学调制具有任务依赖性,词干补全启动对 GABAergic 调制远比面孔重复启动敏感。
-
胆碱能阻断在两个任务里都有效。scopolamine 损伤词干补全启动与著名面孔启动;附加行为实验确认这是对获得(acquisition)而非提取过程的干扰——给药若在学习阶段之后则无损伤(Thiel 等,2002)。神经层面上,它在词干任务中削弱与 lorazepam 相同脑区的重复抑制,但机制相反:在左侧纹外皮层表现为对"旧词干"活动显著升高(与阿尔茨海默病人纹外皮层的观察相似);在面孔任务中,它让右梭状回对新、旧著名面孔的 BOLD 不再有差异,即重复抑制被破坏(图 3)。这与动物研究形成有趣张力——Miller 与 Desimone 在猴下颞叶延迟匹配任务中看不见 scopolamine 效应,作者的解释是时间尺度不同:只有长间隔(long lag)的启动才受胆碱能调制。
-
药物方向性非常不对称。胆碱酯酶抑制剂 physostigmine 确实增强了左侧枕下回在注意状态下的情绪与中性面孔的重复抑制,但该区在安慰剂下本无显著抑制,且行为启动的恢复只出现在情绪面孔上;作者解释为拮抗剂 scopolamine 阻断健康成人胆碱传递的作用比激动剂更彻底,激动剂(如 galantamine 效果较弱)只在特殊条件(如情绪效价)下起效。同样地,Bunzeck 等 2014 中左旋多巴与加兰他敏都对行为启动的反应时没有显著效果。
-
新异性处理属于多巴胺边缘系统、与重复抑制在药理上分离(图 4 与图 5)。改良 oddball 研究证明 SN/VTA 只对物品新异性反应、对情境偏差、情绪效价与目标性都没反应(海马则对物品新异与情境偏差都反应,选择性更低)[Bunzeck & Düzel, 2006]。Bunzeck 等(2014)中,安慰剂组 SN/VTA、海马旁皮层与海马的新异性信号随重复深度递减;100 mg levodopa 大幅削弱这些新异性信号,削弱程度与 24 h 后的再认记忆成绩相关;8 mg galantamine 却把 SN/VTA 与 MTL 的新异性信号方向反转(变成对重复的增强反应);而中枕回、梭状回与后海马旁皮层的纯视觉重复抑制在 levodopa 下完好无损(图 5)。作者由此主张:DA 调控的是长期记忆编码相关的新异性处理,而非行为启动和启动相关的重复抑制。
-
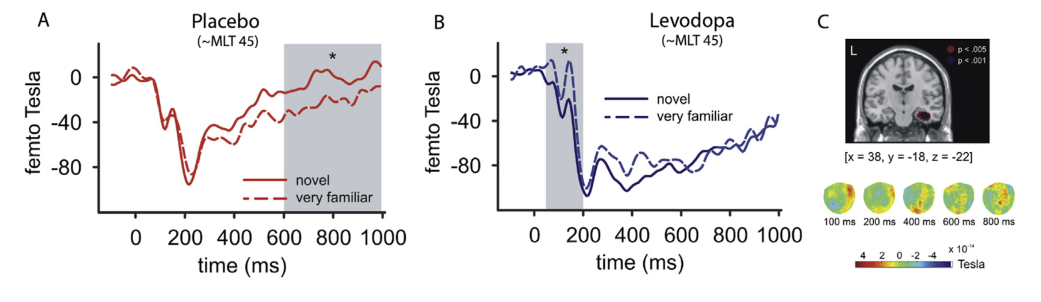
DA 把新异性信号"调快"而非"调强"(图 6)。MEG 显示安慰剂组的新异性效应在刺激后约 300 ms 出现并定位于 MTL;levodopa 把起始提前至约 50–200 ms,且源定位于右侧 MTL;galantamine 则把底层神经基质(neural substrates)从 MTL 移到前额叶。这与奖励动机把新异性信号从约 200 ms 加速到 85 ms 的先前发现一致[Bunzeck 等,2009],支持 DA 对新异敏感 MTL 神经元处理速度的因果作用;后续研究进一步表明 DA 水平与老/新神经信号呈倒 U 形关系——轻度提高加速处理,过量则拖累(Apitz & Bunzeck, 2013)。另有 DAT1 基因 9R 等位基因增强听觉 N1、apomorphine 加速新异性 N2 并改善自由回忆等旁证;健康老年人 SN/VTA 的 MTR 与其新异性信号及词语学习成绩相关,levodopa 可剂量依赖地改善其海马编码(Chowdhury 等,2012),构成对海马—SN/VTA 模型的结构—功能佐证。
图注解读
图 1 · 两个启动范式示意
原文图注:Fig. 1 – Illustration of the word-stem completion (left) and the face repetition paradigm (right).
解读:这是一张并排示意图:左侧画词干补全任务(扫描外先学习一组词,扫描时呈现词干且新旧混合,要求默写出最先想到的词);右侧画面孔重复任务(一览著名/非著名面孔后判断是否名人,扫描时以反应时为启动指标)。它为整篇综述的 GABA/ACh 部分提供"道具说明"——后面所有药物操纵都在这两个范式上做平行测试,正是为了排查任务依赖性。
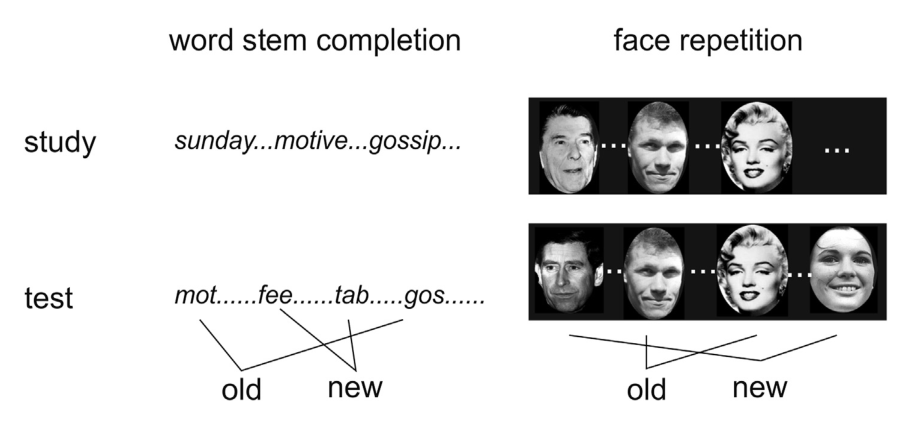
图 2 · 词干补全任务的重复抑制与药物调制
原文图注:Fig. 2 – Repetition suppression effects in the word-stem completion task. In the placebo condition, several brain regions showed reduced activation to old word-stems. All of these brain regions were significantly modulated by lorazepam and scopolamine. In extrastriate cortex this effect was due to a decrease of neural activity to new word-stems under lorazepam and an increase of neural activity to old word-stems under scopolamine. : p < .01; *: p < .001. Figure adapted from (Thiel et al., 2001).
解读:图的上半部分是安慰剂条件下的重复抑制脑区(左外侧裂四周的纹外皮层、额下/额中、下顶、右小脑、丘脑与扣带),下半部分是两个药物组的调制效应。关键读法在纹外皮层的条件柱状图里:lorazepam 与 scopolamine 都取消了"旧词干 < 新词干"的落差,但路径相反——前者把新词干的 bar 压到与旧持平(对新异加工的干扰),后者把旧词干的 bar 抬到与新持平(更像一种增加反应而非抑制削弱);图注里 ** 与 *** 分别标 p < .01 与 p < .001。这一对比支撑主要结果第 1、3 条,也暴露出"同一现象在不同递质摆脱下机制不同"的问题。
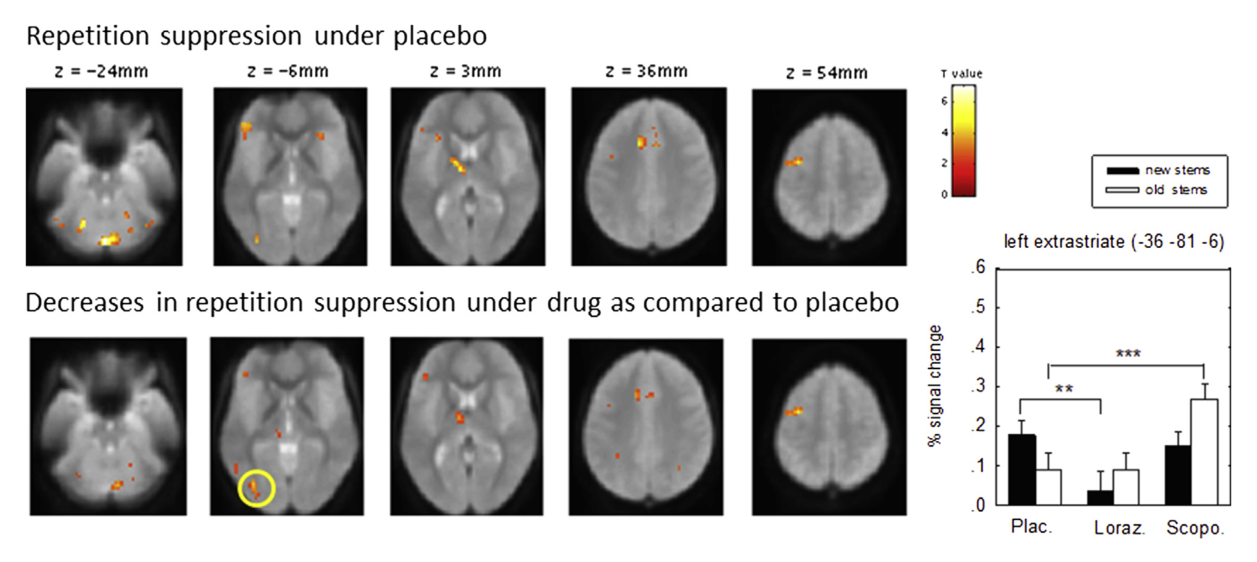
图 3 · 面孔重复任务的选择性药物效应
原文图注:Fig. 3 – Repetition suppression effects in the face repetition paradigm. In the placebo condition, the right fusiform cortex yielded a fame by repetition suppression interaction, which was due to reduced neural activity to old faces when faces were famous and increased activity when faces were unfamous. Repetition suppression for famous old faces was intact under lorazepam. Under scopolamine neural activity to old and new famous faces was not significantly different which suggests an impairment in repetition suppression. : p < .05; **: p < .001. Figure adapted from (Thiel et al., 2002).
解读:此处读的是右梭状回在三个药物条件下的活动模式对比。安慰剂组有"名望 × 重复"交互:著名旧面孔活动下降(命中重复抑制),非著名旧面孔活动反而升高;lorazepam 组该交互保持(对著名旧面孔的抑制完好)——这就是 GABA 对面孔重复抑制"无效"的图形化证据;scopolamine 组中著名的新旧面孔 BOLD 变得不可分(图注最后一句),即胆碱能阻断破坏了重复抑制本身,从而支撑"胆碱能系统是两范式通用的必要递质"这一结论。图注中的显著性标记(: p < .05;**: p < .001)来自原实验(Thiel 等,2002)。
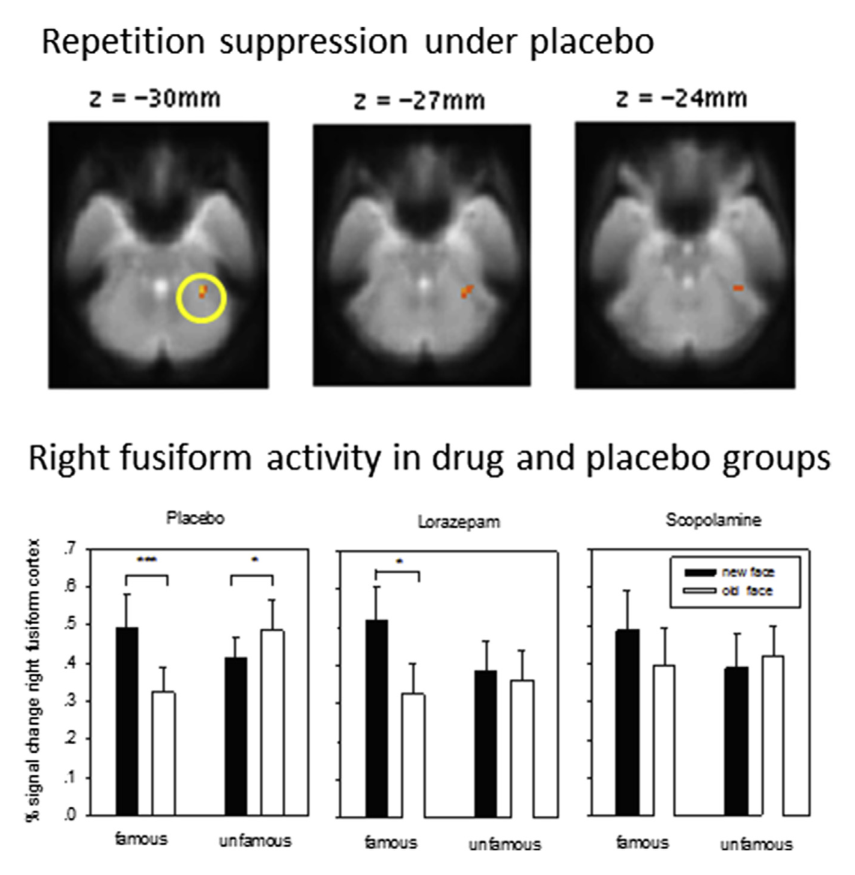
图 4 · 新异性信号在边缘系统中的递质操控
原文图注:Fig. 4 – Novelty effects in the SN/VTA, parahippocampal cortex and hippocampus. In all three brain regions repeated processing of scene images led to reduced activation under placebo. This effect was diminished by levodopa and reversed by galantamine. Error-bars denote one standard error of the mean and asterisks indicate statistically significant differences (: p < .05; *: p < .01; n.s.: not significant). A.u. abbreviates 'arbitrary unit'. Figure adapted from (Bunzeck et al., 2014).
解读:这张图是 DA/新异性主张的枢纽证据。三个条件柱状图——SN/VTA、海马旁皮层、海马——都在三组药物条件下画了新、熟悉、非常熟悉三档激活值(误差线为标准误,激活单位为 arbitrary unit)。安慰剂组随重复递减(新异性信号正常);levodopa 组曲线被压平(新异性信号被削弱,减弱程度与 24 h 再认成绩相关体现了功能意义);galantamine 组则出现"倒置"——重复后活动反而升高(图注所谓 reversed,图中的星号与 n.s. 标注了哪些药物 × 重复差异显著)。它支撑主要结果第 5 条,尤其是"胆碱能刺激在边缘系统反而制造重复增强"这一反直觉发现。
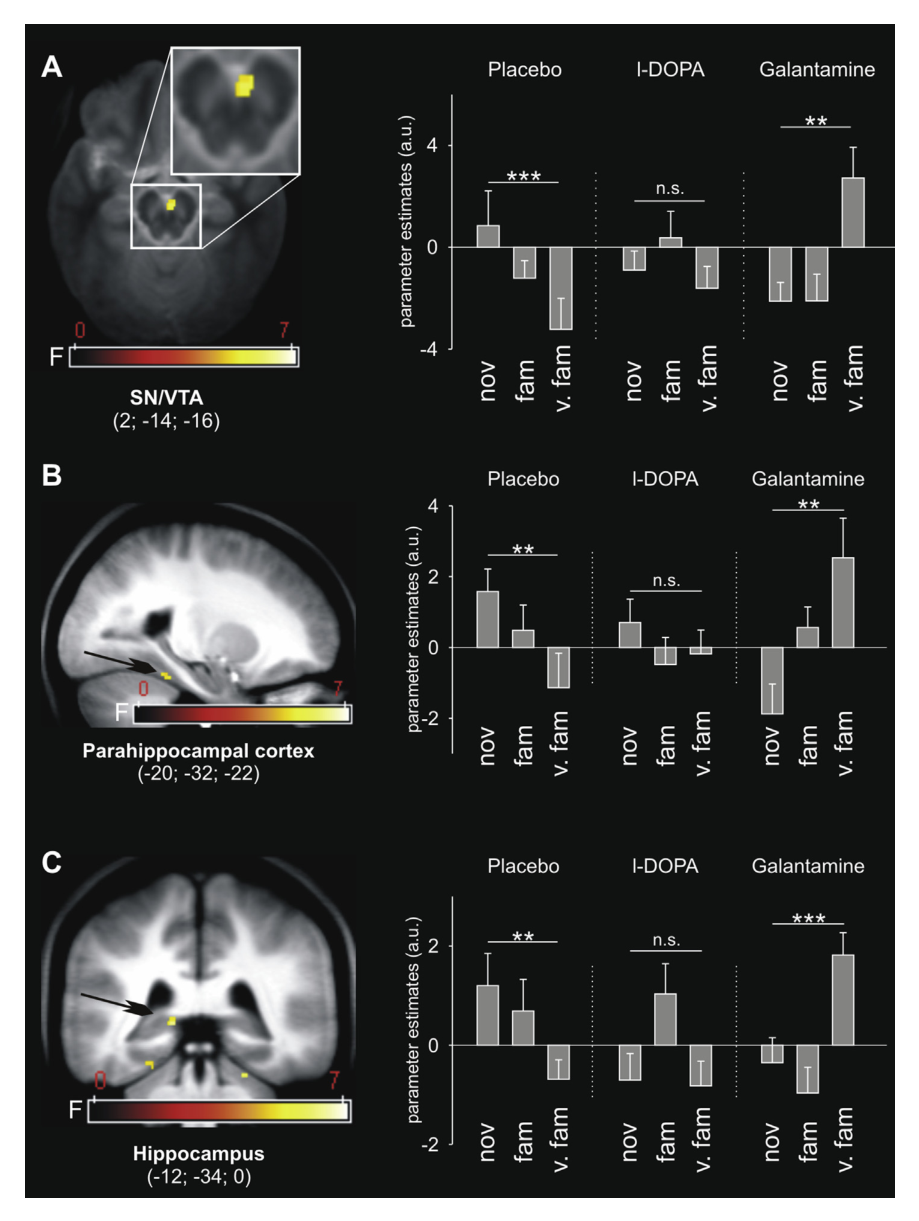
图 5 · 视觉皮层的重复抑制不受多巴胺药物影响
原文图注:Fig. 5 – Repetition suppression. Repeated processing of scene images led to reduced activation in posterior brain regions including middle occipital gyrus (A), fusiform gyrus (B) and parahippocampal gyrus (C). Error-bars denote one standard error of the mean and asterisks indicate statistically significant differences (: p < .05 (one-tailed); : p < .05; **: p < .01). A.u. abbreviates 'arbitrary unit'. Figure adapted from (Bunzeck et al., 2014).
解读:这张图与图 4 是同一实验里的双分离镜像:A(中枕回)、B(梭状回)、C(海马旁回)三个"视觉侧"区域在安慰剂下有清晰的重复抑制(邻近刺激的响应更低),且星号按单尾/双尾的分级标准标注了显著性(: p < .05 单尾;: p < .05;**: p < .01)。读图关键:无论是 levodopa 还是 galantamine,这三区的"新 vs 熟悉"落差与安慰剂组基本一致,未被搬动——正是这一阴性结果让 SN/VTA 与 MTL 的新异性反应在药理上"独立"于视觉皮层抑制效应,构成主要结果第 5 条的另一半。
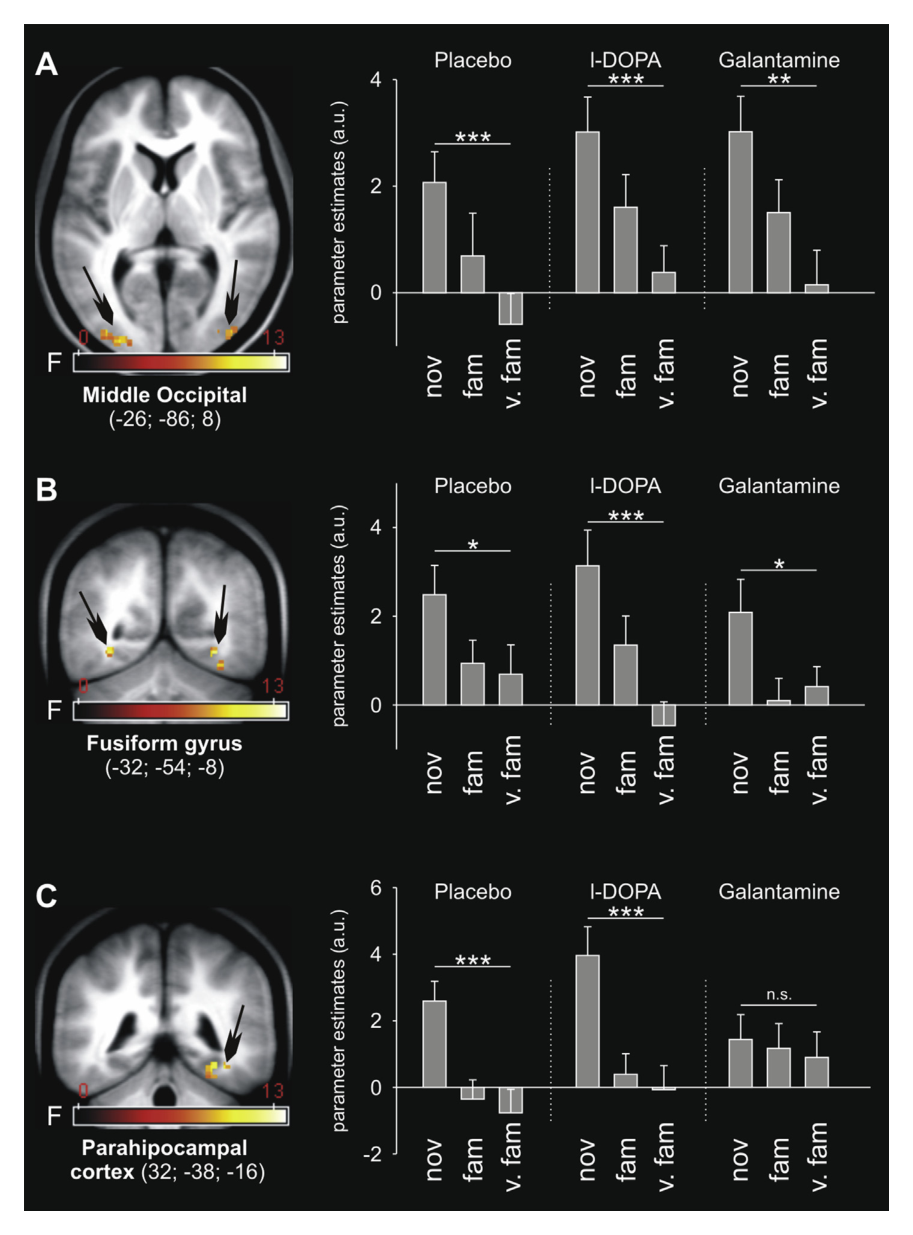
图 6 · 左旋多巴加速新异性信号出现时间
原文图注:Fig. 6 – Levodopa accelerates neural novelty processing. In the placebo group (A), repeated processing of scene images (novel vs very familiar) was associated with neural novelty signals emerging at ~300 msec after stimulus onset. In the levodopa group (B), this effect emerged already at ~50–200 msec (B) and could be source localized to the right MTL (C). Topographical maps (C) are based on the contrast 'novel' versus 'very familiar' images. Asterisks represent statistically significant differences for the comparison 'novel' versus 'very familiar' images (p < .05). Figure adapted from (Eckart & Bunzeck, 2013).
解读:此图把"DA 调通道速度"的论断画成时间轴:A 面板是安慰剂组的波形/时间过程,新异性差异(新 vs 非常熟悉,星号标 p < .05 的显著差异时段)约在刺激后 300 ms 才出现;B 面板是 levodopa 组,差异提早到约 50–200 ms;C 面板是拓扑图/源定位,把该差异指认为右侧内侧颞叶。这是主要结果第 6 条的图形论证,也顺带呼应了"药物与奖励加速新异性信号"两条证据的同构性——DA 操控的是 MTL 新异性敏感神经元的处理速度本身,而非信号强度的简单放大。
讨论
作者在收束时给出的是"双轨分工"的图景:重复抑制集中在感觉脑区(如梭状回),其神经运作与 GABAergic、cholinergic 处理都相互交互;新异性处理则集中在多巴胺边缘系统,DA 最主要的贡献是对时间动态的调控而非行为启动——于是两者"多半不是一枚硬币的两面,而是独立的过程"(摘要原意)。作者也勾出了系统间的趋同:ACh 与 DA 都在啮齿类探索新环境时被释放到海马、都提升编码时 MTL 活动、都与行为成绩呈倒 U 关系(ACh:Kukolja 等;DA:Apitz & Bunzeck)、都随年龄衰减,因此在总结中呼吁"参数化操纵药物剂量并直接比较不同递质系统"的后续工作。文章坦率承认的局限包括:尚无研究系统检验多巴胺类激动剂/拮抗剂对不同启动范式的效应;ACh 拮抗剂与激动剂的效力差让"激动剂无效"难以解释为该系统不重要;早期"重复抑制是否自动/自下而上"的争议已转向"受自上而下预期驱动"(Summerfield 等),但预期效应如何与递质系统交集完全没有答案;皮层重复抑制是否部分继发于丘脑等皮层下结构也悬而未决。与单细胞文献的对话(Miller & Desimone)同样点出时间尺度与物种范式差异——这正是把人药理 fMRI 的效应外推到"神经回路层面重复抑制"时最薄弱的一环。
一句话总结
以我个人的理解,这篇综述真正的贡献不是罗列了哪种药动哪个脑区,而是把"重复抑制"和"新异性信号"这对在成像文献里被随口互换的概念钉在了不同的递质证据上:视觉区的抑制归 GABA/胆碱能管,边缘系统的新异性信号与时间进程归 DA 管,加兰他敏居然在 SN/VTA 反转信号更是点睛。至于"独立过程"的结论,我觉得证据是半结构式的——药物双分离立住了,但由于人药理研究无法像动物那样做受体特异性局部注射,被"分开"的到底是递质作用还是脑区特异性,文中并未完全切割干净,这一点读时须有自己的判断。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[] - Fig4: 提取质量
good,对齐度full,识别面板[A] - Fig5: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig6: 提取质量
good,对齐度full,识别面板[A, B, C]
关键事实与局限性声明
- 审校纠偏: “GABA和ACh把守重复抑制,DA单独调控新异性”把相互作用的调制系统写成了排他性分工。
- 审校纠偏: “双重分离即告成立”高估了跨研究、跨任务比较的推断强度。
- 审校纠偏: “胆碱能系统是两范式通用的必要递质”忽略了关键组间比较不显著,且“必要”需要更直接的因果证据。
- 审校纠偏: “锁定DA专属物品新异性”混淆了新异性类型选择性与递质特异性。
- 审校纠偏: “把抑制背后的分子讲清楚”高估了这篇叙述性综述的机制解析程度;现有证据主要支持系统性药物调制,而非受体、局部回路或细胞机制。
- 补充要点: 遗漏了面孔实验中scopolamine与安慰剂的直接组间比较不显著这一关键阴性结果。
- 补充要点: 没有明确说明本文是叙述性综述,因而不存在单一物种、统一样本量或统一实验设计;原文也未系统列出各被引研究的样本量。
- 补充要点: 没有在核心结论处充分保留作者的限制:尚无研究系统比较多巴胺激动剂和拮抗剂在不同启动范式中的作用。
- 补充要点: 电生理旁证采用的“新异性”定义并不一致,且原文提示去甲肾上腺素等其他递质也可能参与;这些证据不能全部并入同一DA机制链。