视觉刺激重复呈现时引发的神经活动减弱,在纹状外视觉皮层通常被定义为重复抑制(repetition suppression),而在内侧颞叶常被称为新异性信号(novelty signal)。这两类现象属于同一神经机制的不同表述,还是分立的神经生物学过程?Bunzeck 与 Thiel 在该篇综述中结合药理学功能磁共振成像(pharmacological fMRI)及电生理研究,系统探讨了 GABA、乙酰胆碱(ACh)与多巴胺(DA)三大神经递质系统对重复抑制与新异性反应的特异性调控。证据表明:感觉皮层的重复抑制及相关的行为启动受 GABA 与 ACh 系统调节,而边缘系统的新异性表征及其时间动力学主要由多巴胺系统调控。
研究背景
自灵长类下颞叶单细胞电生理记录发现神经元对重复刺激的放电率下降以来,人类功能神经影像在纹状外皮层、额叶及内侧颞叶(MTL)均观察到刺激重复诱发的血氧水平依赖(BOLD)信号减弱。然而在概念界定上长期存在双重表述:Wiggs 与 Martin 将重复诱发的活动减弱解释为神经表征精细化与信息加工效率提升,通常与行为启动(behavioral priming,对已知刺激反应时缩短)相关联;Ranganath 与 Rainer 等则将相似的对比定义为“对新异刺激的放电响应增强”,与外显长时记忆编码(Tulving 等经典的 PET 研究)紧密相连。从功能和解剖损伤角度看,二者具有分离特征——内侧颞叶损伤会破坏外显记忆编码,但启动效应基本保持完好(Scoville & Milner)。但在 BOLD 影像研究中,同类减弱在视觉区常被归为重复抑制,在内侧颞叶常被归为新异性信号,两者的神经化学递质机制此前缺乏系统梳理。
作者采用药理学 fMRI 作为切入点,通过在人体内系统性给药并结合脑功能成像,检验特定受体通路的因果参与。通过在统计模型中引入“药物 × 任务条件”的交互作用项,能够有效排除药物对全脑基础脑血流造成的非特异性血管动力学干扰。当时该领域存在三项核心问题待明确:其一,GABA 能系统对人类重复抑制的调控作用尚未见系统影像学报道;其二,乙酰胆碱的作用在行为学与脑成像间存在分歧;其三,多巴胺系统在人类新异性表征中的调节效应仍主要依赖间接推论,缺乏基于多巴胺前体、受体拮抗剂以及高时间分辨率脑电/脑磁图(MEG)的联合因果链条。
研究思路
综述的论证逻辑围绕“感觉皮层至边缘系统”的解剖与功能梯度展开。方法论层面:阐释通过药物 × 任务交互设计分离神经特异性效应与全身血管混杂因素的统计原理。感觉皮层层面:采用 Thiel 团队的两项启动实验范式——词干补全(word-stem completion,在扫描外评估词汇偏好,扫描内测试补全并计算启动量)与面孔重复(扫描外评估名望,扫描内记录再认反应时)——平行开展 GABA 与胆碱能药物干预:口服 2 mg 劳拉西泮(lorazepam,GABA-A 受体正性变构调节剂)与静脉注射 0.4 mg 东莨菪碱(scopolamine,毒蕈碱型胆碱受体拮抗剂),评估其对两类任务中重复抑制与行为启动的调控效应。边缘系统层面:基于 Lisman 与 Grace 的“海马—黑质/腹侧被盖区(SN/VTA)环路”模型(海马比对感知输入与预测记忆,出现偏差时经腹侧纹状体激活中脑多巴胺神经元,进而通过多巴胺释放易化突触长时程增强与记忆编码),通过改良 oddball 范式剥离“刺激新异性”(item novelty)与“情境偏差”(contextual deviance)、情绪效价等混杂变量;随后结合 100 mg 左旋多巴(levodopa,多巴胺前体)与 8 mg 加兰他敏(galantamine,乙酰胆碱酯酶抑制剂)的药理学对比,分别测定多巴胺与胆碱能干预对中脑/海马新异性信号及枕颞叶重复抑制的影响。
该研究设计构建了双向分离逻辑:若重复抑制与新异性信号同属单一机制,则药理学干预应同步影响两类效应;若二者在药理学上能够被独立解离,则支持其对应不同的神经调控过程。结合脑磁图(MEG)的时间动力学分析,进一步明确神经信号差异涌现的时程窗口,以检验多巴胺系统调节处理速度的假说。
方法
文中汇总的研究均基于健康成年受试者的药理学脑功能成像。词汇与面孔启动研究:Thiel 等 (2001, 2002) 设立三组双盲对照(安慰剂、劳拉西泮、东莨菪碱),在扫描测试阶段对比新旧刺激呈现时的 BOLD 响应;并结合情绪与注意力操纵(Bentley 等 2003,采用毒扁豆碱 physostigmine 提升胆碱水平)。刺激新异性实验:Bunzeck 等 (2014) 让受试者对室内/室外场景图片进行分类判断,设置新异、第二次呈现(熟悉)及第五次呈现(高度熟悉)三级重复深度;分为安慰剂、100 mg 左旋多巴与 8 mg 加兰他敏三组,采集 SN/VTA、海马、海马旁皮层及梭状回、中枕回的 BOLD 信号,并在编码 24 小时后开展行为学再认测试。高时间分辨率 MEG 实验(Eckart & Bunzeck, 2013)同样包含三组药理处理,通过“新异 vs 高度熟悉”对比提取早期与晚期神经电活动时程并进行源空间重建。结构-功能关联方面,采用磁化转移成像(MTR)定量测量健康老年人 SN/VTA 的微结构完整性,分析其与新异性信号幅度及词语记忆成绩的相关性。
统计分析要点:药理 fMRI 重点关注药物组别与实验条件的交互效应;通过正交对比区分刺激项目的新异性与知觉偏差;结合局部场电位记录(如伏隔核颅内电极,Zaehle 2013),通过 theta(4–8 Hz)与 beta(20–30 Hz)振荡功率的动态变化解析新异性加工。
主要结果
-
GABA 能调节对特定任务的重复抑制产生显著抑制:在词干补全任务中,安慰剂组左侧纹外皮层、左侧额中/下回、左侧顶下小叶、右侧小脑、左侧丘脑与左侧扣带回对旧词干表现出 BOLD 活动减弱;这组脑区在 2 mg 劳拉西泮与 0.4 mg 东莨菪碱干预下均呈现显著的药物 × 重复交互效应(图 2)。在纹外皮层中,劳拉西泮主要降低了对“新词干”的神经响应,而对旧词干反应无明显改变,这与行为学上“仅在学习前给药才会破坏启动效应”的规律相符(Vidailhet 等 1994)。
-
GABA 能干预表现出明显的任务依赖性:在面孔重复任务中,受试者的行为启动效应与右侧梭状回的面孔重复抑制在劳拉西泮干预下均保持完好(图 3)。表明 GABA 能系统的药理调制具有任务特异性,词干补全相关的重复抑制对 GABA 能干预显著敏感,而面孔加工受其影响较弱。
-
胆碱能阻断在两类启动任务中均表现出破坏效应:东莨菪碱同时损害词干补全启动与著名面孔启动;行为测试表明该损伤特异于信息获取(acquisition)阶段,若在学习完成后给药则不产生干扰(Thiel 等 2002)。在神经机制上,东莨菪碱在词干任务中破坏与劳拉西泮相同的重复抑制脑区,但在左侧纹外皮层表现为对“旧词干”的放电活动显著升高;在面孔任务中,东莨菪碱使得右侧梭状回对新旧著名面孔的 BOLD 信号差异消失(图 3)。
-
药物效应的方向性差异:胆碱酯酶抑制剂毒扁豆碱增强了注意状态下左侧枕下回对情绪面孔与中性面孔的重复抑制,但行为启动的提升仅局限于情绪面孔;在 Bunzeck 等 (2014) 的实验中,左旋多巴与加兰他敏对基础知觉启动的反应时未产生显著改变。
-
新异性加工在解剖与药理学上独立于后部视觉皮层的重复抑制:改良 oddball 实验表明中脑 SN/VTA 仅选择性响应刺激本身的新异性,对情境偏差、情绪刺激及目标属性均不敏感,而海马区对刺激新异与情境偏差均表现出激活(Bunzeck & Düzel, 2006)。在 Bunzeck 等 (2014) 的研究中,安慰剂组 SN/VTA、海马旁皮层及海马的新异性信号随刺激重复深度递减;100 mg 左旋多巴显著压低了这些新异性信号幅度,且信号削弱程度与 24 小时后的外显再认成绩呈正相关;8 mg 加兰他敏则导致 SN/VTA 与海马的信号方向发生反转(对重复刺激表现出反向增强);而在同一实验中,中枕回、梭状回与海马旁回后部的纯视觉重复抑制在左旋多巴作用下保持稳定(图 4 与图 5)。这表明多巴胺系统特异性调控与长时记忆编码相关的边缘新异性信号,而不直接调控后部视觉皮层的重复抑制。
-
多巴胺系统加速新异性信号的处理时程:脑磁图记录显示,安慰剂组针对新异刺激的神经信号差异在刺激呈现后约 300 ms 出现,源定位于内侧颞叶;左旋多巴干预将该信号的起始时间显著提前至刺激后约 50–200 ms,且源定位于右侧内侧颞叶;加兰他敏则将新异性相关的皮层源自内侧颞叶转移至前额叶(图 6)。这与奖赏预期将新异性信号起始自 200 ms 加速至 85 ms 的发现一致(Bunzeck 等 2009),表明多巴胺系统直接调节内侧颞叶新异性敏感神经元的信息处理速度,且多巴胺水平与神经反应呈现倒 U 形调节特性(Apitz & Bunzeck, 2013)。
图注解读
图 1 · 两个启动范式示意
原文图注:Fig. 1 – Illustration of the word-stem completion (left) and the face repetition paradigm (right).
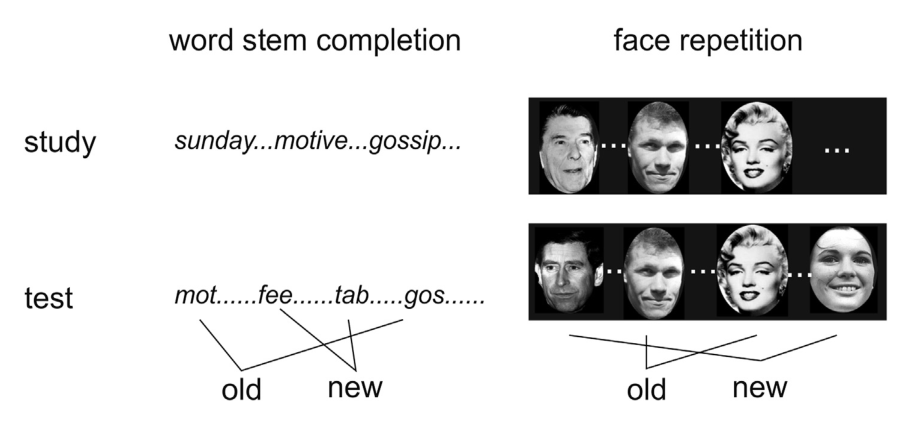
读图说明:该图包含两项启动范式的流程示意:左侧为词干补全任务(扫描前学习词汇列表,扫描期间呈现新旧混合词干,要求受试者自发补全为首个联想到的单词并计算启动效应);右侧为面孔重复任务(呈现著名与非著名面孔,要求判定知名度,扫描内以新旧呈现的反应时缩短作为知觉启动指标)。该流程为后续平行对比 GABA 与胆碱能药物在不同任务中的表现提供了实验范式基础。
图 2 · 词干补全任务的重复抑制与药物调制
原文图注:Fig. 2 – Repetition suppression effects in the word-stem completion task. In the placebo condition, several brain regions showed reduced activation to old word-stems. All of these brain regions were significantly modulated by lorazepam and scopolamine. In extrastriate cortex this effect was due to a decrease of neural activity to new word-stems under lorazepam and an increase of neural activity to old word-stems under scopolamine. : p < .01; *: p < .001. Figure adapted from (Thiel et al., 2001).
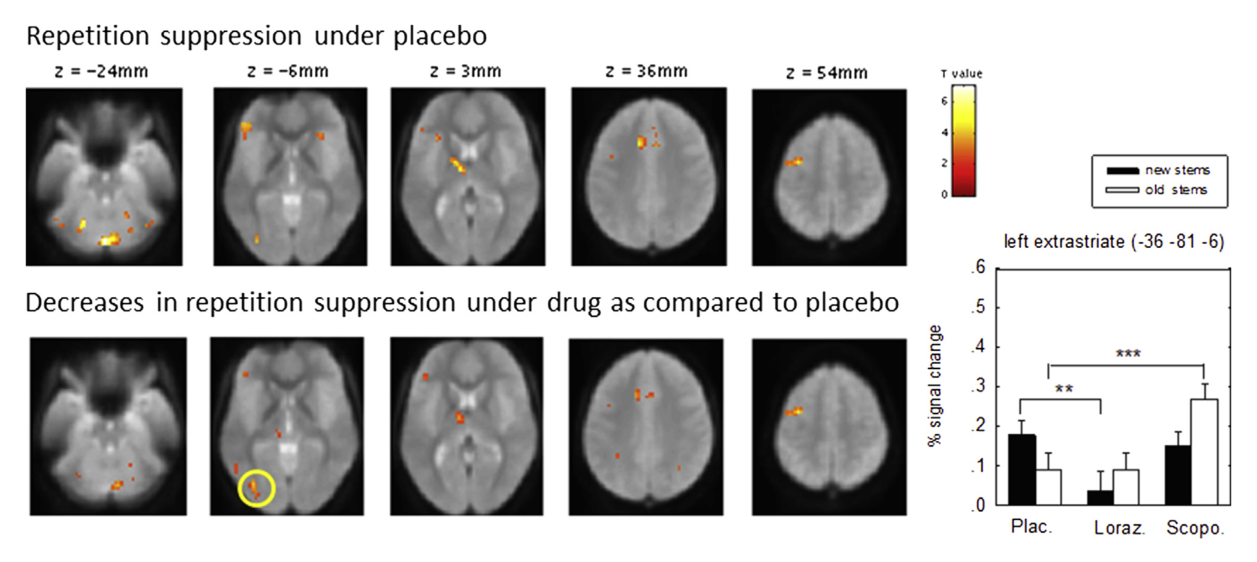
读图说明:上部展示安慰剂条件下呈现显著重复抑制的解剖脑区(纹外皮层、额中/下回、顶下叶、右侧小脑、丘脑与扣带回);下部为劳拉西泮与东莨菪碱的调制对比。在纹外皮层柱状图中,两组药物均消除了新旧词干间的活动差异,但神经机制不同:劳拉西泮压低了对新词干的反应幅度,而东莨菪碱则反向抬升了对旧词干的反应水平。星号标示两两对比的统计显著性水平(: p < .01; *: p < .001)。该图支撑主要结果第 1 条与第 3 条。
图 3 · 面孔重复任务的选择性药物效应
原文图注:Fig. 3 – Repetition suppression effects in the face repetition paradigm. In the placebo condition, the right fusiform cortex yielded a fame by repetition suppression interaction, which was due to reduced neural activity to old faces when faces were famous and increased activity when faces were unfamous. Repetition suppression for famous old faces was intact under lorazepam. Under scopolamine neural activity to old and new famous faces was not significantly different which suggests an impairment in repetition suppression. : p < .05; **: p < .001. Figure adapted from (Thiel et al., 2002).
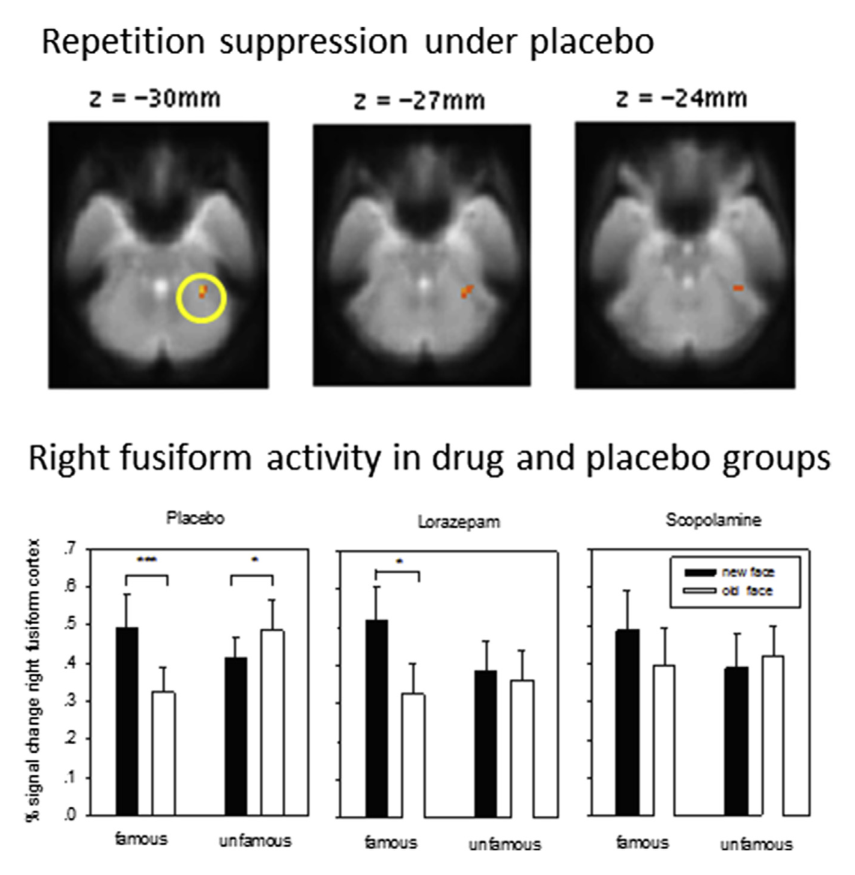
读图说明:该图展示右侧梭状回在三种药物条件下的 BOLD 响应模式。在安慰剂条件下呈现名望 × 重复交互效应:著名旧面孔引发显著活动减弱(重复抑制),非著名面孔则表现为活动增强;在劳拉西泮条件下该交互效应保持稳定,表明 GABA 能调节未破坏面孔重复抑制;而在东莨菪碱条件下,著名新旧面孔的活动差异消失,提示胆碱能阻断破坏了面孔加工中的重复抑制效应(: p < .05; **: p < .001)。该图支撑主要结果第 2 条与第 3 条。
图 4 · 新异性信号在边缘系统中的递质操控
原文图注:Fig. 4 – Novelty effects in the SN/VTA, parahippocampal cortex and hippocampus. In all three brain regions repeated processing of scene images led to reduced activation under placebo. This effect was diminished by levodopa and reversed by galantamine. Error-bars denote one standard error of the mean and asterisks indicate statistically significant differences (: p < .05; *: p < .01; n.s.: not significant). A.u. abbreviates 'arbitrary unit'. Figure adapted from (Bunzeck et al., 2014).
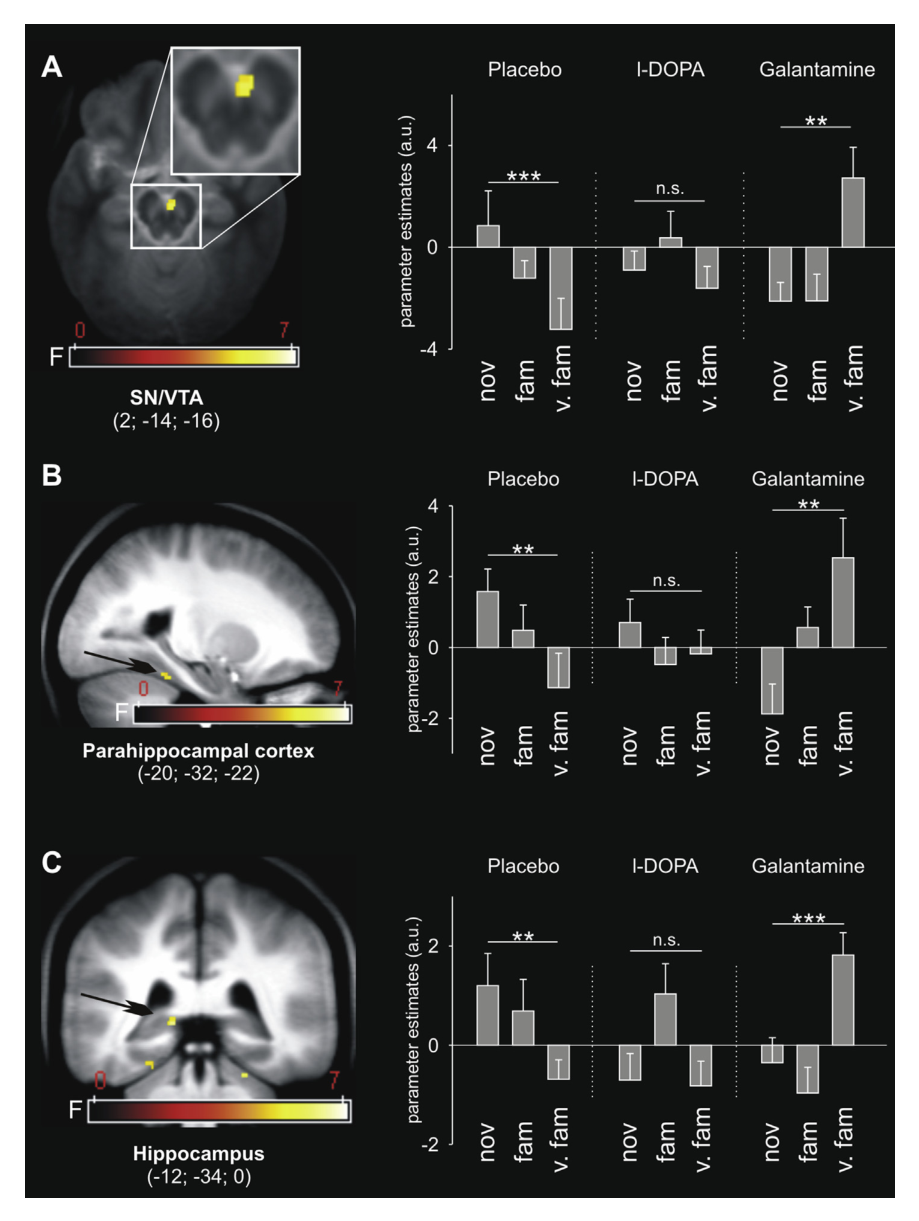
读图说明:展示中脑黑质/腹侧被盖区(SN/VTA)、海马旁皮层及海马在三组药物干预下的新异性响应(误差线表示均值标准误,纵坐标为任意激活单位 a.u.)。安慰剂组三个脑区对新异、熟悉及高度熟悉场景表现出递进的活动减弱;左旋多巴组显著削弱了上述新异性梯度;加兰他敏组则导致信号模式出现反转(重复呈现引发活动升高)。星号与 n.s. 标明了统计差异显著性。该数据对应主要结果第 5 条中多巴胺与胆碱能干预对内侧颞叶新异性信号的调控。
图 5 · 视觉皮层的重复抑制不受多巴胺药物影响
原文图注:Fig. 5 – Repetition suppression. Repeated processing of scene images led to reduced activation in posterior brain regions including middle occipital gyrus (A), fusiform gyrus (B) and parahippocampal gyrus (C). Error-bars denote one standard error of the mean and asterisks indicate statistically significant differences (: p < .05 (one-tailed); : p < .05; **: p < .01). A.u. abbreviates 'arbitrary unit'. Figure adapted from (Bunzeck et al., 2014).
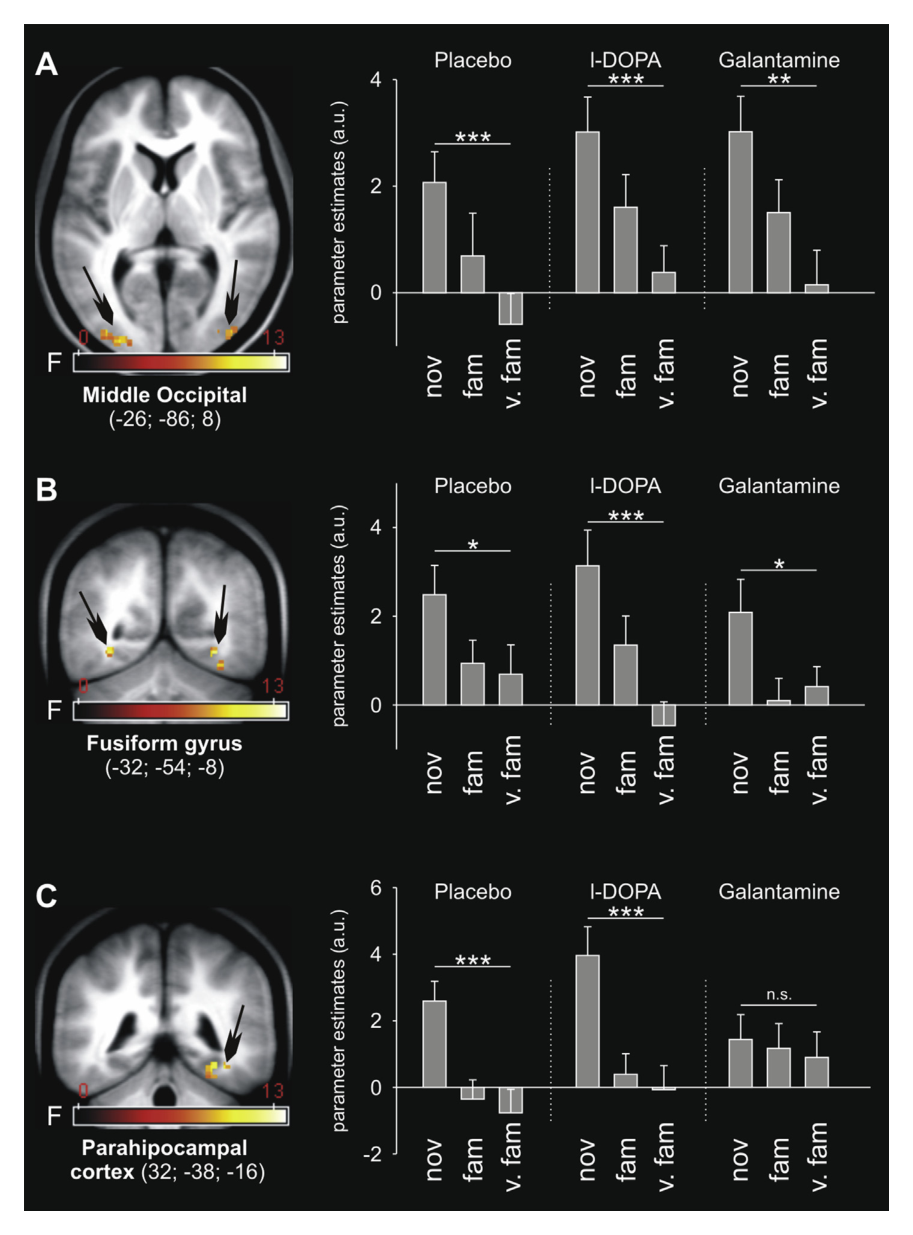
读图说明:图表展示同一实验中后部感觉皮层的响应:中枕回 (A)、梭状回 (B) 及海马旁回 (C) 在安慰剂、左旋多巴及加兰他敏组中均呈现稳定的重复抑制(新异刺激反应显著高于重复刺激;: p < .05 单尾;: p < .05;**: p < .01)。与图 4 对比可见,左旋多巴在明显削弱边缘系统新异性信号的同时,并未干扰视觉皮层的重复抑制,确立了感觉皮层抑制与边缘新异性信号在药理学上的解离。该图支撑主要结果第 5 条后半部分。
图 6 · 左旋多巴加速新异性信号出现时间
原文图注:Fig. 6 – Levodopa accelerates neural novelty processing. In the placebo group (A), repeated processing of scene images (novel vs very familiar) was associated with neural novelty signals emerging at ~300 msec after stimulus onset. In the levodopa group (B), this effect emerged already at ~50–200 msec (B) and could be source localized to the right MTL (C). Topographical maps (C) are based on the contrast 'novel' versus 'very familiar' images. Asterisks represent statistically significant differences for the comparison 'novel' versus 'very familiar' images (p < .05). Figure adapted from (Eckart & Bunzeck, 2013).
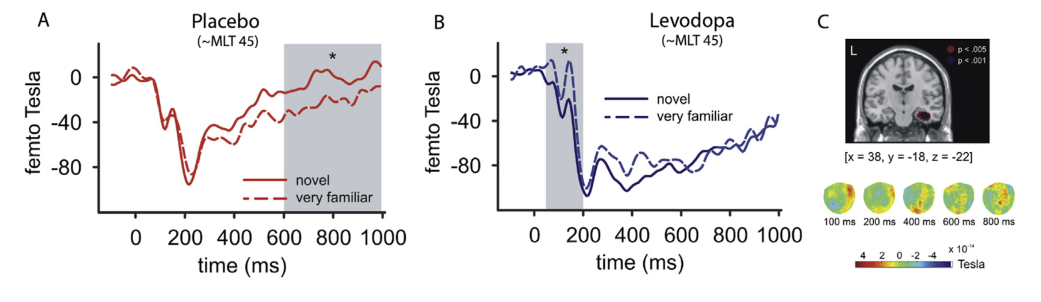
读图说明:该脑磁图分析描绘了新异性表征的时间动力学:面板 A 显示安慰剂组的新旧差异波(新异 vs 高度熟悉)在刺激呈现后约 300 ms 显著出现;面板 B 显示左旋多巴组的新异性差异提前至 50–200 ms 出现(星号标示 p < .05 差异时段);面板 C 展示源空间定位地形图,证实提前出现的神经激活起源于右侧内侧颞叶皮层。该图为主要结果第 6 条中多巴胺加速新异性处理时程提供了高时间分辨率电生理证据。
讨论
作者系统总结了感觉皮层重复抑制与边缘系统新异性信号的功能与药理学分立:重复抑制主要定位在知觉感觉皮层(如梭状回),受 GABA 与乙酰胆碱能通路的调节,主要与知觉启动效应相对应;新异性信号主要定位于多巴胺支配的边缘微回路(如海马与 SN/VTA),多巴胺的核心功能在于调节信息加工的时间动力学与长时记忆编码,而非直接介导知觉启动。综述同时探讨了两大递质系统的交互特性:在啮齿类动物新异环境探索实验中,海马同时伴有乙酰胆碱与多巴胺的释放,二者均参与调节内侧颞叶的编码活性,且药物剂量与行为表现均呈现倒 U 形关系(Kukolja 等;Apitz & Bunzeck)。作者指出了研究的证据边界:目前针对不同启动任务的多巴胺受体特异性激动剂与拮抗剂研究仍较为匮乏;人体系统性给药无法等同于动物局部脑区受体微量注射,药理学效应在多大程度上反映了特定递质通路的特异性调控,仍需结合更精细的分子受体影像予以进一步解析;此外,自上而下的知觉预期对重复抑制的调制如何与神经递质系统相互作用,仍有待未来工作深入探讨。
一句话总结
本综述通过药理学 fMRI 与高时间分辨率脑磁图研究,阐明了重复抑制与新异性信号在神经递质机制上的分立:感觉皮层的重复抑制主要受 GABA 能与胆碱能系统的特异性调节,对应于知觉启动与局部表征精细化;而边缘系统的新异性信号及其时间加工动力学则由多巴胺系统特异调控,服务于长时记忆编码。这一双重分离框架厘清了人类神经影像中重复抑制与新异性加工的分子调控基础。