这是一篇观点(Perspective)综述,作者以其团队在非人灵长类颞叶配联记忆上的系列研究为主线,将视觉长时记忆提取的神经机制整合为全脑网络、亚区与皮层分层、单神经元微回路三个空间尺度。综述提出了一项核心假说:不同尺度的神经元集群依托不同频段的振荡进行信息交互——局部短距通信主要借由 gamma 频段振荡展开,跨区长程信号(尤其是自记忆脑区向早期视觉区的反馈投射)则依托 beta 与 theta 等低频段同步传递,两者共同构成跨尺度的记忆检索网络。
研究背景
现代记忆研究的起点源于神经心理学经典案例:1957 年 Scoville 与 Milner 报道患者 H.M. 因难治性癫痫接受双侧内侧颞叶(medial temporal lobe, MTL)切除术,术后表现出严重的顺行性遗忘(anterograde amnesia)及呈时间梯度的逆行性遗忘(retrograde amnesia),而智力与基本知觉功能保持完好。该发现确立了记忆功能在大脑中的相对独立性;1997 年 Corkin 等借助高分辨率磁共振成像精确勾画了 H.M. 的双侧切除边界(图 1)。在此基础上,认知心理学将记忆细分为编码、存储与提取三个阶段,按时程分为感觉记忆、短时工作记忆与长时记忆,按意识状态分为陈述性记忆(含情景与语义记忆)与非陈述性程序记忆。
在神经机制层面,海马与内嗅皮层在长时记忆巩固中的核心作用已被功能影像广泛证实,但内侧颞叶内部各亚区的细致分工仍存在理论分歧;其中鼻周皮层(perirhinal cortex)作为腹侧视觉通路与内侧颞叶的交汇枢纽,是语义与客体长时记忆研究的重点区域。更为关键的是,以往研究往往孤立于单一空间尺度——或侧重全脑宏观成像,或局限于局部单细胞放电,缺乏跨越微观回路到宏观系统的机制整合。作者提出,神经振荡的特征频率是连接不同尺度神经回路的生理载体,不同结构层级间依托特定频段的锁相与相干进行信息交互。
研究思路
综述依托配联记忆(pair-association memory)范式,从宏观到微观复盘视觉长时记忆的提取机制。配联记忆要求被试预先学习成对呈现的视觉刺激(共 24 个刺激两两成对),测试时呈现线索刺激(cue),经延迟期间的内部检索后从选项中选出对应的目标关联物(图 2),是研究语义表征与记忆提取的经典行为模型。
作者的论证按四个空间尺度逐步展开:全脑网络尺度通过人类 fMRI 的知名面孔识别测验与配联记忆对比,分离新近获得记忆与远程巩固记忆的脑区依赖;微回路尺度通过鼻周皮层 36 区(area 36, A36)的四探针记录,解析“持有线索”细胞与“回忆配对物”细胞间的定向突触级联;皮层分层尺度通过电生理与组织学精准配准,追踪表征转换在皮层六层结构内部的动态流动;跨脑区尺度在 A36 与下颞叶视觉区 TE 间进行双位点同步记录,明确记忆提取期自上而下反馈信号的层状投射与频段特性。
方法
作为综述性论文,文中方法要点涵盖所引代表性研究的多模态技术体系。全脑尺度:包含人类 fMRI 任务(知名面孔测验;配联任务的新近 vs 远程对比;基于多体素模式的心理生理交互分析),以及非人灵长类 fMRI 结合药物微量注射(在猕猴元记忆任务中利用 fMRI 定位并通过微量注射 muscimol 暂时失活特定额叶靶区,评估其对主观确信度评分的因果作用)。微回路尺度:采用四探针(tetrode)在 A36 同步记录多个单神经元放电,运用格兰杰因果(Granger causality)分析推断神经元间的定向信息流动。皮层分层尺度:结合电流源密度(current source density, CSD)分析与高分辨率 MRI/电生理/Nissl 染色组织学共配准技术,将微电极记录位点精准还原至皮层 I–VI 层。跨脑区尺度:同步记录 A36 动作电位与 TE 区分层局部场电位(local field potential, LFP),开展锋电位-场电位相干(spike-LFP coherence)分析,并结合皮层脑电(ECoG)高密度柔性电极阵列进行跨区域神经解码与相位-幅度耦合(phase-amplitude coupling, PAC)分析。
主要结果
- 记忆巩固在全脑网络层面呈现时间梯度。 知名面孔识别测验显示海马主要支持学习后数年内的近期记忆巩固,而内嗅皮层则支持更长时期的远程记忆(Haist 等,2001);在配联记忆任务中,将 8 周前学习的配对与训练前刚习得的配对进行对比,发现海马对新近记忆的激活更显著,而前颞叶皮层对远程记忆呈现显著增强的激活——为颞叶皮层在长时巩固中形成稳定表征提供了直接证据(Yamashita 等,2009)(图 3)。
- 远程记忆在颞叶内部展现分工与协同架构。 Watanabe 等(2012)利用面孔与场景配对刺激发现:提取远程记忆时,不同类别的刺激特异性激活后颞叶的类别选择区,而前颞叶皮层的激活与刺激类别无关;多体素模式心理生理交互分析表明,后颞叶类别区与前颞叶非特异性区域在远程记忆提取时形成功能协同。表明后颞叶负责存储与检索类别特异性表征,前颞叶负责与类别无关的控制提取。
- 微回路内的记忆提取表现为级联式激活。 在 A36 中,一类神经元自线索呈现起维持持续放电(持线索神经元,cue-holding),另一类神经元随着配对目标回忆的逼近而放电渐强(配对回忆神经元,pair-recall)。四探针记录与格兰杰因果分析表明:延迟期内的定向信号主要在 gamma 频段由持线索神经元流向回忆神经元,回忆神经元群内部亦存在单向级联传递(Hirabayashi 等,2013)。计算模型(Mongillo 等,2003)进一步阐明,关联学习促使相互连接的神经元集群突触增强,使得预期性(prospective)放电的出现概率直接取决于训练期的关联呈现频率。
- 表征由线索向目标的转换定位于皮层 L5 并经 L6 输出。 结合电生理与组织学分层配准,Koyano 等(2016)发现:从呈现的线索刺激向待提取目标的表征转换首先出现于第 V 层(L5),随后在第 VI 层(L6)完成;L5 神经元在延迟期同时表征线索与目标(编码完整的配对关联),而 L6 的特定亚群则特异性表征被寻找的目标,并与局部低频场电位锁相,表明 L6 构成将检索结果向皮层远端输出的关键结构(图 4)。
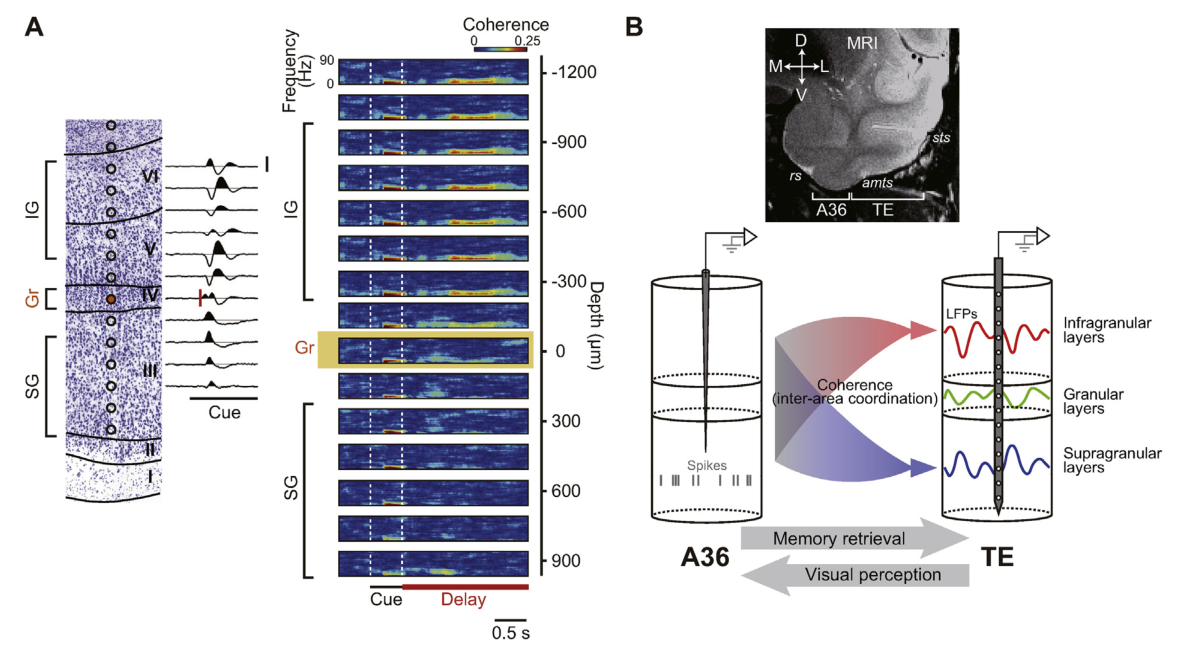
- A36 通过低频振荡向 TE 发送自上而下反馈且与提取行为相关。 Takeda 等(2015)在延迟期同步记录 A36 锋电位与 TE 各层 LFP,发现记忆提取阶段 A36 放电与 TE 低频 LFP 显著相干,A36 放电在时序上领先于 TE LFP 波谷,延迟符合跨区传导时间;A36 输出细胞分化为两组,分别与 TE 颗粒上层(supragranular)或颗粒下层(infragranular)相干,且均规避颗粒层(granular layer)——与反馈投射终结于非颗粒层的解剖规律完全吻合。在功能层面,A36 放电诱发 TE 的局部 gamma 振荡,且与颗粒下层低频相干的放电能够有效调制颗粒层的高频能量,该耦合强度在正确提取试次显著高于错误试次(图 5)。补充实验显示,ECoG 阵列在 theta 频段展现出类别选择性,且成对刺激诱发相似的跨区域空间拓扑模式,支持低频振荡在记忆检索中的通信角色(Nakahara 等,2016)。
图注解读
图 1 · H.M. 的 MRI Evidence:哪些结构被切除了
原文图注:Fig. 1. MR images of H.M. The series of T1-weighted MR images arranged from rostral (A) to caudal (F) through the temporal lobe of H.M. (left) and a control subject (right) are shown. The control brain illustrates the structures that are likely to have been eliminated in the brain of H.M. at each rostrocaudal level. A, amygdala; EC, entorhinal cortex; cs, collateral sulcus; PR, perirhinal cortex; H, hippocampal formation; f, fimbria; Cer, cerebellum; V, ventricle; MMN, medial mammillary nucleus.
这张图展示了六个由吻侧至尾侧的 T1 加权 MR 冠状切面,左列为 H.M. 术后影像,右列为 66 岁健康对照脑切面,标示出 H.M. 在各冠状截面上切除的内侧颞叶结构(包含杏仁核 A、内嗅皮层 EC、副沟 cs、鼻周皮层 PR、海马结构 H 及穹窿伞 f 等)。该影像图谱确立了双侧内侧颞叶切除导致严重记忆缺损的神经解剖基础(引自 Corkin 等 1997)。
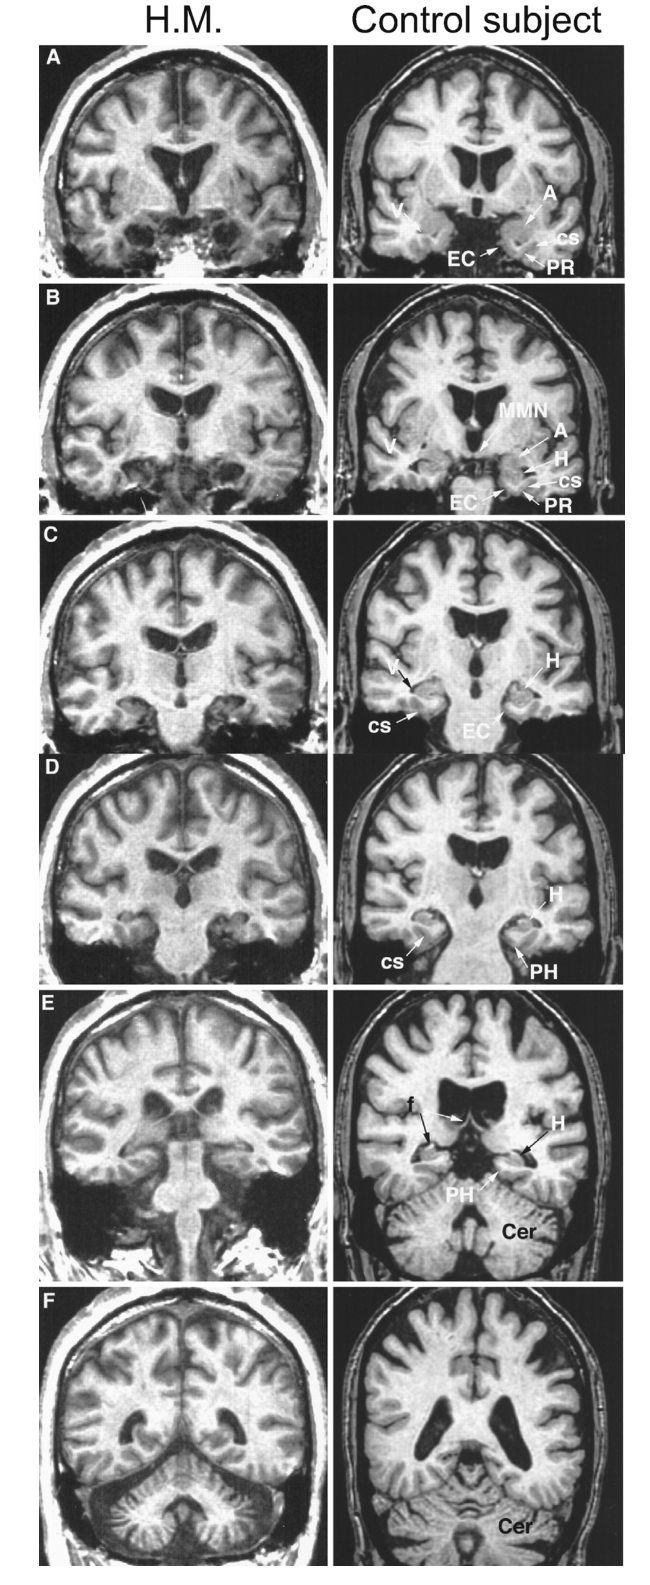
图 2 · 配联记忆任务范式
原文图注:Fig. 2. Shema of the task for pair-association memory. In the task, subjects learn the pairing of visual stimuli (e.g., stimulus 1 and stimulus 1′). In each trial, following the presentation of a fixation point, a cue stimulus (one of the 24 visual stimuli) is presented. After a delay interval, two choice stimuli are presented, one of which is the paired associate of the presented cue stimulus, and the other is a distractor. Subjects are required to correctly select the paired associate. This task, with slight modifications, was used in the studies referenced in Figs. 3–5.
任务示意图展示配联记忆实验的经典时序:中央注视点呈现后呈现线索刺激(24 种视觉刺激之一),经设定的延迟间隔后呈现两个选择刺激(目标配对物与干扰项),被试需正确挑选出与线索关联的目标项。该范式将“线索感知”与“延迟期内部记忆检索”在时间线上解耦,构成本文图 3 至图 5 各项神经生理与功能成像实验的共有行为学范式。
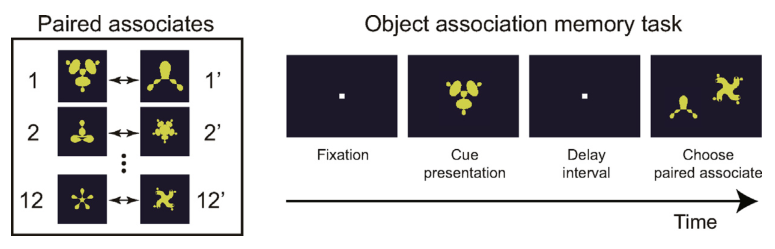
图 3 · 新近 vs 远程记忆提取的激活图
原文图注:Fig. 3. Activation maps for the contrast of recent versus remote trials (top) and remote versus recent trials (bottom) in the pair-association memory task. Significant activation in the right hippocampal region (top, right) and the left anterior temporal region (bottom, left) are indicated by green arrows. Adapted from Yamashita et al. (2009).
上图展示配联记忆任务中全脑激活差异图谱:上排“新近 > 远程”对比显示右侧海马区域显著激活(绿箭头标出);下排“远程 > 新近”对比显示左侧前颞叶皮层显著激活。两组激活对比表明长时记忆巩固存在明确的时间梯度,海马在初期检索中发挥主导作用,而巩固后的远程记忆依赖前颞叶皮层网络的表征支撑(引自 Yamashita 等 2009)。
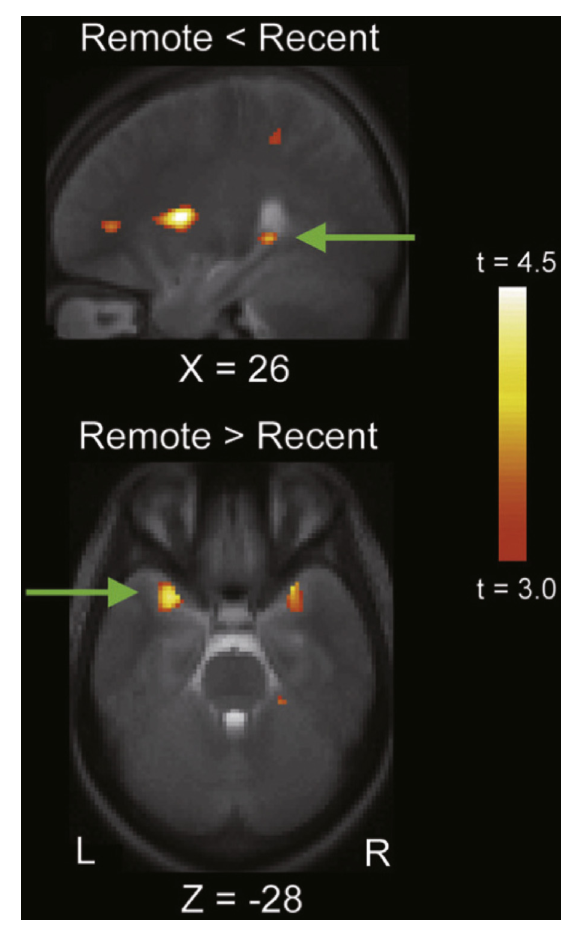
图 4 · A36 跨层记录:线索编码与目标编码的分层转换
原文图注:Fig. 4. Distinct dynamics of cue- and target-stimulus coding across layers. (A) Nissl-stained section of A36 showing the six-layered structure. (B and C) Time courses of the (B) cue-holding index and (C) pair-recall index for all the stimulus-selective neurons in each layer. (D) Plausible laminar module cascade for cued recall of visual objects. In the circuit, L5 neurons implement the coding of both cue and target information during retrieval and thus represent the relevant "pair" of objects, whereas a subset of L6 neurons implement the more exclusive coding of the retrieved target and thus most unambiguously represent the behaviorally relevant sought target.
(A) 为 A36 区域的 Nissl 染色六层皮层结构切面;(B) 与 (C) 分别呈现各皮层深度的线索维持指数与配对回忆指数随时间的动态演进,证实表征转换在时程上由深层 L5 启动并在 L6 最终定型;(D) 展示皮层微回路级联模型:L5 神经元在延迟期同时保留线索与目标信息(编码整体配对),而 L6 特异神经元子集纯化表征被检索的目标项并与局部场电位保持紧密相干,构成远端输出的回路基础。
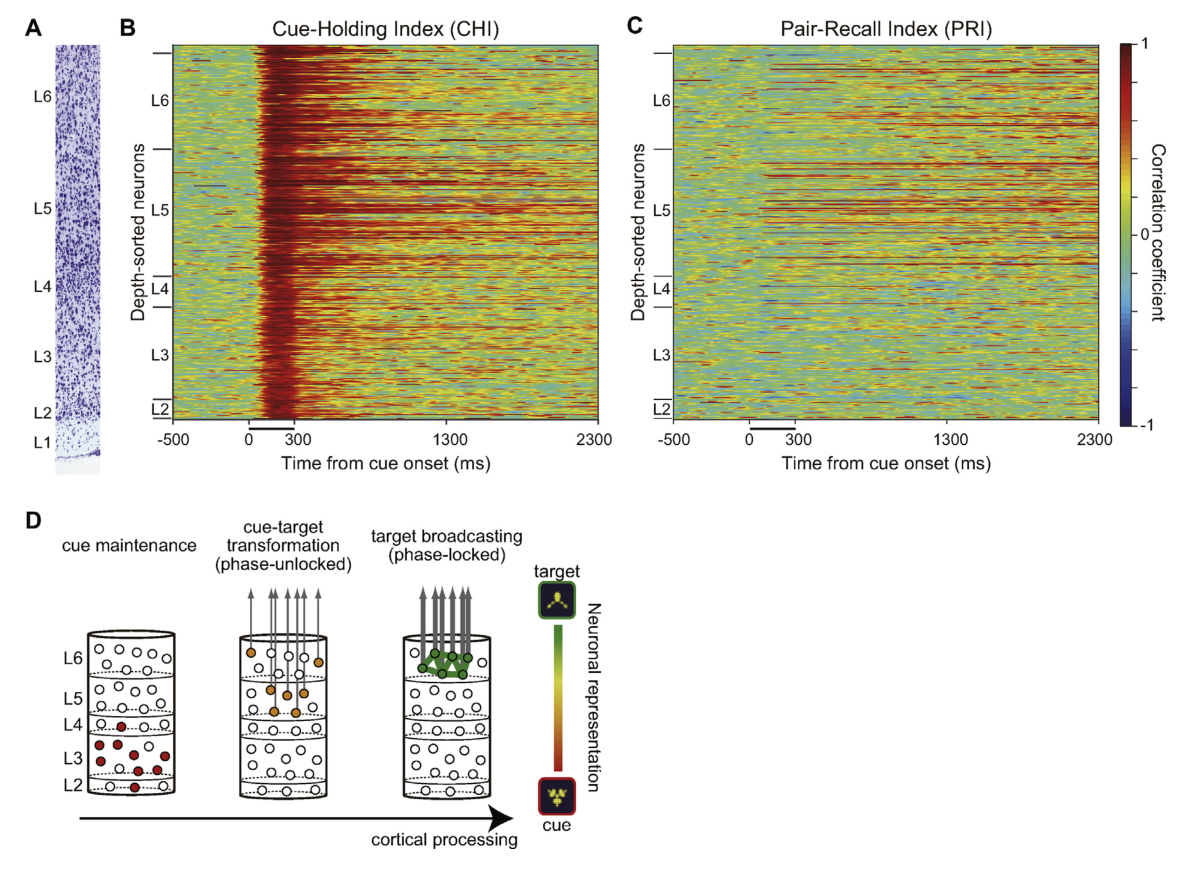
图 5 · A36 与 TE 之间的跨区间信号流
原文图注:Fig. 5. Cortical circuits for the retrieval of visual long-term memory in the temporal cortex. (A) An example of inter-area coherence between A36 and TE. (A, left) Nissl-stained histological section and current source density profile. (A, right) Depth profile of inter-area coherence between A36 single unit activity and TE local field potential. Recording depth relative to the granular layer (Gr) is shown on the right side. IG, infragranular; SG, supragranular. (B) Summary of the inter-area signals for memory retrieval between A36 and TE. Most neurons in A36 depict coherent activity with TE LFP either in the infragranular or supragranular layer, but not in the granular layer. Note that this functional signal flow appears to match the anatomical projections of feedback signals; the cortical inter-area feedback projection is known to target mainly the infragranular or supragranular layers, whereas feedforward projections mainly target the granular layer.
(A) 深度剖面图显示 A36 单细胞放电与 TE 各层 LFP 的跨区相干分布:相干性主要出现于 TE 的颗粒上层(SG)与颗粒下层(IG),而在颗粒层(Gr)降至基线。(B) 示意图总结 A36 向 TE 发送的两组功能反馈投射路径,与皮层反馈投射终结于非颗粒层的经典解剖构筑相一致。该图表明自上而下的记忆反馈通过低频相干由 A36 传入 TE 颗粒下层,并进而调节颗粒上层局部环路,其耦合强度直接与行为提取的正确率挂钩。
讨论
在总结部分,作者将上述发现归纳为三个相互关联的组织原则:神经元集群的通信频段、皮层分层结构特异性、以及前馈与反馈信号的方向分离。解剖空间距离是影响振荡频段的关键因素:鼻周皮层内部相邻的记忆神经元主要依托 gamma 频段进行局域定向传递(Hirabayashi 等 2013, 2014);额顶网络的工作记忆维持依赖 12–22 Hz 的 beta 频段相干(Salazar 等 2012);而 A36 向下位视觉区 TE 传递的长时记忆反馈主要以 beta 频段相干为载体(Takeda 等 2015)。跨频段交互则通过相位-幅度耦合(PAC,即低频振荡的相位调制高频能量振幅)实现协调——早期视皮层已有深层 alpha 相位调节浅层 gamma 能量的实证证据(Spaak 等 2012),作者推测类似机制亦调控内侧颞叶的记忆输出。结合分层解剖学中前馈投射终止于第 IV 颗粒层、反馈投射避开第 IV 层的特性,作者提出假说:长程前馈通信可能由高频相干介导,而长程自上而下反馈主要依赖低频相干驱动。
综述指出了当前认知框架中的未决问题:颞叶前馈信号的主导振荡频段仍有待确定;前馈与反馈信号在皮层各层微回路中的交汇机制仍需亚微米级电生理或双光子成像进一步解析。此外,当前实验手段难以同时兼顾全脑广度覆盖与微秒级单细胞分辨率,记忆形成是伴随全脑大尺度网络的拓扑重构还是局限于局部突触微调,仍有待未来多尺度同步记录技术的发展。
一句话总结
本综述将频率相干视作多尺度神经回路的通信机制:局部神经元集群借助 gamma 频段开展快速密集传递,远距离皮层反馈依托 beta/theta 频段实现长程下行调制,并通过皮层各层的特异分工与跨频耦合实现记忆表征由线索向目标物的高精度提取。