这篇文章用选择性切除猕猴下颞叶两个相邻区域 TEO 和 TE 的方式,检验"腹侧视觉流是严格串行逐级传递"的假说。结果干净利落:单独切除 TEO 对快速视觉再认毫无可测影响,单独切除 TE 造成严重损害,而两区一起切除也不比单独切 TE 更差。这说明面向行为的图像级视觉信息可以绕过 TEO 直达 TE,腹侧流的经典"逐级汇聚"图景需要修正——这正是它值得读的理由。
研究背景
灵长类的物体身份感知依赖腹侧视觉流(ventral visual stream),即从初级视皮层一路延伸到下颞叶皮层(inferior temporal cortex, IT)的一串相互连接的皮层区域。IT 在细胞结构学上分为尾侧的 TEO 与嘴侧的 TE(Von Bonin and Bailey 1947)。流行的模型把它描绘成层级化的"特征组合"通路——每一级代表更复杂的图像元素组合,最终在 IT 前部形成完整连贯图像的表征;这类模型(包括与深度网络的类比)强调相邻区域之间的串行前馈加工。但解剖学研究早已显示,这条通路里存在跨级绕行的连接和向前级区域的反馈连接(Distler et al. 1993; Kravitz et al. 2011),此前关于视觉辨别和物体变换的行为学研究也反对"相邻区域间严格串行传递"的图景。问题于是变成:行为相关的视觉信息传播,究竟是不是人们有时假定的那种严格顺序加工?
作者团队此前的研究恰好埋下伏笔。同一队列的猴子做过基于视觉相似性的类别化任务,结果类别判断主要被 TEO+TE 联合切除所损害,单切两个区各自只有轻度缺损(Setogawa et al. 2021);而位于 TE 前内侧、被认为更"下游"的嗅周皮层(perirhinal cortex)则与这类基于外观的类别化无关(Eldridge et al. 2018)。于是留下的问题是:这种"联合切除才有大效应"的现象,是腹侧流加工的普遍规律,还是类别化这一特定任务的特殊要求?换一个任务——快速再认记忆——单切 TEO 或单切 TE 会是什么表现,这直接检验两区是否可当作一个功能整体来处理。
研究思路
作者的总体策略是绕开连接组或计算模型的争论,用"损毁谁、什么任务受影响"的消融比较直接逼出功能分工。既然同一批猴子已做过类别化任务,现在用同样的三组损毁(TEO 单切、TE 单切、TEO+TE 联合切除)再做再认任务,就能把两个任务的结果并列对照。逻辑链是:若腹侧流严格串行,切 TEO 会"去传入"TE(de-afferent),其损害应等于或大于切 TE 本身;若 TEO 与 TE 是一个均匀的"IT 计算模块",则切任何一个都应造成按组织量大致成比例的部分缺损。两种预测若都被否证,就说明信息可以不走 TEO 到达 TE,且两区功能上各有分工。任务选择串行再认(serial recognition)——判断一幅图是首次还是第二次出现,间隔可在训练中逐步拉大——因为这类单次曝光式记忆测量对图像级细节敏感,适合追问"TE 需要多精细的信息"。
方法
被试为 11 只成年猕猴(6–12 岁):3 只未手术对照(P、E、Tc),3 只双侧切除 TE(K、Gt、T),2 只双侧切除 TEO(Y、S),3 只 TEO+TE 联合切除(G、L、M)。损毁为吸引器切除(aspiration lesion),边界按沟回坐标定义(如 TEO 以上枕沟切线到其前 1 cm 平行线、上颞沟底到颞枕沟底之间为界),术后恢复 14 天。测试在暗室中进行:猴子坐灵长类椅,LCD 显示器(40°×30° 视野角,距离 57 cm)上呈现图像(10°×10°),背景为静态白噪声,猴子以压杆/释杆应答。图库共 5800 张彩色自然图片(多为自然场景中的动物),不做亮度对比归一化。
串行再认任务的规则:试验由猴子自行起始,图像与红色提示同步出现 1–3 秒,此时释放杆即跳过该试验;坚持到提示变绿后在 0.2–1 秒内释放才算应答——若图像为首次呈现,该应答招致 6–12 秒超时;若为第二次呈现,则得到液体奖励。超时时长逐日校准,把"报第二次"的反应偏向压在中性约 ±20% 以内。每节含 200 张图各呈现两次共 400 试验。改为:训练从 {0}(AABBCC)开始,经 {1}(ABAB)、{1,2}、{0,1,2,4}、{0,1,2,4,8,16},直到最难水平 {0,1,2,4,8,16,32,64,128}。,即两次呈现之间最多隔 128 张其他图;进阶标准为单节总正确率 ≥75%,若 10 节内不能达标且表现平台化也推进。分析上,稳定表现期定义为每日平滑改善斜率 ≤1.5%(5 天滑动窗口线性回归求斜率)之后的前 10 节;总体正确率用广义线性混合效应模型(binomial-logit,组别为固定效应,猴子随机效应嵌套于组)比较;间隔分辨力用信号检测论(signal detection theory)的 d'(Z(命中率)−Z(虚报率),首现为噪声、次现为信号)衡量,并按每个 d' 的标准误纳入贝叶斯多层模型(Bayesian multilevel model),通过后验分布比较组间差异,组间差异后验概率 ≥95% 视为强证据。
主要结果
- 规则学习各组无差:前四个训练阶段(间隔最多 4 张图)各组达到 75% 正确所需节数无组间差异(单侧秩和检验 P>0.05),说明所有组都学会了区分首次/第二次呈现。
- 最难水平上 TE 组与 TE+TEO 组学习显著变慢:进入含 128 间隔的最难水平后,对照组与 TEO 切除组 3 天内达标,而 TE 与 TE+TEO 组中 2 只超过 10 天才达标,另有 4 只经 3–8 周额外训练仍未达标(Fig. 3)。
- 稳定期总体正确率:TE 与 TE+TEO 显著受损,TEO 无恙:以 10 节稳定表现的总正确率做 GLM 比较,TE 组 P=0.00031、TE+TEO 组 P=0.0013(均显著劣于对照),TEO 组与对照无法区分(P=0.68)(Fig. 4A)。
- 按间隔分解同样支持上述结论:各组均为间隔越短 d' 越高,且所有猴子在所有间隔上均高于机会水平;贝叶斯模型给出 P(对照>TE)=99%、P(对照>TE+TEO)=98%、P(对照>TEO)=37%。除最长间隔(128)外,TE 与 TE+TEO 组在每个间隔都弱于对照;而 TE+TEO 组并不比 TE 组更差(P(TE+TEO<TE) 各间隔最高仅 0.53)(Fig. 4B、Table 1)。
- 反应偏向不是混淆因素:TE/TE+TEO 组在最难水平确实表现出强烈的"报第二次"偏向(高虚报率),但该偏向出现于训练后期,作者判断它是再认困难的后果而非原因;且 d' 对反应偏向不敏感,组间统计不受影响。
图注解读
图 1 · 任务与刺激概览
原文图注:Fig. 1. Methods and serial recognition task. A) Locations of cytoarchitectonic regions TE and TEO on the lateral surface of the macaque brain. Sts, superior temporal sulcus; ios, inferior occipital sulcus; amt, anterior middle temporal sulcus; pmt, posterior middle temporal sulcus; ots, occipito-temporal sulcus. Compass rose: D, dorsal; V, ventral; A, anterior; P, posterior. B) Examples of images used (shown without an overlaid cue). C) Structure of a single trial in the serial recognition task. Trials began with a bar touch and the outcome depended on when the monkey released the bar.
这张图是全文的地图。A 面板在猕猴脑外侧面标出 TE 与 TEO 的位置及各沟回缩写,D/V/A/P 罗盘标方向,是理解后面损毁边界的参照。B 面板展示所用自然图像的样例。C 面板是单个试验的事件时序:试验由压杆起始,结果取决于何时释杆——红期释放总是跳过该试验并进入试验间间隔,绿期释放则对首现图像导致超时、对二次呈现导致奖励,故奖励最大化策略是"首现红期释放、次现绿期释放"。把'原文图注'补全至 D/E 段(或注明节选),并图注还说明了。这张图支撑的是"方法"一节:任务规则明确无误,而损毁对照是核心自变量。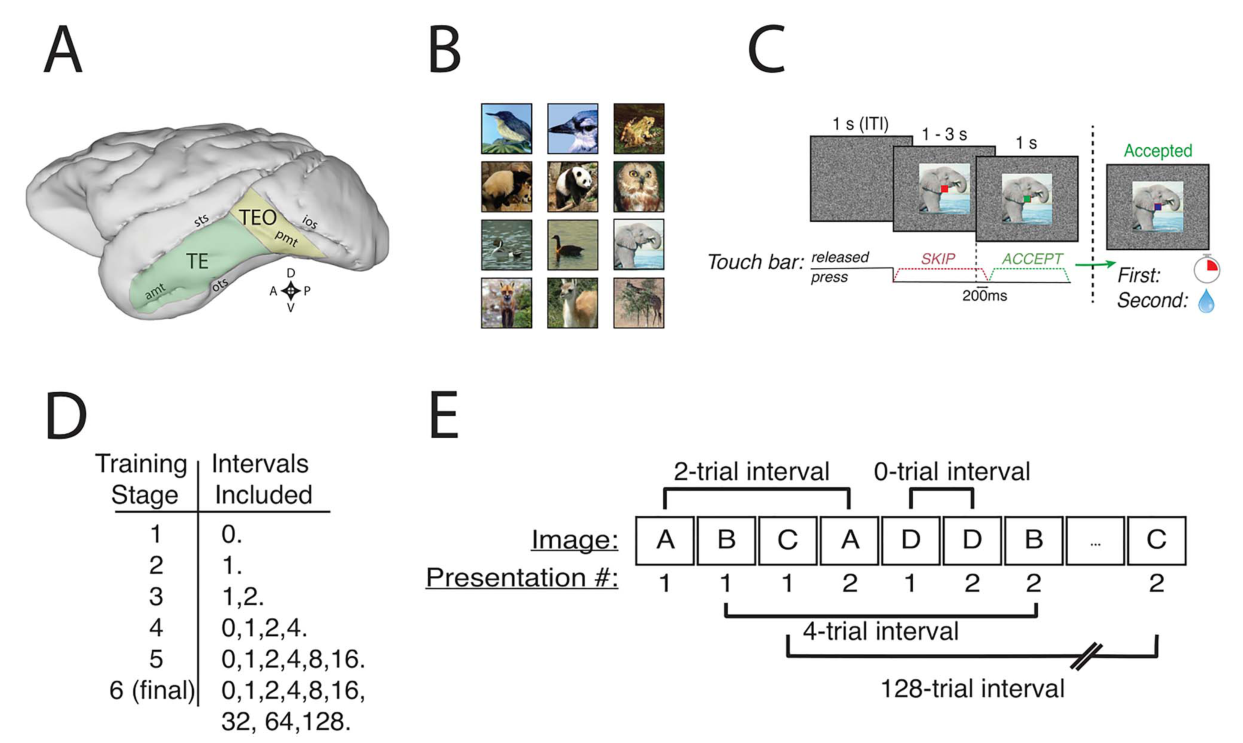
图 2 · 损毁范围重建
原文图注:Fig. 2. Lesion reconstructions. Lesion overlay maps for the respective treatment groups on a lateral view of the rhesus brain. Darker shading indicates greater within-group lesion overlap—The number of monkeys represented by each color is indicated in the legend. Green broken lines illustrate intended lesions. Detailed lesion reconstructions for individual monkeys have been published previously (Eldridge et al. 2018; Setogawa et al. 2021).
损毁研究的关键是确认"切到了什么、没切到什么"。这张重建图把各组的损毁叠加在同一侧视脑图上:颜色越深代表组内重叠的猴子数越多(图例给出各颜色对应的只数),绿色虚线标出预定的损毁边界。读者可以据此核对各组实际切除范围与设计边界的吻合程度,也顺带看出组内个体差异——讨论中承认缺损幅度有个体波动,但组间模式(TEO 无碍、TE 受损)一致。它为所有行为学结论提供了"自变量确实成立"的解剖学证据。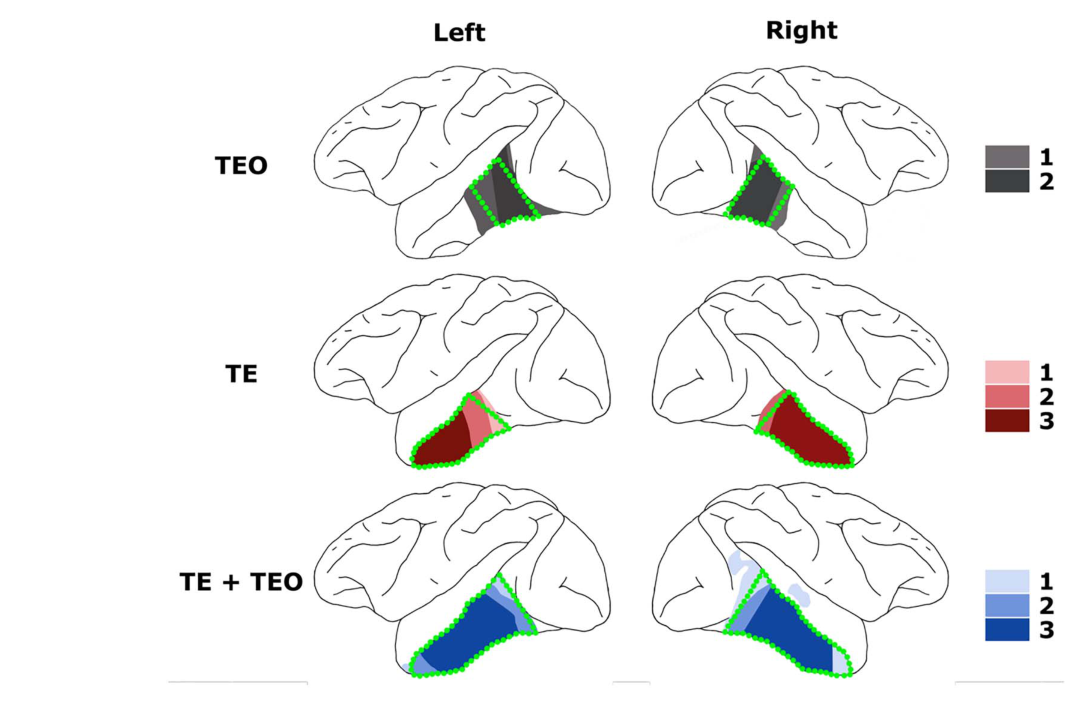
图 3 · TE 与 TE+TEO 切除拖慢学习
原文图注:Fig. 3. TE and TE+TEO removals slow task learning. Monkeys with TE and TE+TEO removals take longer than controls and monkeys with TEO removals to reach criterion (75% correct overall) on the final 3 training sets. Within groups, each monkey's data are plotted as a different shape. A solid shape indicates the monkey reached criterion on that set, whereas a hollow shape indicates the monkey's performance plateaued below criterion. Bars represent group means, including monkeys that did not reach criterion.
纵轴是达到 75% 正确标准所需节数,横轴为最后三个训练集(难度递增),组均值以条形表示,个体以不同形状的点叠加:实心形状表示该猴在此集合达标,空心形状表示表现平台化于标准之下。这张图支撑"主要结果"第 1、2 条:前几个阶段各组相近,而到最难水平,TE 与 TE+TEO 组要么明显拖后、要么干脆到不了标准,对照组与 TEO 组则几乎立即学会——把"规则理解"与"记忆容量"两类困难分开了。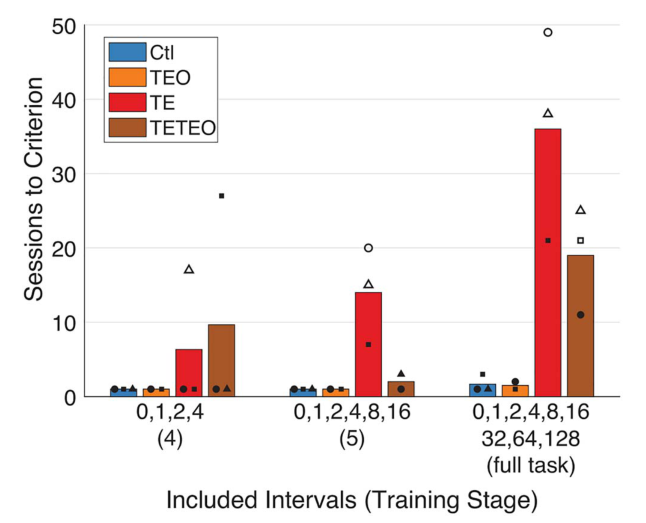
图 4 · 稳定期再认表现与 d'–间隔曲线
原文图注:Fig. 4. Monkeys with TE and TE+TEO removals have impaired recognition relative to controls and those with TEO removals. A) Overall fraction correct trials for the 10 sessions of stable performance on the hardest difficulty level of the task. Bars indicate mean and 95% confidence intervals from GLM. Points indicate overall percent correct for individual sessions, different shapes within each group correspond to individual subjects (matched with Supplemental Fig. 4-1). B) Group-mean d' as a function of interval. Bars indicate median and 68% confidence intervals (analogous to mean and SEM) from the Bayesian multilevel model. Asterisks indicate strong evidence for d' values differing from control values (strength of evidence > 95%, see Methods).
这是全文核心结果图。A 面板是最难水平 10 节稳定表现的总正确率:条形为 GLM 均值及 95% 置信区间,散点为各节成绩、形状对应个体;TE 与 TE+TEO 组明显低于对照,TEO 组与对照重合。B 面板把分辨力 d' 画成间隔的函数(横轴为 0–128 的间隔,纵轴为组均值 d'),条形为贝叶斯多层模型给出的中位数与 68% 置信区间,星号标示与对照差异达强证据(>95% 后验概率)的间隔。曲线整体随间隔上升而下降(记忆随时间衰减),但关键在于组间关系:TE、TE+TEO 两组除最长间隔外全面受抑,TEO 组与对照重合,且 TE+TEO 不劣于 TE 单切。它直接支撑"主要结果"第 3、4 条,也是"TE 必需、TEO 非必需"结论的定量依据。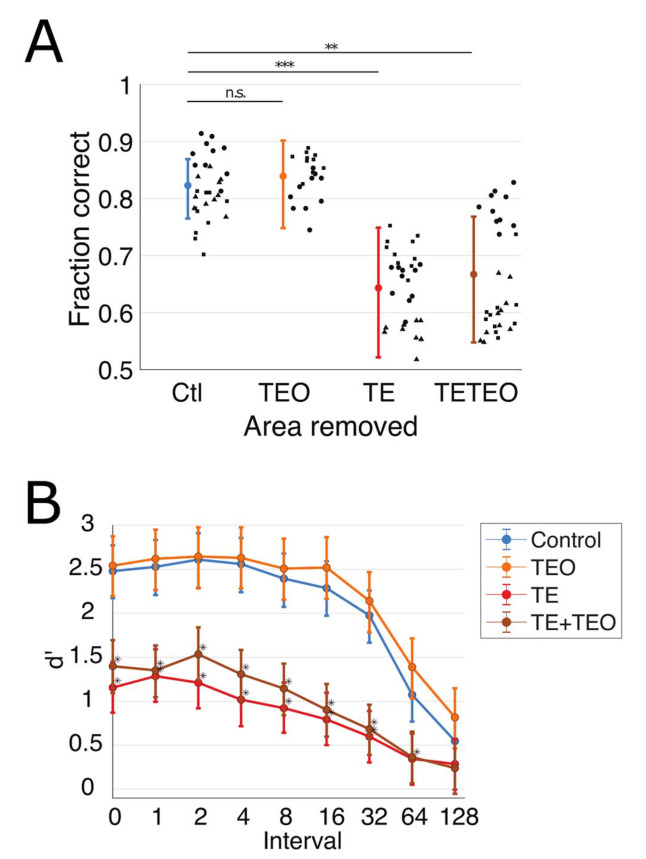
讨论
作者的论证方式是把三种假说的预测与结果对撞:严格串行假说预测"切 TEO 的损害 ≥ 切 TE";均匀模块假说预测"切任一区都造成按组织量成比例的部分损害";而实际观察到的是"切 TEO 无效应、切 TE(单独或联合)严重受损且联合不加重"。据此确认 TE 是快速视觉再认所必需,且图像级的、足够高分辨率的视觉信息可经 TEO 以外的通路到达 TE。与文献的对照同样耐读:TE 切除后出现物体级再认障碍与 Gross(1972)、Rolls(1977)、Buffalo(1999)等经典结果一致;但"TEO 切除无碍"与 Weiskrantz & Saunders(1984)、Spiegler & Mishkin(1981 的 DNMS 研究)报告的部分障碍相冲突,而与 Kikuchi & Iwai(1980)的视觉辨别无碍结果、以及 Buffalo(2005)"TE 神经元在无干扰物时于 TEO 切除后仍保持选择性"的记录结果一致。作者推测冲突可能源于那些研究用少量实体物体、本研究用屏幕上大量图像等设计差异。
最有分量的对照是作者自己的前作:同一批猴子做基于感知相似性的类别化时,只有 TEO+TE 联合切除才出现大缺损,仿佛两区可互相代偿、如一个计算模块(Setogawa et al. 2021);而本篇的再认任务给出完全相反的分工模式。两文并置,作者得出 TE 与 TEO 各有功能特化、不能普遍当作一个整体处理的结论。至于信息经哪条通路抵达 TE,作者明确说无法确定——前向绕行连接(首推 V4→TE 的绕行,Desimone et al. 1980; Ungerleider et al. 2008)与来自其他皮层或皮层下位点的反馈都是候选。局限方面,作者讨论了切除体积不对称(TE 是更大的细胞结构区)这一替代解释,但指出组内没有一致的"损毁量—缺损程度"关系,且所有 TE 切除猴都差于全部对照,因此认为功能分离是最简洁的解释;另外图像特征相似度未做参数化控制,再认判断未必发生在纯"物体"层面。
一句话总结
在我看来,这篇论文的价值不在"又一个损毁实验",而在它用一个朴素的行为学事实扳了一下流行模型:TE 是再认的必需件,TEO 可以整块缺席。同一队列在两个任务上给出相反的分工,提示腹侧流的组织方式是任务依存的;至于信息究竟经哪条旁路(V4 绕行还是反馈)抵达 TE,作者自己承认本文没有回答,这是留给后续记录与追踪研究的明确空白——以上判断是我的理解。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A, B, C, D] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[A] - Fig4: 提取质量
good,对齐度full,识别面板[A, B]
关键事实与局限性声明
- 补充要点: 刺激呈现顺序的组间不对称:TEO 组与 TE+TEO 组每日随机打乱间隔顺序,而对照组与 TE 组对每个间隔集复用同一固定顺序(作者称无证据表明这带来优势)。这是一个潜在混淆/不对称设计,MD 未提及。
- 补充要点: 猴子未被要求注视图像(Monkeys were not required to fixate),对视觉研究的方法学完整性值得一句交代。
- 补充要点: 个体变异的具体形态:TE+TEO 组 3 只中有 2 只远差于对照,但第 3 只的表现优于其中 1 只对照猴;MD 只笼统称'个体波动',未给出这个对'全或无'结论有软化作用的细节。
- 补充要点: 训练备注中的例外(Monkey K 因严重反应偏向从头重训、Monkey M 跳过 {0,1,2,4,8,16} 集、TEO 组两只跳过 {1} 集)——可一句话概括,以支撑'各组学会规则'结论的稳健性讨论。