一句话定位:这是一篇理论驱动的综述——作者把分散在单细胞电生理、损毁与 fMRI 文献里的证据拼成一个可检验的模型:视觉工作记忆(working memory, WM)的维持靠下颞皮层物体表征持续激活,而前额叶与内侧颞叶从上游提供自上而下的反馈。读完你会明白为什么"存储"不等于"一个脑区的事",以及工作记忆的早期几秒钟如何悄悄决定长时记忆能否形成。
研究背景
工作记忆研究曾长期以前额叶为中心,延迟反应中的行为障碍和持续放电使它成为解释短时保持的主要候选。随着证据积累,视觉物体记忆却显示出更分布式的面貌:下颞皮层携带对象选择性信息,内侧颞叶在某些短延迟任务中也不可忽略,前额叶还参与超出单纯保持的选择与控制。与此同时,各研究并不完全一致:干扰刺激有时能清除下颞样本选择性活动,人类影像中的持续反应也会随取样和分析方式改变。如果把整个延迟阶段或整个下颞区域视为单一过程,就难以解释这些阳性和阴性结果为何并存。
本文面对的核心缺口,是如何将表征层级、控制需求和记忆形成的时间过程放在一个框架内。视觉知觉本身包含局部特征、较稳定的物体属性及整体对象等层次,工作记忆可能同样在多个层次维持信息;某一层的活动受干扰,不代表所有可支持行为的信息同时消失。另一个问题涉及新异物体:没有现成的完整表征可供调用时,维持可能需要主动组织刚获得的视觉特征,而不仅是延长知觉反应。这样,延迟开头用于建立或重建对象的过程,就可能不同于后段的持续保持,并与该对象日后能否形成长时记忆发生联系。传统的短时与长时系统二分,很难直接表达这种时间上的交叠。
这篇综述据此提出视觉工作记忆的多层维持与建构性观点,整合下颞、鼻周和海马的表征作用,以及前额叶对项目和关系的选择作用。它特别利用后续再认测验,把工作记忆期间的活动按后来记住或忘记来比较,讨论延迟早期海马及背外侧前额叶活动与长时记忆形成的联系;联想任务则用于说明已有知识如何重新进入当前维持状态。这使文章不只回答“哪里保持”,还追问“保持最初几秒完成了什么”。不过,后续记忆相关并不独自证明某脑区引发了编码成功,行为干扰也不能替代区域特异的因果检验;综述中不同材料、物种和测量尺度的证据仍须分别理解。多层表征与反馈协作因而是整合性模型,不能被写成所有物体记忆任务均已验证的统一机制。
研究思路
作者的做法是把"神经解剖回路 + 记忆内容"两条线拧在一起。一方面按连接关系确定网络成员:IT 是物体表征的所在地,鼻周皮层快速形成新物体表征(它接受基底核大量胆碱能输入,利于可塑性),海马专门编码场景中物体间的关系,PFC 则不存内容而是做"选择"——增强或抑制表征的激活。另一方面,作者先立两条基于视知觉理论的原则:其一,视觉 WM 在皮层层级的多个水平上并存维持(因此在一处引出零效应不代表别的水平也不参与,对损毁或单细胞的阴性结果要格外小心);其二,视觉 WM 与知觉一样是建构性的——被试要靠自上而下的知识去"重建"刚见过的图像,所以延迟期开头的几秒钟和后面的时段在机制上应当解离。
这套思路的一大妙处是模型给出了一条能被 fMRI 直接检验的预言:既然重建新异图像需要海马和背外侧前额叶的参与,那么延迟期早期这些区域的活动就应该与该物体日后能否进入长时记忆挂钩——而 WM 决策本身不管物体是否被记住都照常完成,靠的是另一套系统。下颞和低级视觉区则应当不管记住与否都持续激活。
方法
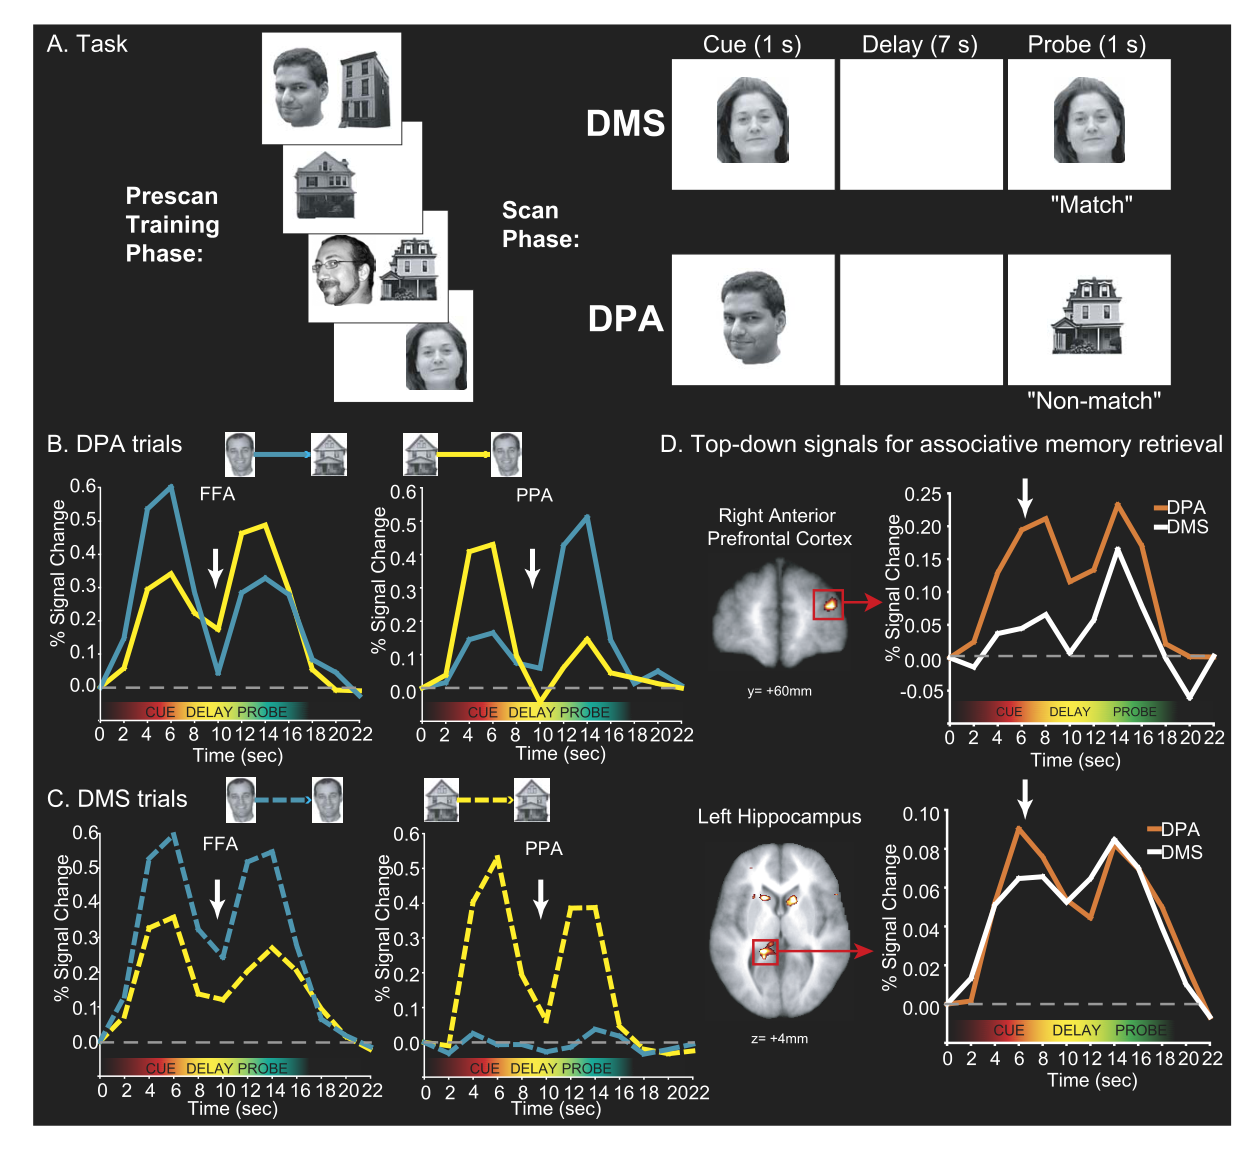
文中综合了三类证据来源,其中至少两项关键实验值得展开。研究一(Fig. 3,Ranganath 等 2005):事件相关 fMRI,被试在延迟匹配任务中主动维持一个新异三维物体以做匹配-不匹配判断;扫描结束后立刻做意外长时记忆再认测验(旧物体与从未见过的配对干扰物),把延迟期活动按"后来记住/后来忘记"分别平均。研究二(Fig. 4,Ranganath 等 2004a):被试先学习面孔、房子及面孔-房子配对,然后完成两种任务——DMS(维持刚才看过的物体)与延迟配对联想任务 DPA(看到面孔线索要回忆其配对房子并维持);另做一轮定位扫描找每个被试的梭状回面孔区(fusiform face area, FFA)与海马旁回位置区(parahippocampal place area, PPA),再以这两个类别特异亚区为感兴趣区,按延迟期内活跃在记忆里的是面孔还是房子来分析。前述单细胞数字(38%、71%、22%)来自 Nakamura 与 Kubota 对猴腹侧颞叶各区延迟期激活细胞比例的统计,作者转述并加以比较。其余引用研究的设计文中均已简述,具体刺激与分析参数文中未详述。
主要结果
- IT 的持续激活是视觉 WM 维持的"底座":猴 IT 神经元在短延迟期间呈现物体选择性持续放电;损毁或失活 IT 严重损害视觉物体特征的短时保持。人 fMRI 用个体化定位的 FFA/PPA 后显出一致的模式——FFA 在维持面孔时持续激活,且激活随维持的面孔数量线性上升;即使知觉输入相同,任务相关(而非无关)的面孔在 FFA、房子在 PPA 的编码与延迟期活动也更强(支持"持续激活下颞物体表征"这条主线)。
- 内侧颞叶皮层在"抗干扰"和"新异材料"上补 IT 之短:鼻周、内嗅皮层内具有延迟期维持活动的细胞比例(38%、71%)显著高于 TE(22%);TE 的取样选择性延迟活动被干扰物清除,内嗅皮层的却纹丝不动;而严格的新物体短延迟再认(7–10 s)在猴和人广泛内侧颞叶损伤后都会受损,且海马/鼻周活动对新异刺激的增强大于熟悉刺激。海马在 WM 延迟期间与 IT 的功能连接增强(Gazzaley 等 2004)——这正是模型要求的反馈通路。
- PFC 的分工按"选择层级"而非"内容通道"划分:尾侧/腹侧 PFC 负责选择具体项目(物体、位置、词语),激活地形随被选内容落在对应后部感觉拓扑(视觉非言语在右 BA 44/47,语义在左 BA 45/47 等),与后部皮层对各项特征的表征互为平行;嘴侧/背侧 PFC(BA 9, 10, 46)则在需要基于抽象关系进行推理、分组、抑制旧联想或序列操作时被启动,且对内容类型不敏感。这一框架同时解释了"空间专化说""操作说"之争——空间任务只是"处理项目间空间关系"的一个特例。
- WM 延迟期早期与 LTM 形成直接挂钩(Fig. 3):无论物体后来记住与否,左侧腹侧 PFC 与枕部区域在延迟期持续激活(B);而记住的物体随后在延迟期早期出现左前海马和左侧背外侧 PFC(BA 9)的显著更强活动,差异在 8–10 秒后最大、延迟后期消失;枕-颞区域的后续记忆效应则全程稳健。随后的行为实验证实因果方向:干扰延迟期早期显著损害 LTM,干扰后期无效。
- 通过联想"回忆"而非"知觉"维持时,下颞亚区活动跟内容走(Fig. 4):DPA 试次中 FFA 的延迟期活动在看房想脸、PPA 在看脸想房时反而更强——即维持的是回忆出的内容而非线索本身;而前部 PFC(BA 10)与海马在 DPA 线索期选择性增强,提示它们负责"按既有联结把正确表征调进 WM",尾侧/腹侧 PFC 则在两种任务延迟期持续活动、支持维持本身。
图注解读
图 1 · 视觉 WM 网络的脑区与连接底片
原文图注:Fig. 1. Brain regions implicated in visual WM processing: (A) At left, locations of inferior temporal (red) and medial temporal (yellow) neocortical areas and the hippocampus (blue) are shown. At right, relative locations of rostral/dorsal (BA 9, 10, and 46, shown in magenta) and caudal/ventral prefrontal regions (BA 44, 45, and 47/12, shown in green) are shown. (B) Neuroanatomical connections between these regions are schematically depicted.
这是全文模型的"地图页",不是数据图。左半部把三组角色摆上脑面:红色为下颞皮层、黄色为内侧颞叶新皮层(鼻周、内嗅、海马旁回等区)、蓝色为海马本体;右半部给出 PFC 的两个功能分区——洋红为嘴侧/背侧(BA 9, 10, 46)、绿色为尾侧/腹侧(BA 44, 45, 47/12)。B 部示意这几个区域之间的解剖连接,为"前额叶与内侧颞叶自上而下反馈到 IT"的模型主张提供解剖底座。读图时留意连接是示意框图而非真实示踪数据,定位精度到 Brodmann 区级别。
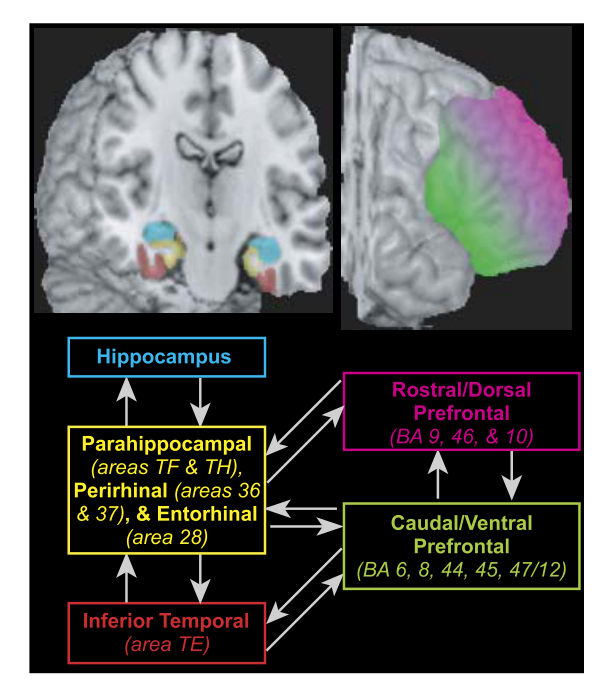
图 2 · 猴与人前额叶同源区的错位对齐
原文图注:Fig. 2. Differences in relative locations of prefrontal regions between the macaque and human brain. (A) Cytoarchitectonic analyses of the monkey cortex have led many researchers to postulate functional differences between regions in and around the sulcus principalis (BA 9 and 46), shown in magenta, and regions in and around the inferior convexity (BA 44, 45, and 47/12), shown in green. A dashed line schematically illustrates the division between these areas. (B) The relative locations of homologous areas are shown for the human brain, based on published cytoarchitectonic analyses of the human PFC.
这张图解决一个跨物种比对的技术坑。猴脑上主沟(sulcus principalis)周围的 BA 9/46 与下凸面周围的 BA 44/45/47/12 在皮层表面紧挨着;人类前额叶在细胞构筑(cytoarchitecture)上同样分这两套区,但人脑整体扩张后,同源区域落入相对更嘴侧、更背侧的位置(BA 9, 10, 46 对 BA 6/8, 44, 45, 47)。读图要点:A、B 各有一条虚线示意两套区的分界,人脑版本依据已发表的细胞构筑研究绘制,但不能把猴背侧 BA 46 与人背侧 BA 46 直接等同。它埋在解释人类 fMRI 结果与猴单细胞结论如何对齐的关键处。
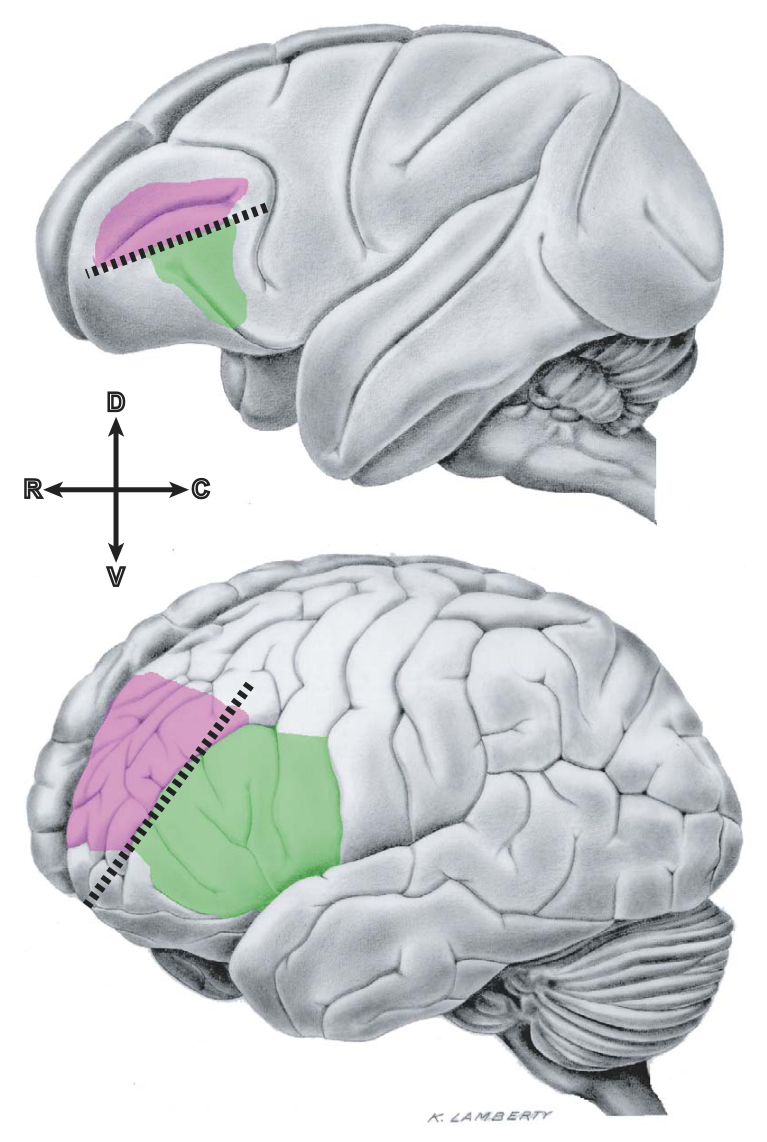
图 3 · 维持期脑活动预测长时记忆
原文图注:Fig. 3. FMRI results relating activity during WM maintenance to LTM formation. (A) On each trial of the WM task, subjects actively maintained a novel 3d object across a delay period in order to make a match–nonmatch decision. After the scan session, subjects were given a surprise LTM test and activity during the WM trials was averaged separately for subsequently remembered and forgotten objects. (B) Areas showing persistent delay period activity for both remembered and forgotten objects. Note that activity in both left ventral prefrontal and left occipital regions was quite robust throughout the memory delay. (C) Areas showing differential delay period activity for remembered and forgotten objects. During the early part of the delay period, the left hippocampus and dorsolateral PFC (BA 9) exhibited greater activity for subsequently remembered than for forgotten objects. Note the robust difference between the time courses 8–10 s following cue onset. During the late part of the delay, bilateral occipital regions exhibited subsequent memory effects. The subsequent memory effect in this region, unlike the hippocampus and dorsolateral PFC, was quite robust throughout the memory delay.
读法:A 是任务流程与后续记忆事件分析的逻辑——同一批试次按"后来是否记得"分成两组平均。B 图给出两组都有的持续激活区(左侧腹侧 PFC、枕部):曲线在整个延迟期都高,说明这些是"维持本身"的底座。C 图给出区分组:左前海马与左侧 BA 9 的曲线只在延迟期早期(约 cue 后 0–8 秒)显著分叉,8–10 秒后差异最大,随后两条曲线合拢;双侧枕区的后续记忆效应却是全程都显著。对比这两组自然是全文最有说服力的一张:记忆不是靠"维持得久",而是靠"开头那几秒有没有动用海马和 BA 9"。
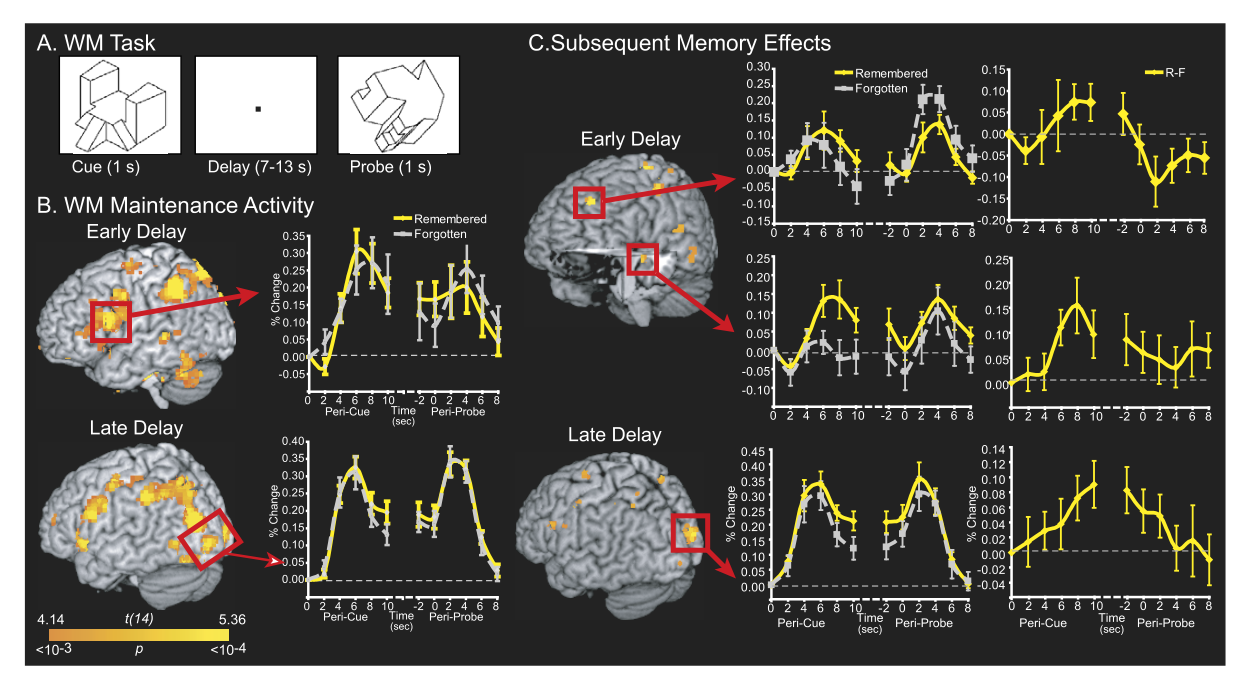
图 4 · 想出来的脸也能激活 FFA
原文图注:Fig. 4. Human brain activity during visual WM maintenance and associative memory retrieval. (A) In this event-related fMRI study, subjects were trained to learn a set of faces, houses, and face-house associations and were scanned while performing two tasks. On DMS trials, subjects were shown a previously studied face or house and required to maintain it across a delay. On DPA trials, subjects were shown a face or a house that was previously learned in a face–house pair and asked to recall and maintain its associate across a delay period. In a separate scan, tasks were performed to identify the locations of the FFA and PPA. Activity in these category-specific inferior temporal subregions was then examined during the DPA and DMS tasks separately according to whether the cue stimulus was a face or house. (B) On DPA trials, activity during the cue phase in the FFA (left) and PPA (right) was enhanced when each region's preferred stimulus was presented. However, during the delay period, activity in these regions reflected the type of information that was active in memory, rather than the previously presented cue stimulus.
读法:A 列出 DMS/DPA 双任务的时程设计。B 是全文最核心的一组数据:DPA 试次的线索期,FFA 在见到面孔线索时更强,说明定向编码仍然正常;但在延迟期,FFA 的活动要跟随"想起了哪类东西"——看到房子线索去想一张脸时,反而是 FFA 活跃。C 中 DMS 试次里线索与延迟两者都随偏好类别增强作对照。D 显示前部 PFC(BA 10)与海马在 DPA 线索期比 DMS 线索期更活跃,对应"整合线索-联结关系"的功能分工。
讨论
作者在收尾时并不把网络当成均质的大模型:维持由 IT(以及更早的 V4、可能还有 V1)里持续的表征激活实现,尾侧/腹侧 PFC 支持这种持续活动并压制干扰;而当一张复杂的新异图像必须被主动"建构"、或者必须凭借任意学得的联想关系去唤起表征时,来自内侧颞叶皮层、海马与 PFC 的自上而下反馈就是决定性的。他应对的主要"反例"是 Miller 等发现"干扰物会清掉 IT 延迟期活动"——用多层维持原则把它解释为干扰清掉的是完整连贯的物体表征,而其他层面的维持仍可幸存;结尾落在机制句上:低层特征靠尾侧/腹侧 PFC 对早期视觉区的自上而下调制维持,一旦海马和背外侧 PFC 在延迟早期被成功动员,一个可以同时支撑 WM 决策与日后长时记忆的新表征就被建起来了。局限方面,文中坦承一些引用来自未经系统发表的工作(Takashima 等的 MEG 结果标注了 unpublished),也把"维持的初始阶段到底促进再认还是回忆"留作开放问题。
一句话总结
该综述澄清了视觉工作记忆中的皮层功能分工:具体客体表征依赖后部下颞叶的感觉回路,前额叶负责自上而下的注意导向与维持控制,而内侧颞叶及海马则参与新异特征的结合与编码。研究特别强调延迟期早期神经活动的机制分化,表明工作记忆与长时记忆编码共享紧密的神经回路,维持过程本身直接构成了长时记忆巩固的神经基础。