本研究在单细胞水平记录猕猴下颞皮层(inferior temporal, IT)神经元对后向掩蔽(backward masking)物体的反应,并考察长期辨别训练的影响。行为数据显示,训练带来的辨别能力提升大多能迁移至未经训练的新物体;神经元记录显示,训练后猴 IT 神经元对后随无关掩蔽刺激的放电反应显著降低。结果提示,知觉学习对受干扰刺激辨别的改善可能不仅依赖目标表征的调谐锐化,还涉及对干扰输入抑制能力的适应性调节。
研究背景
知觉学习研究探讨的核心问题之一,在于任务规则已被熟练掌握后,针对感觉信号的重复练习为何能持续改善对微弱或受干扰刺激的辨别能力。后向视觉掩蔽为研究视觉识别的时间动态加工机制提供了实验范式:目标物体在屏幕上短暂呈现,随后紧跟一个不相关的掩蔽图案,目标与掩蔽之间的刺激起始异步(SOA)越短,物体的识别难度通常越高。既往人类功能磁共振成像(fMRI)研究表明,针对后向掩蔽物体的识别训练能够显著提升辨别准确率,并伴随腹侧物体选择性皮层在短 SOA 条件下的血氧激活信号增强。这使高级视觉通路成为视觉知觉学习的关键候选解剖位点,但宏观血流动力学信号的增强难以区分其微观神经机制:它可能源自对目标物体表征调谐的特异性锐化,也可能源自对后随干扰掩蔽输入响应的有效抑制,这两种假说在时间分辨率较低的脑成像数据中难以分离。
微电极电生理研究表明,后向掩蔽能显著截断猕猴下颞叶神经元对面孔或复杂几何物体的持续放电响应,物体选择性被阻断的具体时间点与神经元固有的反应潜伏期紧密相关。同时,视觉熟悉度与范畴分类训练研究也证实,长期的复杂客体视觉经验能够重构下颞叶神经元的选择性放电构型。然而,这两类证据尚未在受控的后向掩蔽知觉学习范式中完成交叉验证:长期识别被掩蔽物体的训练,究竟是特异性增强了目标物体的神经元放电选择性,还是改变了对随后掩蔽干扰的神经响应?学习效应的刺激范畴特异性是重要的判别标准:若辨别能力的提升严格局限于受训物体,则支持基于目标特定表征锐化的解释;若提升能够广泛迁移至未经训练的新物体,则提示神经系统可能发展出了针对掩蔽干扰、时间节奏或注意过滤机制的一般性适应策略。
本文首先对两只猕猴进行后向掩蔽物体的长期辨别训练,随后在单细胞水平记录下颞叶神经元对训练物体与未训练物体的放电活动。鉴于行为学改善呈现出高度的范畴泛化特征,研究进一步引入未接受短 SOA 掩蔽训练的对照动物,开展跨个体的电生理比较,并通过任务切换、掩蔽图形熟悉度控制及记录解剖位点三维重建等对照,排除潜在的混杂解释。该设计使目标选择性加工与干扰抑制响应得以分别评估。需要说明的是,跨动物个体的电生理对比不同于同一神经元在训练前后的纵向追踪,少数动物之间的经验累积与个体差异无法彻底排除;掩蔽反应的显著减弱提示了神经适应现象,但不能仅据此推断具体的突触传递机制,或将其确立为行为能力提升的充分必要条件。
研究思路
研究最初旨在检验人类成像文献中强调的“物体特异性知觉学习效应”(即训练收益不应迁移至未受训的新客体)。实验策略是训练两只猕猴在极短 SOA 条件下辨别一组后向掩蔽物体,随后在同一动物体内记录下颞叶神经元对训练物体与未训练物体的放电反应差异。然而行为学测试显示,两只猕猴训练获得的识别提升大部分泛化迁移到了未训练的新物体上,仅在其中一只动物中检测到了微弱的物体特异性成分。
基于此行为学发现,作者调整了实验比较框架:在评估动物体内训练物体与未训练物体差异的同时,引入未接受短 SOA 训练的对照猴,开展跨动物对比,探查与物体泛化学习相关的普遍性神经相关物。为排除一般性任务参与度的干扰,研究设置了两组互补对照:第一,让未训练短 SOA 的对照动物执行相同的掩蔽同异辨别任务(但仅接受长 SOA 训练),检验主动任务状态本身是否足以压制掩蔽放电;第二,让受训动物切换至注视点对比度同异辨别任务(此时物体与掩蔽图案在行为学上完全无关),检验掩蔽抑制是否随任务注意脱离而消失。通过细致核查电极轨迹空间重建、基线放电水平、掩蔽刺激熟悉度以及正确与错误试次的放电差异,系统排查了可能的混杂因素。
方法
实验使用 4 只幼年雄性恒河猴(Macaca mulatta)。其中 1A 与 1B 为受训动物,先掌握无掩蔽状态下的物体同异辨别任务,随后接受针对特定 10 种物体的长期后向掩蔽训练(猴 1A 经历 17 个日常训练时段、单客体累计掩蔽呈现约 5000 次;猴 1B 经历 52 个训练时段、单客体累计呈现逾 15000 次);猴 2A 与 2B 为未训练对照,初期在被动注视任务下记录。刺激集 1 包含 120 幅灰度复杂物体图像(改编自 Rossion & Pourtois 2004),刺激集 2 包含 50 幅黑白几何图形,实验中每 10 幅划分为一组;掩蔽刺激由不同半径的实心圆斑随机拼叠构成,并在实验中定期更替以防神经效应与特定掩蔽构型绑定。测试刺激最大视角为 5.4°,掩蔽图案尺寸为 7°×7°,显示器刷新率为 80 Hz,时序调整以 12.5 ms 为步长。
掩蔽同异任务时序如下:首个刺激呈现区(300 ms),目标物体短暂呈现(呈现时长即 SOA)后立即被紧随的掩蔽覆盖,中介间隔 500 ms 后呈现第二个无掩蔽对比物体(300 ms),动物通过向左或向右扫视判定两物体是否一致;记录期间物体呈现于屏幕中央,训练期间物体位置在 ±2° 范围内微小浮动。猴 1A 另完成一项注视点对比度同异辨别任务(仅比较先后出现的两个放大注视点的明度变化,平均正确率 81%),此时屏幕呈现的掩蔽与物体均与任务无关。电生理记录使用钨丝微电极经背侧径路推进至下颞叶皮层(外耳道前方 12–21 mm):在主动任务下分别从猴 1A 记录 46 个神经元、猴 1B 记录 45 个神经元;在被动注视下从猴 2A 记录 63 个、猴 2B 记录 53 个;此外从执行主动任务的猴 2A 补充记录 27 个神经元,从执行对比度任务的猴 1A 补充记录 49 个神经元。
数据分析方法:首先依据长 SOA(150 ms)条件下的刺激诱发放电率(刺激呈现后 60–260 ms 窗口扣除基线)对每组 10 个物体进行排序,界定每个神经元的最优与最弱物体;物体特异性分析针对每个神经元的固有响应潜伏期(基于泊松尖峰串模型检测,潜伏期分布在 60–180 ms,均值 99 ms)进行时间轴对齐校正;计算标准化群体时程分布图;物体选择性使用 d′ 指数与选择深度指数(DOS)量化;掩蔽神经反应取短 SOA 最弱物体条件下刺激开始后 270–370 ms 时间窗内的净放电率;行为学辨别阈值通过拟合 85% 正确率水平的累积高斯分布确定,并通过自助法(bootstrap)评估组间差异。
主要结果
- 行为学层面:训练显著提升短 SOA 条件下的辨别能力,但绝大部分表现出跨客体泛化(图 2)。两只受训动物在训练后短 SOA 条件下的辨别正确率均显著提升。其中猴 1A 对受训物体的 85% 辨别阈值显著低于未训练物体(bootstrap 检验 p<0.01),约有一半的行为改善迁移至新客体;而猴 1B 的训练效应几乎完全泛化至未训练物体,受训与未受训物体间的阈值无统计学差异。在记录期间,猴 1A 在 SOA 为 13 ms 条件下对受训与未受训物体的正确率分别为 84% 与 69%(p<0.001);猴 1B 在 SOA 为 25 ms 条件下对应正确率为 68% 与 73%(受训组未展现优势,p<0.05)。
- 物体特异性神经增强微弱且短暂,仅在单一个体中显现(图 3–5)。在短 SOA 条件下,仅在猴 1A 中检测到显著的“训练组别 × 时间窗”交互作用(p<0.005):表现为神经元放电起始后 0–50 ms 极早窗口内对受训物体的选择性高于未受训物体(归一化最优与最弱刺激差值为 0.37±0.06 对比未受训组 0.17±0.05,p<0.02;对应 d′ 分别为 1.01±0.17 与 0.46±0.11);该效应在仅分析正确试次时依然成立,但在长 SOA(150 ms)下完全消失。猴 1B 在长短 SOA 下均未检出物体特异性选择性增强,甚至呈现对未受训物体选择性略高的趋势(p=0.06)。全刺激等级分析同样显示猴 1A 存在等级 × 组别交互(p<0.005),而猴 1B 不显著(p>0.5)。
- 长期训练动物对后随掩蔽刺激的神经反应近乎完全消失(图 6–8)。在短 SOA 呈现最弱物体(以排除目标拖尾反应干扰)条件下,受训猴 1A 与 1B 的平均净掩蔽放电率仅为 1.3±0.5 与 2.1±1.1 spikes/s,91 个神经元中仅有 15 个(16%)检测到显著掩蔽反应;而在未训练对照猴 2A 与 2B 中,平均掩蔽放电高达 9.5±2.1 与 8.7±1.2 spikes/s,116 个神经元中 62 个(53%)呈现显著放电(组间差异 p<0.001,两两对比均 p<0.01)。受训猴在受训物体之后与未受训物体之后的掩蔽放电均等受到抑制(均为 1.7±0.6 spikes/s),证实该抑制效应完全不依赖于前导物体的身份;受训组与未受训组在物体本身的固有选择深度上无系统差异(DOS 分别为 0.66/0.57 对比 0.61/0.49),协方差分析控制 DOS 后掩蔽抑制效应依然高度显著(p<0.001)。
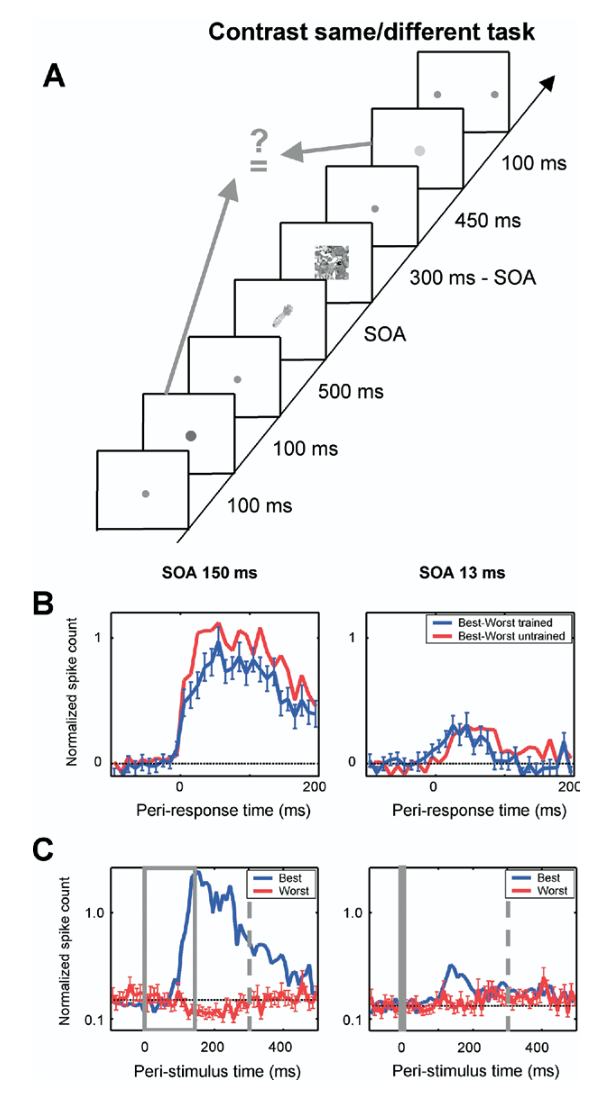
- 掩蔽反应的抑制并非简单源于任务注意力或即时视觉暴露(图 8–10,含图 9)。未接受短 SOA 训练的对照猴 2A 在执行主动掩蔽同异辨别任务时,其掩蔽诱发放电率仍维持在 11.4±2.3 spikes/s(27 个神经元中 12 个显著),与被动注视基线无差异,说明执行辨别任务本身不足以压制掩蔽反应;掩蔽图形在多日记录中的熟悉程度改变亦未降低其诱发放电(首日 7.6±1.0 对比多日 9.7±1.5 spikes/s,p=0.23);解剖记录轨迹重建(图 9)证实受训动物的记录点处于未受训动物的采样解剖范围内,且对照猴 2B 在前后、背腹及内外侧各亚区的掩蔽反应均显著强于受训动物(p 均 <0.01)。在反向对照中,受训猴 1A 切换至与物体和掩蔽均完全无关的注视点对比度辨别任务时,其下颞叶神经元的掩蔽放电仍维持在显著抑制状态(2.8±0.8 spikes/s,49 个神经元中仅 5 个显著,p<0.01),而其在前一任务中表现出的瞬态物体特异性增强在此任务中消失,呈现任务 × 训练 × 时间的三重交互(p<0.05)。
- 长期训练维持了长 SOA 下的持续性物体选择性(图 7A)。在 SOA 为 150 ms 条件下,受训猴在掩蔽刺激呈现窗口内(刺激起始后 270–470 ms)仍保持着显著的物体选择性(最优与最弱刺激放电差值达 9.8±1.7 与 8.2±1.4 spikes/s,p 均 <0.0001),而未训练动物在同窗口的选择性几乎衰减至零(0.91±0.9 与 2.5±1.1 spikes/s);但在极短 SOA 下,受训动物的持续选择性同样微弱,且在未训练动物中掩蔽反应强度与持续选择性之间未检出相关性(p>0.3),表明掩蔽抑制与持续选择性属于相对独立的两类生理机制。
图注解读
图 1 · 刺激与训练任务示意
原文图注:Fig. 1. Stimuli and training task. (A) Examples of the object images and masks. (B) The masked same/different task in which monkeys had to compare two object images.
(A) 展示实验所用的灰度物体样本与多圆斑拼叠构成的掩蔽图案;(B) 示意后向掩蔽同异辨别任务的时间逻辑:第一个物体呈现短暂时间(即 SOA)后立即被掩蔽图案替代,经历延时空屏后呈现无掩蔽的第二个对比物体,动物根据两物体是否一致执行向左或向右的扫视选择。任务明确要求动物忽略无信息的后随掩蔽并提取前导物体的几何特征,构成了评估神经元如何过滤干扰信号的实验基础。
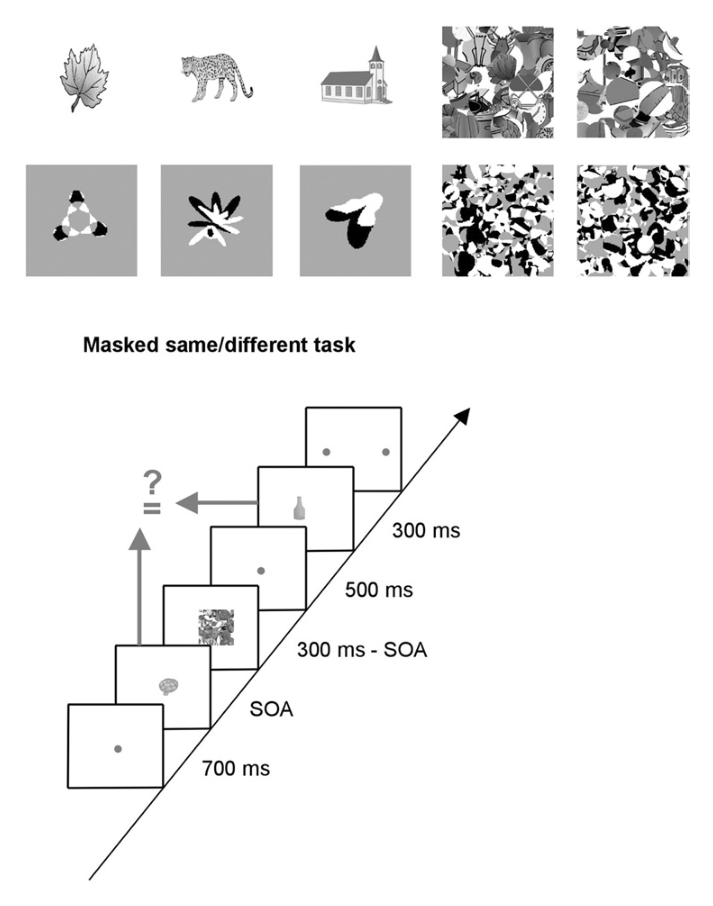
图 2 · 训练前后的行为曲线与阈值
原文图注:Fig. 2. Behavioral performance of monkeys before and after the training in the recognition of backward-masked objects. (A) Psychometric curve before training (filled symbols) and after training (open symbols) for two groups of 10 objects (trained and untrained). (B) Performance as a function of training session and SOA. (C) Eighty-five percent thresholds pre- and post-training for two groups of 10 objects, of which one was trained in-between (pre-T and post-T) and one not (pre-U and post-U). Error bars indicate 95% confidence intervals.
(A) 绘制两只猴在训练前后针对受训组与未受训组物体的心理物理测量曲线(正确率随 SOA 变化关系);(B) 展示辨别正确率随训练进程与 SOA 参数的动态提升历程;(C) 给出训练前后受训物体(pre-T 与 post-T)及未受训物体(pre-U 与 post-U)的 85% 正确率时间阈值(误差棒表示 95% 置信区间)。对比显示,猴 1A 在受训客体上的阈值下降幅度显著大于未受训客体,而猴 1B 在两组客体上呈现平行的阈值下降,直观反映了知觉学习效应跨样例泛化的个体差异。
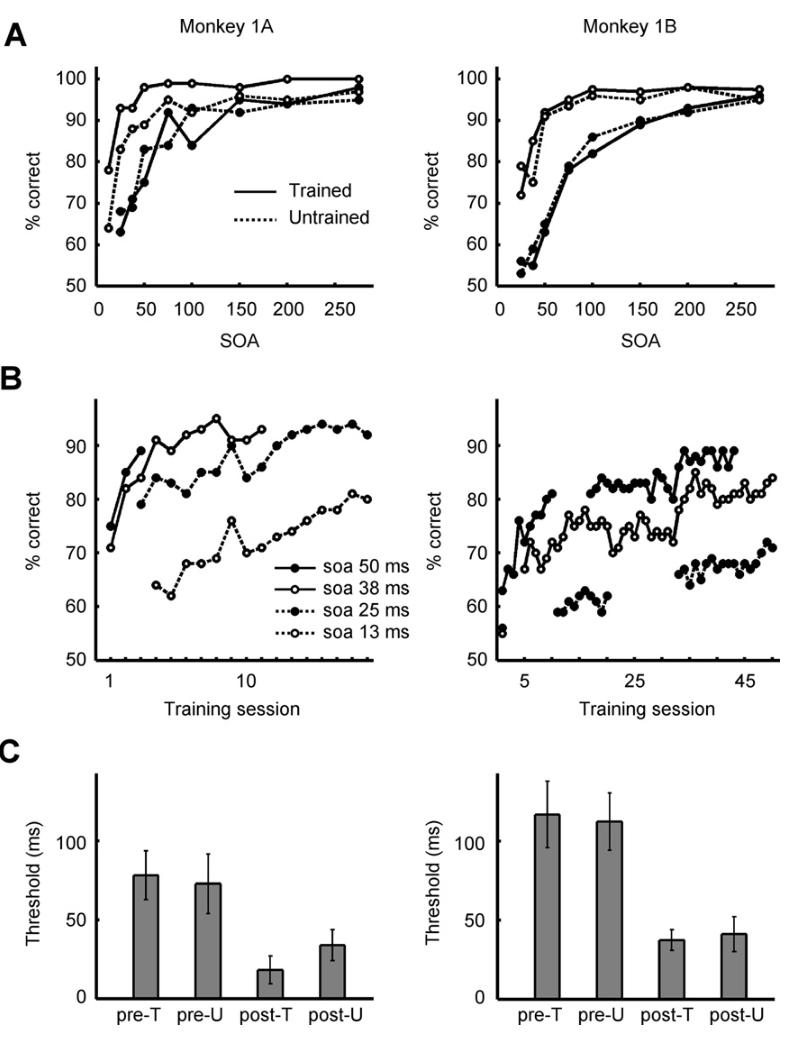
图 3 · 单个 IT 神经元对短/长 SOA 掩蔽物体的反应
原文图注:Fig. 3 shows the responses of one IT neuron to objects at a short and longer SOA. This neuron responded selectively at each SOA, preferring the same object at each SOA, but the duration and strength of the object-selective response were much smaller at the short SOA. Kovacs et al. (1995) showed before that the exact timing of the interruption of the transient stimulus response by the mask depends on a neuron's response latency. So, we report the results of analyses after correcting for the response latency of each individual neuron (see Experimental Proce-
(注:原文此处引用正文讨论段落替代标准图注,文末省略截断。)该单细胞示例呈现了后向掩蔽对神经放电的物理截断效应:该神经元在长 SOA(150 ms)与短 SOA 条件下均保持对同一物体的调谐偏好,但在短 SOA 条件下,由于掩蔽过早呈现,物体选择性反应的持续时程与放电幅度均受到明显压缩。该现象提示后续群体时程分析必须基于单细胞反应潜伏期进行精准对齐校正。
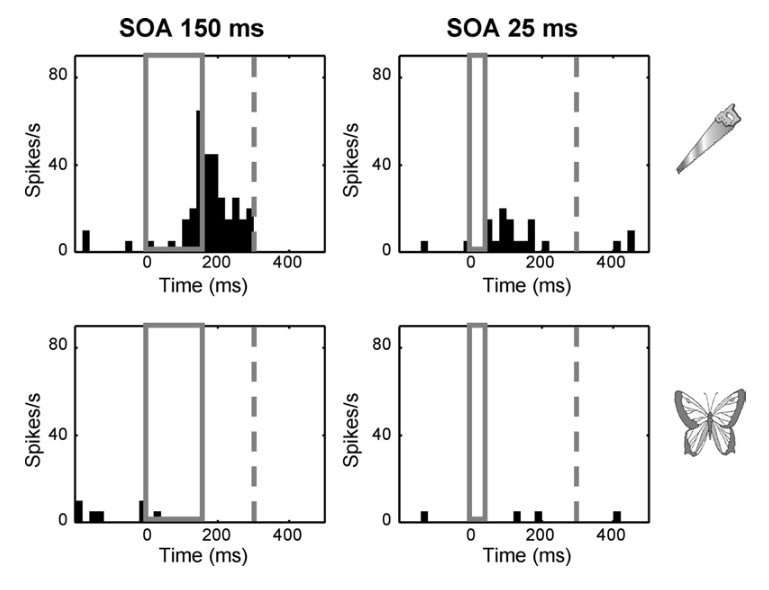
图 4 · 群体响应起始对齐直方图与训练 × 时间的交互
原文图注:Fig. 4. Normalized peri-response time population histograms for monkeys 1A and 1B in the masked same/different task. (A) Histograms for the best and the worst stimulus in each group of objects (trained and untrained). The horizontal line represents the average activity from 100 to 20 ms before response onset. (B) Histograms for the difference between best and worst stimulus. The horizontal line represents zero difference. Bin width is 10 ms. Whiskers represent the standard error of the mean across neurons.
(A) 展示两只受训动物在按神经反应潜伏期对齐后的归一化群体时程直方图,分别绘制受训组与未受训组中最优与最差物体的放电演变,水平虚线表示反应前基线放电水平;(B) 展示最优与最差物体的净差值直方图,水平线指示零差异(时间箱宽 10 ms,误差线表示跨神经元标准误)。在短 SOA 条件下,猴 1A 在放电起始后 0–50 ms 窗口内展现出受训组显著高于未受训组的选择性差值峰,而猴 1B 未显现该效应,直接印证了物体特异性选择性增强的短暂性与个体特异性。
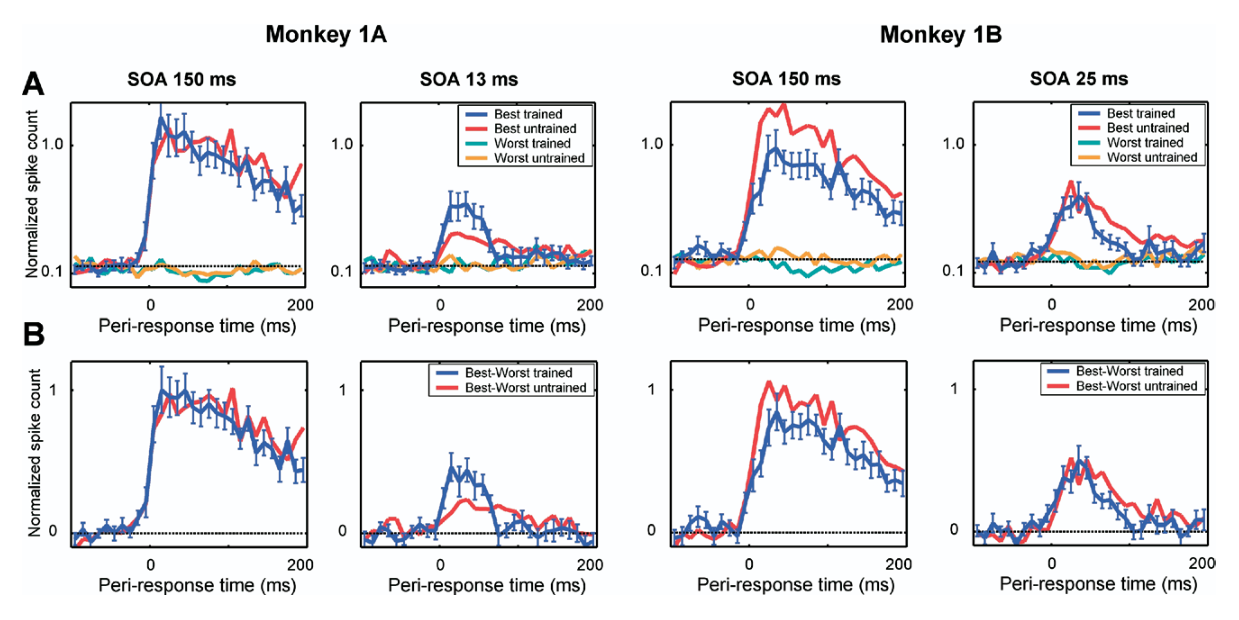
图 5 · 按刺激等级排列的平均反应
原文图注:Fig. 5. The average response during the masked same/different task as a function of stimulus rank for monkeys 1A and 1B in different SOAs. Average response was calculated in the interval 0–150 ms and 0–50 ms after response onset for SOA 150 ms and SOA 13/25 ms, respectively. Whiskers represent standard error of the mean across neurons.
横坐标表示按长 SOA 条件下反应幅度由强至弱排序的 10 个刺激等级(1 为最优,10 为最弱),纵坐标表示绝对放电率(短 SOA 统计 0–50 ms 窗口,长 SOA 统计 0–150 ms 窗口,误差棒为标准误)。在短 SOA 条件下,猴 1A 的受训刺激调谐曲线较未受训组呈现更为陡峭的斜率,表现出对最优刺激的增益与对非偏好刺激的抑制,而猴 1B 的两组刺激调谐曲线基本重合,为评估刺激等级重加权效应提供了参数化依据。
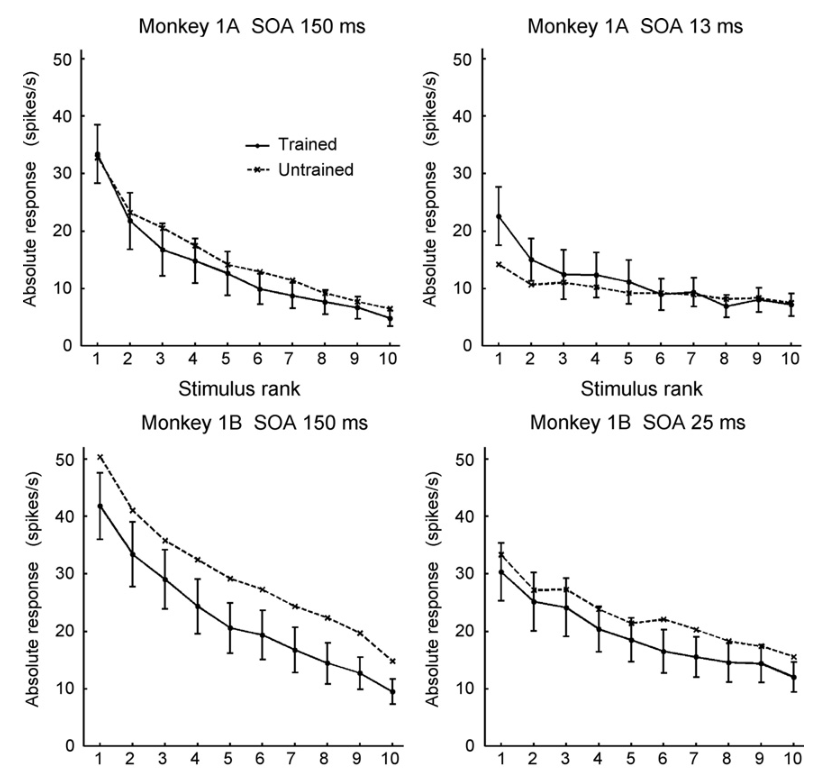
图 6 · 未训练猴单个 IT 神经元的物体与掩蔽反应
原文图注:Fig. 6. Peri-stimulus time histograms (bin width 20 ms) for a single IT neuron from monkey 2A at two SOAs for the "best" object (top row) and the "worst" object (bottom row) out of 10 objects. The gray box represents the time interval during which the object was presented. The masking pattern was presented immediately after this interval and its offset time is shown by the gray striped line.
展示未训练对照猴 2A 单个 IT 神经元在刺激呈现对齐下的 PSTH 曲线(时间箱 20 ms):上排为最优物体,下排为最弱物体,分别在长短两种 SOA 下呈现;灰色底纹框表示前导物体呈现期,虚线指示掩蔽图案终止时刻。在长 SOA 条件下,物体放电衰退后可观察到清晰独立的第二个放电峰(即掩蔽诱发反应);在短 SOA 条件下,该掩蔽放电峰随掩蔽提前呈现而同步提前出现,为区分前导物体放电与后随掩蔽放电提供了生理切分窗口。
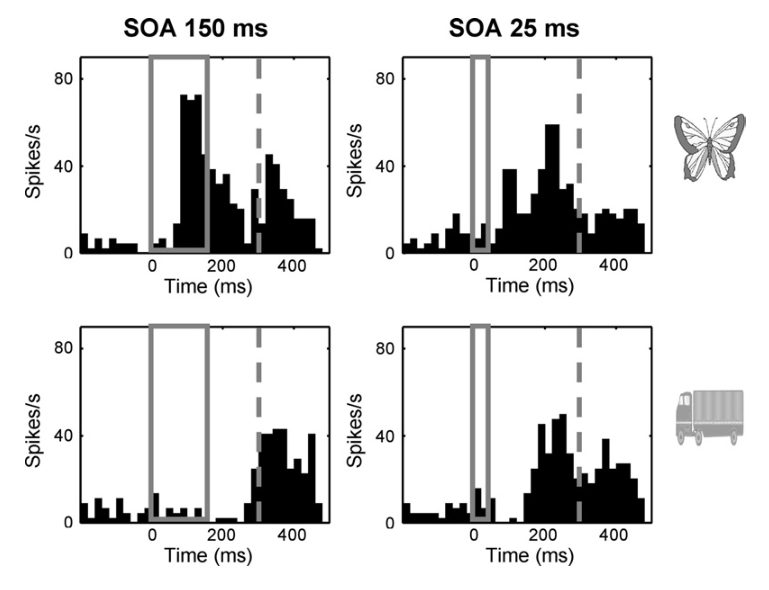
图 7 · 训练猴与未训练猴的掩蔽反应对比
原文图注:Fig. 7 shows the peri-stimulus population histograms at short and long SOA for the best and worst stimulus conditions in each monkey. There was a very striking difference between trained and untrained monkeys at the point
(注:原文此处截断。)图示跨动物群体时程对比:分别呈现四只猴在长 SOA (A) 与短 SOA (B) 条件下的刺激呈现对齐群体放电,蓝线为最优物体,红线为最弱物体。在物体呈现结束后的掩蔽时间窗内,未受训对照动物(2A、2B)表现出显著的群体放电增高,而两只长期受训动物(1A、1B)在掩蔽期几乎未诱发出额外的群体活动,放电迅速回落至基线水平,展现出受训动物对掩蔽干扰输入的系统性抑制。
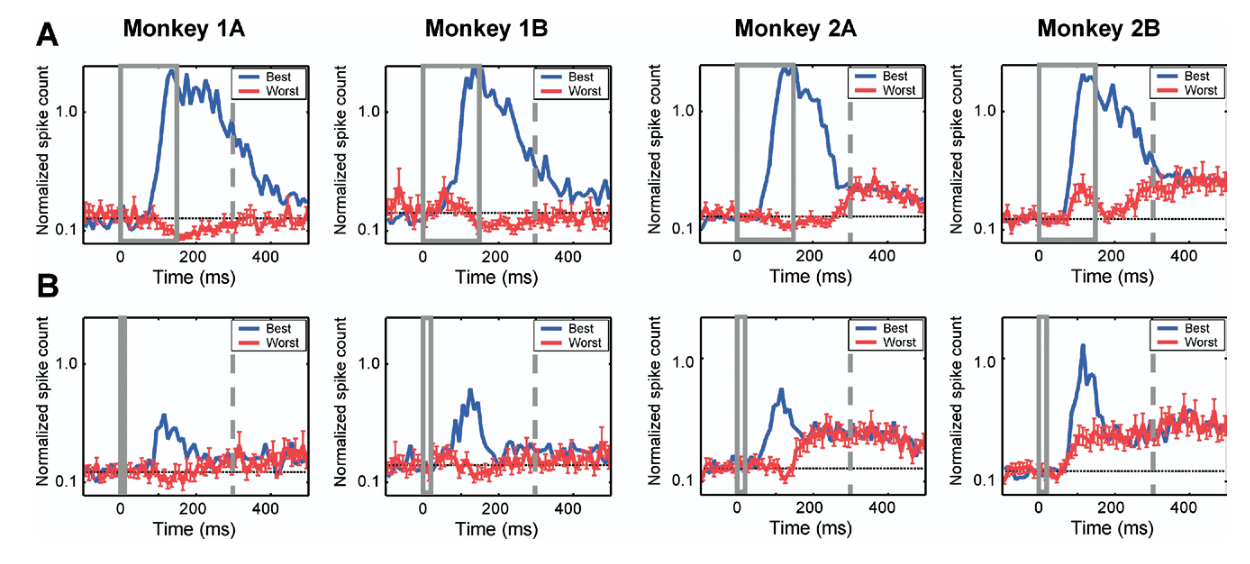
图 8 · 未训练猴 2A 做任务时的掩蔽反应对照
原文图注:Fig. 8. Normalized peri-stimulus time population histograms for monkey 2A in the masked same/different task at SOA 150 ms (top panel) and SOA 25 ms (bottom panel). Conventions as in Fig. 7.
展示未接受短 SOA 训练的对照猴 2A 在执行主动掩蔽辨别任务时的归一化群体放电直方图(上方为长 SOA,下方为短 SOA)。在主动执行判别任务时,其在掩蔽呈现期间仍诱发出高幅度的群体放电(平均 11.4 spikes/s),与被动注视基线无差异,排除了单纯处于认知任务状态即可自发抑制掩蔽神经反应的假设。
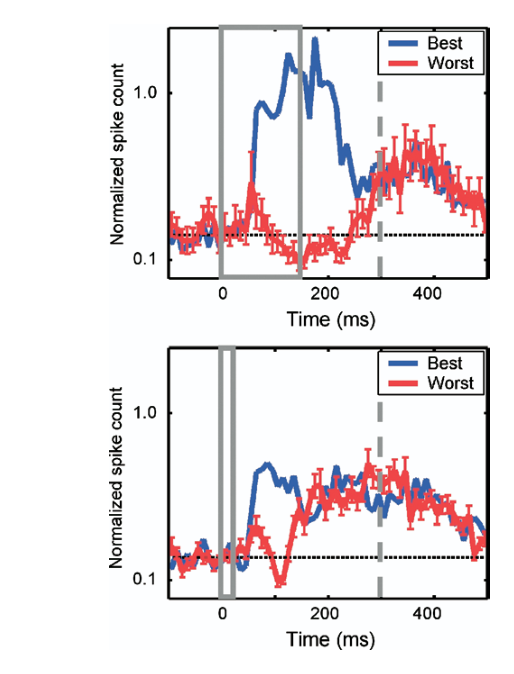
图 9 · 四只猴 IT 记录位置重建
原文图注:Fig. 9. Reconstruction of recording positions in IT cortex in the four monkeys. Abbreviations: amts, anterior middle temporal sulcus; ots, occipito-temporal sulcus; sts, superior-temporal sulcus.
三维解剖重建展示四只实验动物在下颞叶皮层的记录轨迹分布范围(标明颞中沟前部 amts、枕颞沟 ots 及上颞沟 sts 等解剖标志)。空间映射显示,两只受训动物的电极穿透位点完全处于对照动物记录位点的覆盖范围之内,且对照动物各解剖亚区的掩蔽放电均一致性地强于受训动物,排除了两组动物放电差异源自解剖取样偏差的可能性。
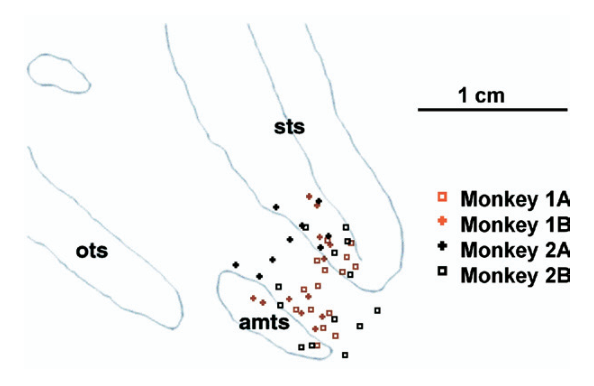
图 10 · 对比度同/异任务:掩蔽抑制与注意无关性检验
原文图注:Fig. 10. Contrast same/different task. (A) The task procedure. The monkey had to compare the contrast of the two enlarged fixation spots. (B) Normalized peri-response time population histograms for the difference in response between best and worst stimulus in each group of objects (trained and untrained). The horizontal line represents zero difference. (C) Normalized peri-stimulus time population histograms that reveal the absence of mask responses. Conventions as in Fig. 7.
(A) 展示对比度判别任务的控制范式:动物仅需比较前后两个放大注视点的明暗对比度变化,屏幕背景呈现的掩蔽与物体均成为非注意干扰物;(B) 反应起始对齐差值图显示,猴 1A 此前展现出的物体特异性短暂选择性增强在此任务中完全消失;(C) 刺激对齐直方图证实,即便脱离了物体辨别任务需求,受训动物对掩蔽刺激的抑制效应依然完全保留(平均净放电仅 2.8 spikes/s),支持掩蔽抑制机制具有相对独立于即时任务注意的持久适应性特征。
讨论
作者在讨论中将行为学与神经生理学效应进行了区分阐述。针对物体特异性神经变化(猴 1A 表现出的早期短暂选择性增强),其时间窗口极短(放电起始后 50 ms 内)且仅出现于单只动物,难以单独作为解释宏观 fMRI 信号持续增强的微观基础;在行为学层面,两只猴子对未受训客体的泛化迁移程度显著高于人类类似范式报道,物种间脑结构、任务复杂性及测量尺度(群体胞外单单位记录对比宏观血氧信号)的差异限制了直接等同,而两只动物在迁移程度上的差异(猴 1B 几乎完全泛化,猴 1A 部分迁移)提示知觉学习的特异性程度可能依赖于训练前的初始行为感知基线。
关于受训动物中普遍观察到的掩蔽诱发放电显著减弱,作者强调该效应属于长期系统训练重塑的神经适应结果,而非任务内瞬时注意过滤的简单表现——未受训动物在执行任务时掩蔽放电未见衰减,且受训动物在切换至注意完全脱离的对比度辨别任务时掩蔽抑制依然牢固保留。在认知计算模型上,后向掩蔽之所以能阻断视觉识别,被认为破坏了高级视觉皮层向低级感觉区投射的再入式反馈(re-entrant processing)回路;长期的辨别训练促使视觉通路建立了针对强干扰输入的适应性压制,从而为前导目标物体的特征整合与再入反馈争取了关键的处理时间窗。研究同时指出了实验局限性:神经机制的推断主要基于跨受训组与未受训组动物之间的横向电生理对比,受限于微电极记录的侵入性,未能实现单个神经元在训练全周期的纵向追踪,具体的局部突触传递调控机制仍有待深入探讨。
一句话总结
研究通过猕猴下颞叶单细胞记录表明,针对后向掩蔽物体的长期辨别训练主要重塑了高级视觉皮层对随后干扰掩蔽信号的强力抑制,而针对特定物体的调谐锐化仅表现出短暂且个体差异明显的辅助效应,提示知觉学习在提高目标表征精度的同时,通过适应性过滤无关瞬态干扰扩展了视觉编码的时间窗口。