一句话定位:本综述系统梳理了脉冲发放时序依赖可塑性(STDP)的实验现象、细胞生物物理机制与神经计算意义,阐述了突触修饰方向与幅度如何由突触前与突触后动作电位的毫秒级时序间隔决定(突触前先于突触后放电主要诱导 LTP,反向则诱导 LTD),并分析了从离体配对规则向复杂放电模式及在体功能环路外推的边界。
研究背景
神经系统通过突触效能的持久可塑性实现信息存储与环路修饰。长时程增强(LTP)与长时程抑制(LTD)构成了突触双向修饰的基础。经典 Hebb 学习规则强调突触前后神经元的“协同活动”,但未细致界定放电的时间微观结构。早期在海马穿通纤维的研究即观察到弱输入相对强输入的先后时间差可改变增强或抑制的走向,表明时序在突触修饰中具备调节作用。
20 世纪 90 年代后期,全细胞记录技术实现了对单个突触前与突触后动作电位的毫秒级时钟配对。在海马离体培养物、视网膜-顶盖投射、体感皮层与视皮层脑片中,实验证实突触前动作电位先于突触后动作电位(pre-before-post)在数毫秒至数十毫秒的时间窗内诱导 LTP,而突触后先于突触前(post-before-pre)则诱导 LTD。这一依赖精细时差的可塑性形式被定义为 STDP。然而,离体规整刺激下的配对规律如何由 NMDA 受体及钙动力学介导、抑制性环路与细胞内源兴奋性是否同步改变,以及在自然多脉冲模式与在体自发活动干扰下该规则如何维持效力,仍需系统归纳。
研究思路
文章按“基本规律—细胞生物物理机制—非突触机制延伸—复杂放电模式修饰—在体功能证据—网络计算意义”的层级逻辑展开:首先阐述经典不对称双向时间窗的形态与关键参数;其次从突触后钙内流动力学、NMDA 受体解阻断及第二信使通路解析其发生机制;随后拓展探讨神经元固有膜兴奋性、树突局部积分特性以及抑制性 GABA 突触中的 STDP;进而分析爆发放电(bursting)与多脉冲三元组(triplet)对双脉冲规则的非线性修正;最终结合视皮层感受野重构与空间知觉偏移等在体证据,归纳 STDP 在输入竞争、时间序列预测与网络动态稳定中的计算功能。
方法
综述整理的核心实验范式涵盖:离体脑片与培养神经元的全细胞膜片钳记录(在海马及新皮层第 2/3 层与第 5 层锥体神经元中,以设定时差配对刺激,测量兴奋性突触后电流 EPSC 的幅值变化);在体电生理研究(如非洲爪蟾视网膜-顶盖突触的在体配对、成年猫初级视皮层内源信号光学成像与细胞内记录、大鼠视皮层在体全细胞记录);人类无创调控与心理物理测试(成对经颅磁刺激 TMS 调控运动皮层兴奋性,以及视觉朝向辨别与位置知觉的心理物理适应);机制研究结合了双光子钙成像、局部树突膜片钳记录与受体/通道特异性药理学阻断。
主要结果
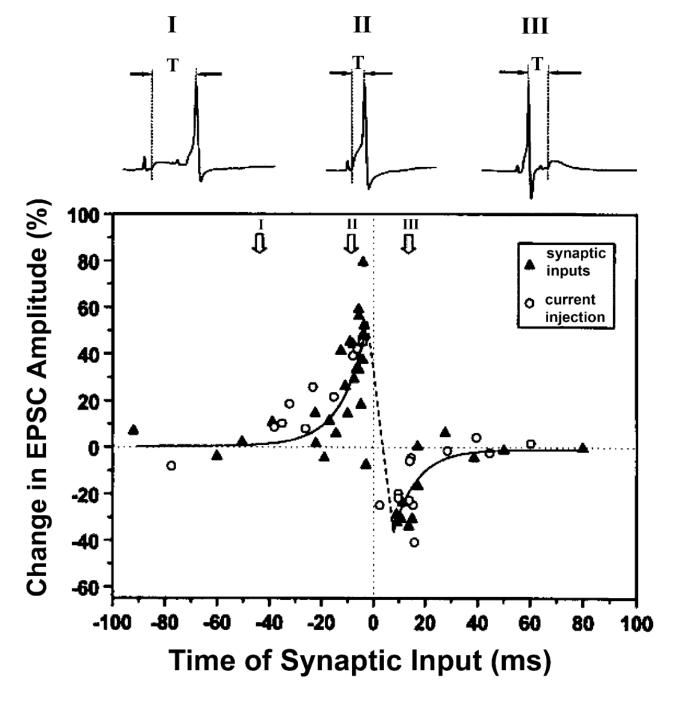
- 临界时间窗与突触后钙信号机制(图 1):突触前放电先于突触后放电(pre-before-post,时差约 0 至 +20 ms)时,谷氨酸结合的 NMDA 受体因反传动作电位去极化而解除 Mg²⁺ 阻断,引发幅度高且集中的钙离子内流,激活钙调蛋白激酶 II(CaMKII)诱导 LTP;突触后放电先于突触前放电(post-before-pre,时差约 0 至 −20 ms)时,仅诱发经由电压门控钙通道或部分未脱敏 NMDA 受体的较低幅度、持续性钙升高,优先招募钙调磷酸酶与蛋白磷酸酶 1 诱导 LTD。钙成像显示正向配对引发超线性钙累加,反向配对引发亚线性累加;药理学部分阻断 NMDA 受体可将正向配对结果翻转为 LTD。
- 时间窗的神经调控与抑制性突触 STDP:β-肾上腺素能受体激活可拓宽海马 CA1 锥体细胞的 LTP 时间窗;阻断 GABA_A 受体可逆转幼年期大鼠海马配对诱发 LTP 能力的下调。在 GABA 能抑制性突触上,重复的突触后放电在抑制性突触输入前后 20 ms 内激活时,可通过 L 型钙通道依赖的 KCC2(钾-氯共转运体)下调导致 GABA 翻转电位去极化,诱发双向对称的突触抑制减弱。
- 突触外内在兴奋性与树突非线性调节:突触强度改变的同时伴随突触前轴突起始段膜兴奋性的双向调节(涉及钠通道与慢激活钾通道修饰)、树突 A 型钾通道修饰引起的 EPSP-尖峰(E-S)偶联增强或抑制,以及经由超极化激活阳离子通道(Ih)修饰引起的树突空间整合线性度改变。树突空间位置亦产生调控:远端树突突触的 LTP 幅度相对较小且 LTD 时间窗较宽。
- 复杂放电模式对规则的非线性修正:皮层第 2/3 层的连续三脉冲刺激显示,每组三元组中前一对脉冲的突触修饰效应居于主导,后续脉冲的诱导效能受到抑制;纳入该前序抑制项的模型能较好预测多脉冲及自然放电序列的修饰方向。在第 5 层锥体神经元中,高频爆发放电(burst)配对减弱了对单个脉冲精细纳秒/毫秒时差的敏感性,表明脉冲爆发可作为突触修饰的基本时序单元。
- 在体表征修饰与行为证据:在成年猫 V1 中,以数十毫秒间隔异步呈现两个不同朝向的视觉刺激,导致皮层神经元的朝向调谐曲线朝向先呈现的刺激方向发生偏移;若以异步光点刺激视网膜邻近区域,可诱发皮层内感受野空间位置的位移,并伴随人类被试相应位置感知错觉的产生。在自由跑动的大鼠海马中,位置野沿跑动方向发生的不对称扩张亦符合基于 STDP 的前向序列学习特征。在体自发背景活动可自发衰退新诱导的 LTP,而间歇性、重复性(spaced)诱导方案有助于突触强度的稳固维持。
- 神经网络层面的计算功能:双向时间窗中 LTD 曲线覆盖的总积分面积大于 LTP 面积(负积分偏置),为汇聚到同一神经元的突触提供竞争机制,使缺乏协同的前馈输入受到削弱,维持总体突触权重的稳定与皮层神经元放电的稀疏性;非对称时序依赖赋予神经网络学习时间序列因果关系的能力,支持前馈信号预测;毫秒级灵敏度支持声源定位等依赖极低双耳时间差(ITD)的感觉特征检测,并促进局部环路的相位同步化。
图注解读
图 1 · 发育期视网膜-顶盖突触 STDP 的临界时间窗
原文图注:Figure 1. The Critical Window for Spike Timing-Dependent Plasticity of Developing Retinotectal Synapses. The percentage change in the synaptic strength (EPSC amplitude) after repetitive retinal stimulation was plotted against the onset time of the retinal stimulation relative to the peak of the action potential initiated in the tectal cell. Data shown are for experiments in which spiking of the tectal neuron was initiated by either a suprathreshold input or a group of coactive inputs (filled circles) or by injection of a depolarizing current (open circles) in a tectal neuron (from Zhang et al., 1998).
展示发育期视网膜-顶盖突触 STDP 的临界时间窗曲线。横轴为视网膜前级刺激相对于顶盖细胞动作电位峰值的起始时间间隔(负值代表突触前先于突触后,正值代表突触后先于突触前),纵轴为重复配对刺激后 EPSC 幅度的相对变化百分比。零点左侧(前在前)表现为突触传递效能的长时程增强(LTP),零点右侧(后在前)表现为长时程抑制(LTD),不对称窗口宽度约在数十毫秒以内。实心圆点与空心圆点分别对应由突触前输入诱发放电与由细胞体注入去极化电流诱发放电两组实验条件,二者呈现基本一致的时间调谐曲线。
讨论
作者讨论了 STDP 在神经计算理论与实验生理学中的核心价值:将传统依赖放电率协同的突触修饰规则深化至毫秒级时序敏感的因果修饰,且突触效能、内源兴奋性与树突整合表现出协同的修饰方向。
文章同时总结了该理论框架下的待解决问题:突触表达的主要位点(突触前神经递质释放概率改变与突触后受体密度及电导调节的相对权重)因脑区而异,尚未完全阐明;在具有高变异性自发背景放电与复杂微环路反馈的活体大脑中,STDP 的时间窗如何抵御高频噪声干扰并实现稳定存储仍需计算与生理证据;在体感受野位移实验在多大程度上直接由突触水平的 STDP 单一介导,仍需更直接的分子与光遗传因果验证。研究指出,未来需进一步将细胞水平的微观时序规则整合入大规模皮层神经网络模型中。
一句话总结
本综述阐释了脉冲时序依赖可塑性(STDP)基于动作电位毫秒级先后时差诱导 LTP 或 LTD 的细胞生理机制,总结了其在调节神经元膜兴奋性、树突整合与抑制性环路中的多维表现,并阐明了其在时间序列预测、突触竞争与网络动态平衡中的计算功能。