一句话定位:这是前一篇 J. Neurosci. 论文(论文 013)的姊妹篇,用更精巧的"指令线索"设计回答一个更尖锐的问题:人脑下颞叶在工作记忆(working memory, WM)编码与维持阶段的活动,究竟是刺激自下而上驱动的余波,还是任务相关的主动调控?结果是梭状回面孔区(FFA)和海马旁回位置区(PPA)的活动跟随"指令让你记什么",而非"屏幕上放了什么";背外侧前额叶(dorsolateral PFC, DLPFC)则只跟随记忆负荷。它把"前额叶通过对下颞叶表征的偏向竞争来操作工作记忆"这一猕猴电生理假说落到了人类影像证据上。
研究背景
视觉工作记忆要求人在刺激消失后继续保留可用于判断的信息,但持续脑活动究竟反映什么,并不能仅凭它出现在延迟期就确定。猕猴单细胞研究曾发现下颞神经元对样本具有选择性,并在保持阶段继续放电,为视觉表征参与维持提供了依据。人类研究则更多关注前额叶的执行功能;在下颞区域,一些面孔记忆实验报告持续活动,另一些操纵记忆负荷的实验却未发现可靠的延迟调制。这样的不一致使一个替代解释始终存在:所谓记忆活动可能只是初始知觉反应在时间上的延续,而非为当前任务主动保留的信息。
要排除这一解释,需要将“看到了什么”与“必须记住什么”分开。面孔和场景分别偏好激活梭状回面孔区与海马旁场景区,为追踪记忆内容提供了类别层面的指标。既有注意研究已经显示,选择性注意能够调制这些区域,但其典型问题是同时出现的物体如何竞争知觉资源;工作记忆还涉及刺激被看清之后,哪些表征获得进一步编码并在输入消失时继续保持。如果实验仅改变屏幕上的类别或项目数量,知觉驱动和记忆要求就会一起变化。因此,关键缺口不是再找一个延迟期激活区,而是在知觉内容匹配时,证明下颞活动仍随记忆指令改变,并将内容效应与数量效应区别开来。
本文利用指令线索与三张图像序列的组合实现这种分离:同样的面孔和场景输入,可以要求记住其中的面孔,也可以要求记住场景,相关项目数则在一项和两项之间变化。研究分别估计编码及延迟阶段的活动,比较两个类别区是否跟随任务相关类别,并检验背外侧前额叶是否更多随负荷变化。这使“视觉表征受到主动调用”成为可检验命题,而不是把持续信号直接命名为存储。需要保留的边界是,两个类别之间的相对差异无法单独区分相关表征增强与无关表征抑制,类别选择性也不等于记住了具体个体的全部细节。功能成像能够说明任务相关的调制,却不能直接证明调制由前额叶发出,或确立额颞反馈的因果方向。
研究思路
作者借用猕猴电生理的推理:下颞叶神经元物体选择性高、维持期活动具有刺激特异性,因此下颞叶活动的"地形"应反映正在维持的信息类型。具体做法是独立操纵两个变量:指令类型(线索告诉你记住面孔还是场景,即任务相关性)与刺激内容(三张序列图中含一张还是两张类别成员,即知觉内容)。若下颞叶活动只对刺激敏感,FFA/PPA 只应跟随呈现了几张本类刺激;若工作记忆假说成立,则不管屏幕上谁多谁少,FFA/PPA 在线索期与延迟期的活动应跟随指令指向的类别。同时基于背外侧 PFC 参与工作记忆与认知控制的证据,预测该区活动跟随待维护的信息量。因为两条件下的刺激序列内容完全匹配,编码与维持活动得以与知觉加工解耦——这正是设计的关键一击。
方法
12 名右利手被试(19–31 岁,均值 22.9 岁),均经医学、神经、精神史筛查。任务为延迟再认(delayed recognition):每试次先呈现 1 s 的指令线索(face 或 scene),随后逐张呈现三张随机排序的灰度图(两张面孔一张场景,或反之,各 1 s),被试在注视中央十字的同时在 12 s 延迟内复述任务相关类别,之后呈现单个面孔或场景 2 s,被试用按键判断其是否属于刚才的记忆集(各 50% 概率),试次间隔 14 s;每轮 12 试次、共 8 轮 96 个试次。刺激为 20 张面孔加 20 张场景(Kanwisher 提供)。另有视觉运动反应任务用于估计每人的血流动力学响应函数(HRF),以及两轮局部izer(faces/scenes/objects/scrambled objects 16 s 区组设计,判断与前张是否相同)。扫描在 4T Varian INOVA 上做梯度回波 EPI(TR 2000 ms,18 层 × 5 mm 轴位)。分析以多元回归估计各试次时段(线索 0–4 s、晚编码/早延迟 4–6 s、延迟 8–12 s、反应 16–18 s)相对试次间隔基线的激活,卷积用个体化 HRF;回归 beta 在 ROI 内平均后进入随机效应组分析。三个 ROI:FFA(梭状回内 faces>scenes 显著体素)、PPA(海马旁回/侧副沟内 scenes>faces 显著体素)、背外侧 PFC(中额回约 BA 9/46 内任一时段有任务相关活动的体素;腹外侧区因部分被试信号丢失被排除)。计划比较为对 cue/delay 期 beta 做"指令类型 × 刺激负荷"两因素 ANOVA。
主要结果
- 行为(图 3):总体准确率 96.8%(SD 4.6%),准确率对负荷与指令均无显著主效应(F(1,10)<1),交互亦不显著(F(1,10)=1.8);反应时则对负荷敏感(两项目试次更慢,F(1,10)=7.75,p<0.019),且场景试次整体慢于面孔试次(F(1,10)=11.277,p<0.01)。
- 知觉驱动的效应先行确认(作为基线):FFA 线索期对"两张面孔"的反应大于"一张面孔"(F(1,11)=18.54,p<0.001),PPA 线索期对"两个场景"大于"一个场景"(F(1,11)=21.89,p<0.001)——ROI 的类别选择性成立。
- 任务相关性独立调制下颞叶(图 4、图 5):剔除刺激数量效应后,FFA 在面孔相关试次的线索期与延迟期活动均更强(cue:F(1,11)=11.06,p<0.01;delay:F(1,11)=11.69,p<0.01),PPA 在场景相关试次两时段均更强(cue:F(1,11)=40.29,p<0.001;delay:F(1,11)=16.29,p<0.005);两 ROI 在任何时段均无指令 × 负荷交互。
- 个体层面方向一致(图 5):把每人"面孔相关减场景相关"的 beta 差画散点,绝大多数被试在各自偏好的类别被指派记忆时 FFA/PPA 活动增强(线索期与延迟期两幅图同向),说明类别调制是群体规律而非个别被试拉动。
- DLPFC 只看数量不看类别(对应负荷操纵):延迟期活动在两个场景或两张面孔(两项目)试次显著高于一个项目试次(F(1,11)=21.02,p=0.001),与信息类型无关——与下颞叶"按类型调制"形成互补的双分离。
图注解读
图 1 · 任务设计:指令与刺激内容解耦
原文图注:Fig. 1. Behavioral paradigm and task design. On each trial, subjects were shown a sequence of three images for 1 s each. Based on the instruction cue, subjects were required to encode and rehearse 1–2 of these items across a 12-s delay. Because the content of the stimulus sets were matched across scene–instruction and face–instruction trials, activity associated with active encoding and maintenance processes could be dissociated from activity associated with perceptual processing.
时间线上依次是 1 s 指令线索、三张序列图(各 1 s,其中 1 或 2 张属于线索类别)、12 s 延迟、2 s 再认探测。读图的要点在于:同为"两面孔一场景"的输入序列,在 face 指令与 scene 指令下知觉输入完全相同,差别只在要记住哪一类——正是这一点使"主动编码/维持"与"知觉加工"在统计上可分。这张图是理解结果 3 双分离逻辑的前提。
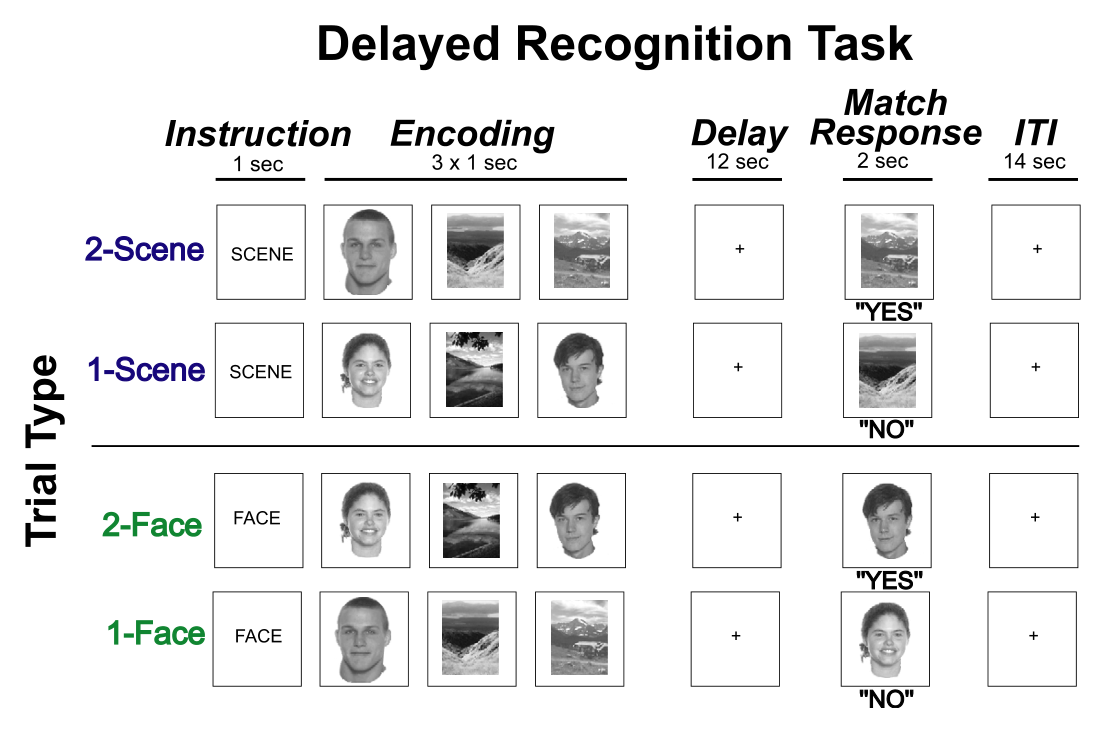
图 2 · 功能定位的 FFA 与 PPA 位置
原文图注:Fig. 2. Locations of the FFA and PPA ROIs are shown on axial slices for one representative subject.
一名代表性被试的轴位切片上分别标出 FFA(梭状回内 faces>scenes)与 PPA(海马旁回/侧副沟内 scenes>faces)的体素范围。它演示了 ROI 是"先解剖边界、后功能反转对比"的两步法得到的,因此类别选择性不是事先假设强加的,而是由独立局部izer 客观定义——这为后续所有类别调制结果提供了测量基底。
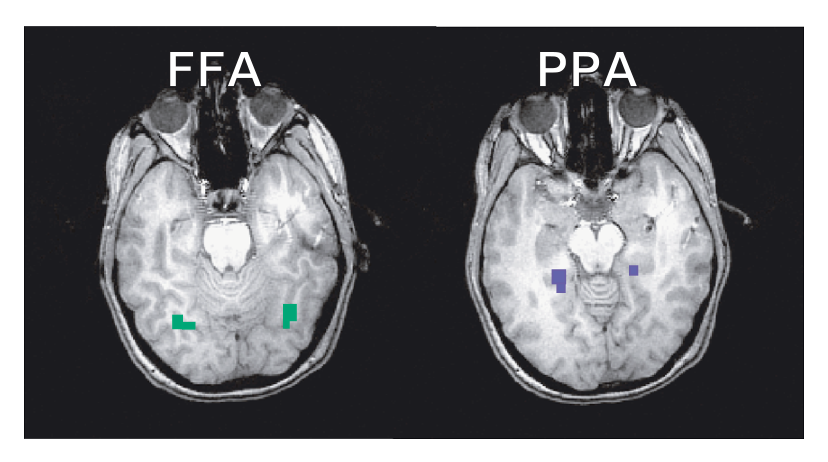
图 3 · 行为结果
原文图注:Fig. 3. Behavioral results. Bar graphs show mean accuracy (top) and reaction times (bottom) for each trial type. Error bars denote the standard error of the mean.
上排是四种试次类型(面貌指令/场景指令 × 一项目/两项目)的平均正确率,下排是对应平均反应时。正确率四柱几乎等高(约 96%),说明所有条件的记忆要求都可胜任、天花板效应存在;反应时柱则随负荷升高,且场景条件普遍略慢。这张图支撑结果 1,也提示影像差异不能归因于准确率层面的任务难度差。
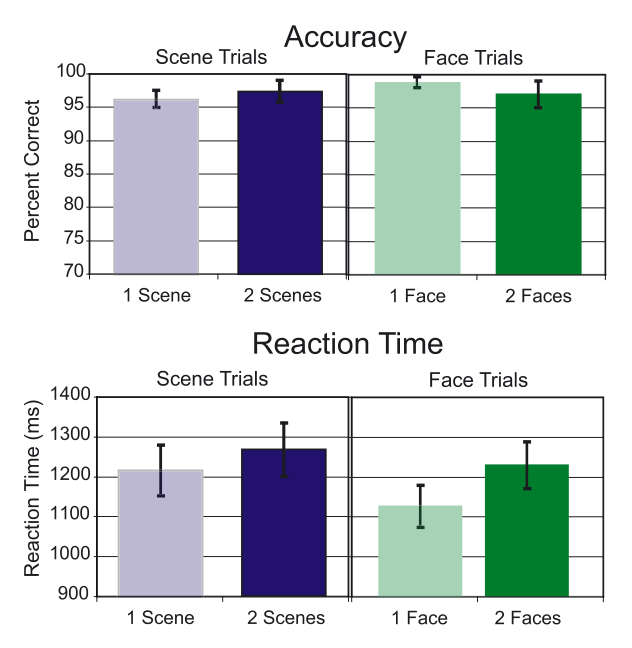
图 4 · FFA/PPA 对任务相关类别的编码与维持调制
原文图注:Fig. 4. Modulation of inferior temporal activity associated with active encoding and maintenance. The bar graphs show parameter estimates indexing the magnitude of BOLD responses in the FFA (left) and PPA (right) collapsed across memory load conditions. Cue (top graphs) and Delay (bottom graphs) period responses are shown for trials when faces were relevant (green) and trials when scenes were relevant (blue). Error bars for each ROI and task period denote the standard error of the mean across subjects. These results show that independent of perceptual stimulation, inferior temporal activity was sensitive to the type of information to be encoded and maintained.
四组柱状图:列是 FFA 与 PPA,行是线索期与延迟期,绿色柱为面孔相关试次、蓝色柱为场景相关试次(负荷条件合并)。FFA 的绿柱高于蓝柱、PPA 的蓝柱高于绿柱,且在线索与延迟两个时段都成立——注意此图已剔除刺激数量的影响。这张图是结果 3 的主图,直观呈现"指令决定下颞叶地形"的核心发现。
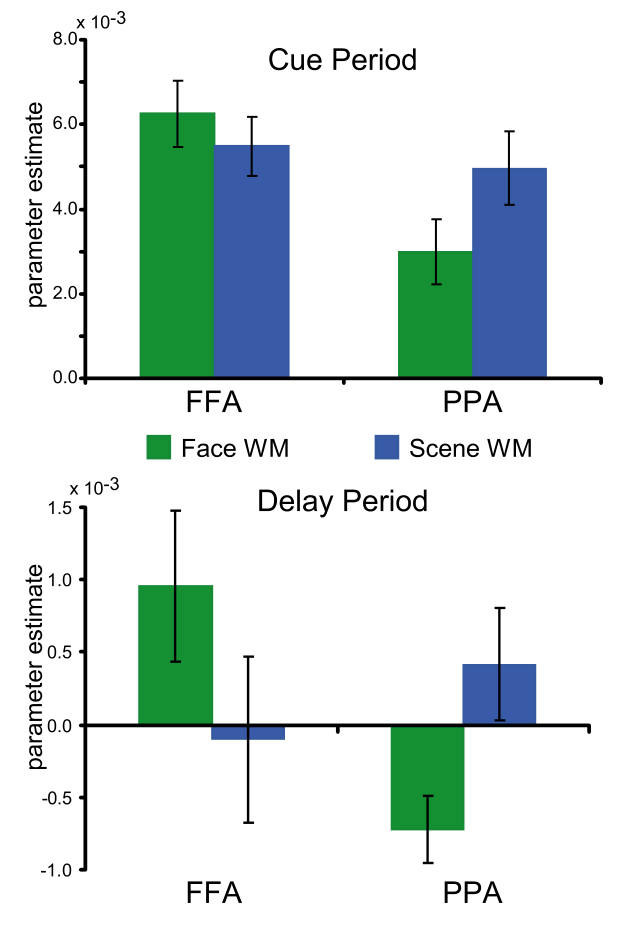
图 5 · 个体水平的类别选择性散点
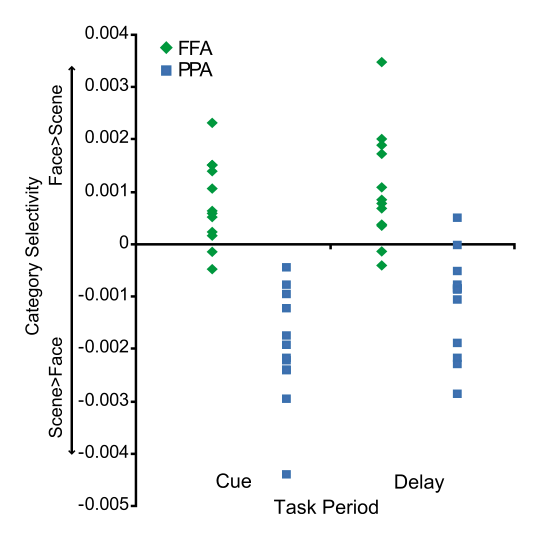
原文图注:Fig. 5. Category selectivity of inferior temporal activity during WM encoding and maintenance. A scatter plot shows the parameter estimates indexing the face–scene response amplitude difference during the cue (left) and delay (right) periods. Each point represents data from a single subject. Positive values indicate relatively greater activation for face-relevant trials, whereas negative values indicate relatively greater activation for scene-relevant trials (note that because these are contrasts of parameter estimates derived from the GLM, the units are arbitrary). ……(后略:FFA(蓝)与 PPA(绿)显示,多数被试在各自偏好的刺激被指派记忆时线索期与延迟期活动增强。)
左图是线索期、右图是延迟期,横轴(或分类轴线)上每点为一个被试的"面孔相关减场景相关"beta 差:FFA 的点集中在正值区(面孔相关时更强),PPA 的点集中在负值区(场景相关时更强)。注意图中注明这些是 GLM 参数估计的对比值,单位任意,重要的是符号与聚集方向。它把图 4 的群体效应落到个体层面,支撑结果 3 与 4。
讨论
作者把发现拆成两层来谈。编码层面:本任务的刺激逐张呈现、每张 1 s,按人类电生理的估计(物体再认在刺激后 150–300 ms 内完成),刺激之间并不存在对知觉资源的竞争,因此这里的类别调制不能沿用"偏向竞争解决知觉冲突"的解释(O'Craven 等 1999;Wojciulik 等 1998;Tong 等 1998),而表明任务相关类别的知识被用于解决"记忆加工资源"的竞争——即对下颞叶表征的偏向塑造了编码入 WM 的内容,支持"WM 编码是独立于知觉加工的过程"的认知理论(refreshing、consolidation 等)。作者同时承认两种机制(促进相关类别的编码 vs 抑制无关类别的编码)无法在两类别刺激的设计下区分。维持层面:下颞叶延迟期的类别特异性活动与猕猴电生理一致(Miyashita & Chang 1988;Nakamura & Kubota 1995——且后者显示延迟期活动随延迟加长而延长,并耐受干扰项),对 Miller 等(1993)"干扰刺激消除延迟活动"的阴性结果,作者援引 Nakamura & Kubota 及人类 fMRI(Postle 等 2003:FFA 延迟活动在干扰后依然稳健)加以平衡。额-颞分工层面:下颞叶活动跟随信息类型、DLPFC 活动跟随信息数量,这与 Petrides(2000)的损伤研究互补——下颞叶损伤猴在延长延迟时受损,DLPFC 损伤猴延迟无限但监测项目数增加即受损。总体结论把 WM 描绘为携带任务相关信息的回路中的往复振荡活动(reverberating activity)。局限方面,文中只用了两个刺激类别(促进与抑制解释混杂)、腹外侧 PFC 因信号丢失未纳入 ROI,且 fMRI 无法直接判定调制方向与因果。
一句话总结
该研究通过将先验任务指令与输入刺激内容解耦,有效排除了单纯自下而上知觉驱动的解释,证实下颞叶特化皮层并非被动的知觉表征区域,而是能够受前额叶自上而下控制信号的调制,在延迟期特异性地维持与任务相关的目标类别表征。需要指出的是,受限于功能磁共振的信号特性,BOLD 激活增强反映的是相关表征的增益放大还是无关表征的主动抑制,仍需结合单细胞层面的电生理记录进一步厘清。