这是一篇带着自家实验数据的短篇综述:Sigala 汇总了她在猴子与人身上做的"心理物理学 + 电生理"联合实验,问一个问题——学会对一个物体类别分类之后,视觉系统对刺激特征的表征会不会随之改变。答案是肯定的:经过分类训练后,猴子颞下皮层前部(IT)中表现出特征选择性的神经元,大多数只对那些对分类任务真正有诊断意义的特征调谐。这篇文章值得读,是因为它把 Rosch 式的认知层面概念、Nosofsky 的样例分类模型和 IT 神经元的感受野性质接到了一起。
研究背景
识别与分类本质上是同一个问题——"这是什么"——即把输入信息与记忆中的信息匹配。但一个物体可以同时属于多个类别("刀"也是"工具"、"厨刀"、甚至是"结婚礼物"),于是产生了类别如何组织与提取的问题。语言学、人类学与心理学早已注意到类别的层级结构:Rosch 提出的"基本层面"(basic level)是信息量与区分度最大的层面,其上位层面(如"工具")只有少数抽象功能性共性,下位层面(如"厨刀")则是基本层面特征的小幅知觉修饰。Rosch 与 Mervis 还预见到基本层面依赖专长(expertise):Tanaka 与 Taylor 证实,专家(如观鸟者)的"基本层面"其实是外行人的下位层面("麻雀"而非"鸟");专家还能看出外行眼中不同事物之间的深层相似。这些研究拼出的图景是:专家在知觉与解释其专长领域内的物品时,与新手已经不同。作者感兴趣的正是这种由分类经验带来的表征改变的神经基础,于是设计了人与猕猴的对照研究——猕猴的视觉系统与人类相似,擅长视觉辨别与刺激泛化,适合行为与电生理联合研究。
研究的脑区选择是颞下皮层 IT。局部切除与单细胞研究早已确立 IT 在视觉物体表征中的关键地位:它对复杂刺激(人脸、物体)以及它们的极简版本都有反应;改为中性的'一方面……另一方面……'句式,或注明方位归属为整理者补充;边缘系统列举补全为'边缘叶、海马、杏仁核'。,因此既能整合视觉信息,又能与决策、记忆、情绪结构交互。同时,人类等效脑区的活动被认为对刺激的分类层面敏感、并依赖观察者的专长(如 Gauthier 的 fMRI 专长研究)。缺口在于:分类训练究竟会如何重塑 IT 的特征表征,此前缺少把知觉层面与神经层面绑在一起的定量证据。
研究思路
作者的总体策略是"参数化控制 + 双重测量"。刺激不用照片而用参数化的线条图:每套刺激(Brunswik 式人脸、或鱼的轮廓)只在四个维度上变化、每个维度取三个离散值,这样"哪些特征对分类是诊断性的(diagnostic)"就成为实验者可控、可翻转的自变量。分类任务刻意把类别边界设在四个维度中的两个上:人脸集可沿(眼高 EH、眼距 ES)分开而不可沿(鼻长 NL、嘴高 MH)分开,鱼集可沿(背鳍 DF、尾 T)分开而不可沿(腹鳍 VF、嘴 M)分开。于是在同一套刺激里,诊断维度与非诊断维度并存,训练只奖励前者——若 IT 表征真的随任务重塑,就应该能在"诊断 vs 非诊断"这根轴上看到不对称。
测量的两头分别是心理物理与神经。知觉一头用三联刺激比较的相似度评定(similarity ratings)任务:三张图并排,被试判断中间图与左右哪张更相似,把全部反应转成两两不相似度矩阵,再拟合出一个四维向量构型,与刺激的物理空间直接比较——心理表征沿哪些维度更"忠实"于物理刺激,一目了然,且可以在分类训练前后各做一次。神经一头则在猴子做分类任务时于前部 IT 胞外记录单单元,用同样的参数化设计检验神经元对四个维度值的选择性。这个设计的巧妙之处在于因果方向明确:猴子在分类训练前对四个维度都没有稳定的知觉表征,因此训练之后出现的任何"只偏向诊断维度"的神经调谐,都可归因于任务需求而非既存偏好。
方法
被试为两只猕猴和人(相似度评定中人类被试最多 pooled 五人)。刺激方面:人脸线条图沿眼高(EH)、眼距(ES)、鼻长(NL)、嘴高(MH)四维变化,鱼轮廓沿背鳍(DF)、尾(T)、腹鳍(VF)、嘴(M)四维变化,各维三个离散取值,类别设计与人脸刺激均复制自 Nosofsky [16] 的经典材料。(网格交点代表全部 9×9=81 种可能刺激)。分类任务分两个阶段:先学习把 10 个训练样例分入两个类别,再泛化到 24 个新样例;类别沿四个维度中的两个可分(人脸为 EH、ES,鱼为 DF、T)。相似度评定用三联比较法,各 20 张脸或鱼,反应转成不相似度矩阵后拟合四维构型,与物理刺激空间比对;训练前后各测一次,猴子与人类分别测。
电生理实验在猴子做分类任务(34 张鱼或 34 张脸)时进行前部 IT 单单元胞外记录,实验中猴子 A 正确率 98%、中位反应时 416ms,猴子 B 98%、530ms。共检验 96 个有视觉反应的单元(65 个同时用鱼集测试)。分析上对每个单元、每个特征做单因素 ANOVA(检验其对四个刺激特征的反应是否有差异,P<0.05 并对四次比较做校正),并用标准选择性指数(selectivity index,某特征上最大与最小活动之差除以两者之和)量化每个神经元对诊断与非诊断维度调谐的精细程度。为排除眼动伪迹,作者计算刺激出现后 450ms 内落入 1 度注视窗之外的眼动比例,并按注视窗的左右半、上下半分别统计。人群平均图以刺激前 200ms 的背景发放归一化,并对刺激后 100–475ms 时间窗做 t 检验比较"最佳特征值 vs 最差特征值"的平均发放。
主要结果
-
训练前:猴子对任何维度都没有稳定的知觉表征,人类则有(图2 的前测部分)。训练前相似度评定显示,猴子的构型抓不住刺激的物理差异(尽管其在匹配对照任务上高于 chance,71% 对 50%);人类能忠实提取各维度。这确立了"训练前后对比"的基线。
-
训练后:猴子的知觉表征沿诊断维度显著改善,人类则整体不变甚至对非诊断维度变得不敏感(图2)。量化指标 Δ12、Δ34 是心理物理构型与物理刺激沿(维度1,2)与(维度3,4)的平均距离差:分类后猴子 A 的 Δ12 显著下降(P<0.005)并与人类不可区分(P>0.15),第二只猴子同样;鱼集上两只猴子合并数据在诊断维度同样改善(P<0.005)而非诊断维度不变(P>0.19)。反倒是人类被试的 Δ34 显著升高(P<0.01)——对鱼的非诊断特征(腹鳍、嘴)的知觉敏感度选择性下降;合并的人类被试数据(前测四人 vs 后测五人)得到同样结果。
-
前部 IT 的特征选择性神经元多数只调谐于诊断特征(图4)。44/96(45.8%)的单元对人脸刺激的至少一个特征值有显著不同反应,28/65(43.1%)对鱼刺激有;其中 72.7%(32/44,脸)与 75%(21/28,鱼)只选择性针对一个或两个诊断特征。以选择性指数作诊断 vs 非诊断维度的散点图,点群明显偏离对角线(相等选择性线):诊断维度的平均选择性显著更高(脸 P<10⁻⁸,鱼 P<10⁻⁴)。
-
群体平均水平上,诊断特征"最佳值 vs 最差值"的发放差异可辨,非诊断特征则不可(图3)。以鱼刺激测试的全部 65 个单元(不管单个是否有选择性)作群体平均:尾与背鳍(诊断)的最佳特征值引发的平均发放显著高于最差值(t 检验,刺激后 100–475ms 窗,图中标注 p=0.01),而腹鳍与嘴(非诊断)无差异(p=0.2、p=0.3)。
-
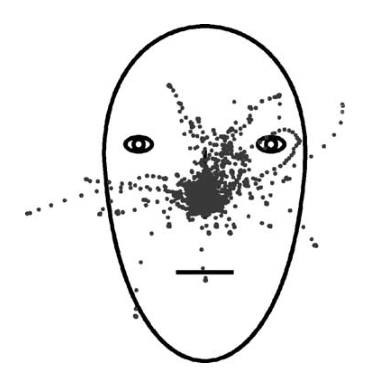
眼动控制排除了"扫视偏好造成选择性"的解释(图5 及表1、表2)。脸刺激记录中的试次里超过 95%(鱼超过 90%)的眼动落在 1 度注视窗内;对注视窗左/右半与上/下半的眼动百分比做 t 检验,没有发现任何猴子偏向扫描诊断特征所在的区域(脸的上半——眼睛区,鱼的上部与后部——背鳍与尾)。图5 给出 345 个试次的眼动叠加在一张示例脸刺激上,散布并不偏向眼睛。
-
神经元不针对单一刺激集或单一类别响应。正文指出这些 IT 神经元并不选择性地只对某一刺激集或某一类别反应,与 Vogels(1999)及 Op de Beeck 等(2001)的相关研究一致;它们对几乎所有刺激乃至自然图像控制刺激都有反应,选择性只是借助参数化设计才能显形为"对行为相关特征携带详细参数化信息"。
图注解读
图 1 · 参数化刺激:四个维度、三个取值
原文图注:Fig. 1. Parameterized variation of stimulus features. (a) The first stimulus set consisted of Brunswik faces differing along four dimensions: eye height (EH), eye separation (ES), nose length (NL), and mouth height (MH). Each dimension took three discrete values. Three examples are illustrated from left to right with minimal, intermediate and maximal values for all four dimensions, respectively. (b) The second stimulus set consisted of fish outlines and also varied along four dimensions, namely the shape of the dorsal fin (DF), tail (T), ventral fins (VF) and mouth (M). In this case also, each dimension took three discrete values. From left to right: minimal, intermediate and maximal value for all four dimensions, respectively. (c) Graphical representation of the four dimensions characterizing the face stimuli. Eye and mouth height were measured from face center. Stimuli in (a) labeled accordingly in (c). Grid intersection points represent all possible stimuli (9 × 9 = 81) obtained from combinations of three discrete values along each dimension. (Figure reproduced from [20], with permission.)
(a) 是三张从最小到最大取值的人脸线条图,四个维度(眼高、眼距、鼻长、嘴高)同步变化;(b) 是同构的鱼轮廓(背鳍、尾、腹鳍、嘴);(c) 把人脸四维画成两两正交的坐标系,网格交点即 81 种可能刺激。读图要点在(c):整个实验的逻辑就建立在这种"几何化"的刺激空间上——诊断与非诊断维度的区分、心理物理构型与物理空间的比对,都以它为参照。这张图定义了"方法"一节里介绍的刺激集。
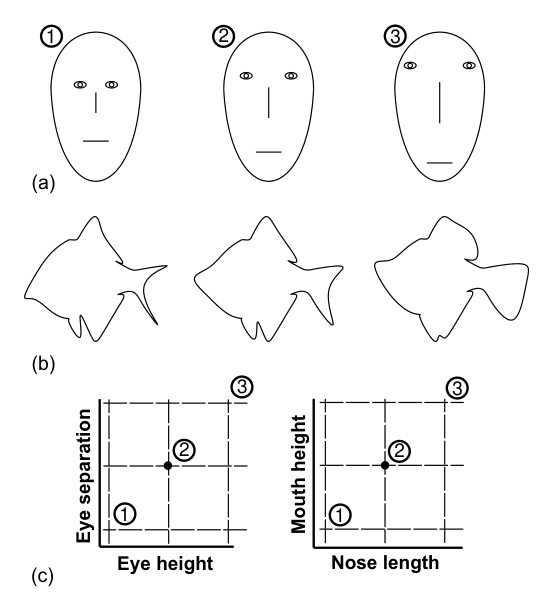
图 2 · 分类训练改变知觉表征:猴子改善诊断维度,人类钝化非诊断维度
原文图注:Fig. 2. Effects of categorization on the representation of the stimuli. (a) Mean distance difference between psychophysical and physical stimuli along the (EH, ES) dimensions (∆12) and the (NL, MH) dimensions (∆34) before and after categorization averaged over 20 schematic faces (error bars are standard error of mean). Average distance difference along the (DF, T) and (VF, M) dimensions before and after categorization for fish outlines. Data before and after categorization taken from two different monkeys and a single human subject. See Fig. 1 for abbreviations. Significance levels (t-test): (∗∗) corresponds to P < 0.005 and (∗) to P < 0.01. (Figure reproduced from [20], with permission.)
柱状图(复引自作者 2002 年心理物理学论文):纵轴是心理物理构型与物理刺激间的平均距离差(越小表征越忠实),施误差棒(SEM),按训练前后、维度对(诊断的 Δ12 与非诊断的 Δ34)分列,删去'未标星号',直接写'(b) 为鱼,结构同 (a)';星号 ∗∗ 为 P<0.005、∗ 为 P<0.01(t 检验)。读图核心是训练前后差值的方向:猴子的 Δ12 在训练后显著下降(表征变准),人类的 Δ34 在鱼集上反而上升(表征变差——对非诊断维度钝化)。此图支撑"主要结果"第 2 条,也是全文"分类塑造表征"主张的心理物理学证据。
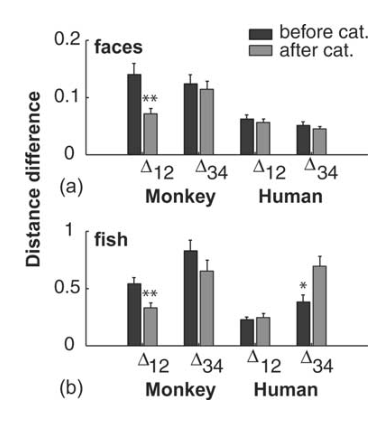
图 3 · 群体平均:诊断特征的最佳/最差值发放不同,非诊断特征无差异
原文图注:Fig. 3. Population average for the units recorded with the fish stimuli. The mean firing rate of every cell was normalized to its background firing rate (time window of 200 ms before stimulus presentation). Dark gray traces represent average responses to the best feature values. Light gray traces represent average responses to the worst feature value. Error bars indicate standard error of the mean. For each feature a t-test was performed for the time window 100–475 ms after stimulus presentation, testing the hypothesis that the mean firing rate to the best feature was equal to the mean firing rate to the worst feature. The hypothesis could be rejected in the case of the diagnostic features (tail and dorsal fin).
四个子图分别对应鱼的尾、背鳍(诊断)与腹鳍、嘴(非诊断):横轴是刺激起始后的时间(ms),纵轴是以刺激前 200ms 背景发放归一化的平均发放(spikes/sec),深灰曲线为"最佳特征值"、浅灰为"最差特征值",误差棒为 SEM。诊断特征两图中两条曲线明显分开(刺激后 100–475ms 的 t 检验 p=0.01),非诊断特征两图中曲线几乎重叠(p=0.2、p=0.3)。此图的价值在于它用的是全部 65 个单元的群体平均——即使不算单个神经元,IT 群体编码也承载了诊断维度的参数化信息,支撑"主要结果"第 4 条。
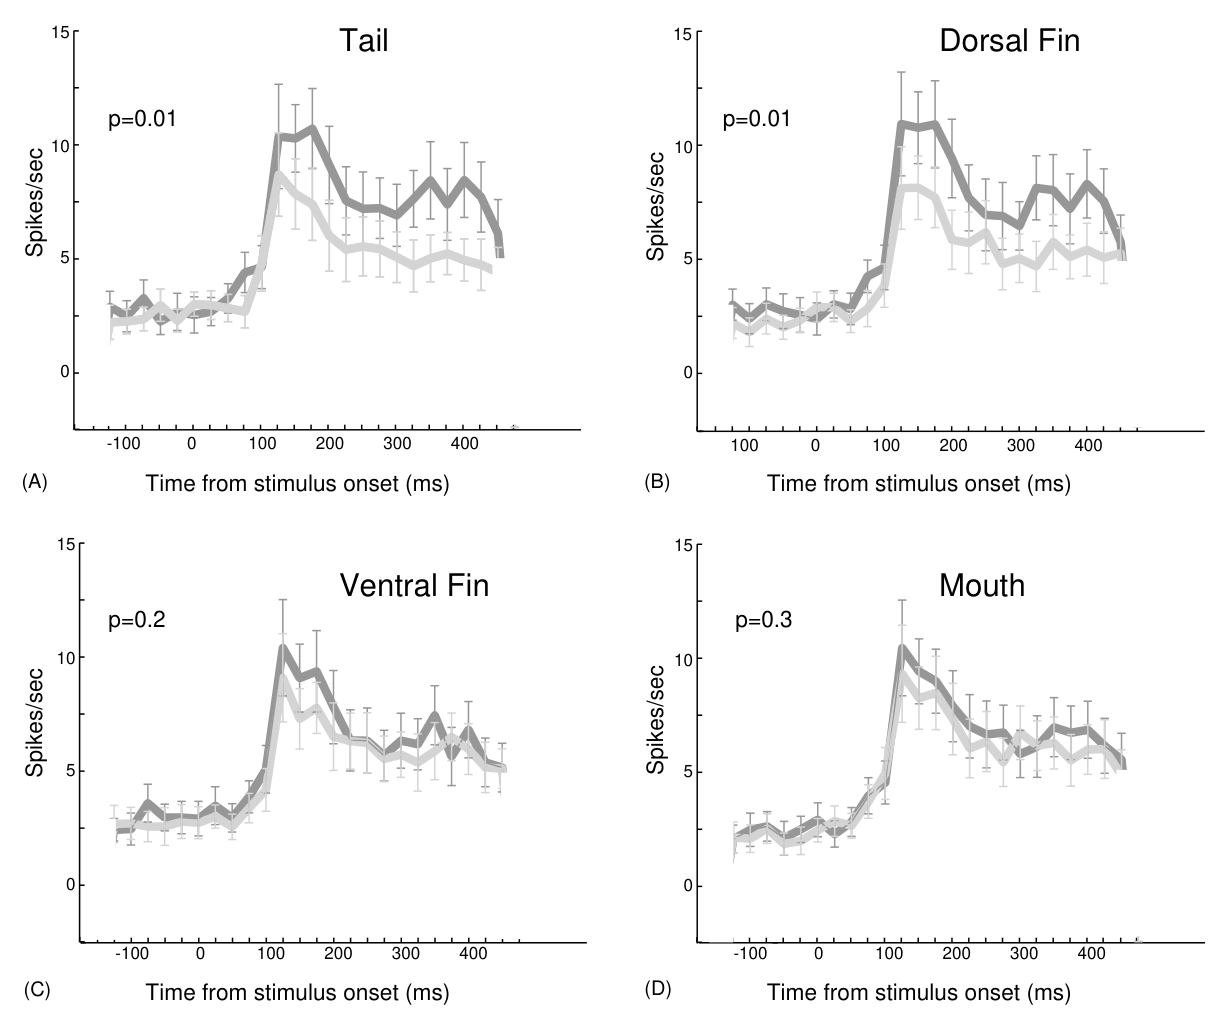
图 4 · 单神经元水平:诊断 vs 非诊断选择性的群体偏移
原文图注:Fig. 4. Representation of the diagnostic features in the neuronal population for faces (A) and fish (B). Plots of the average selectivity index of each neuron for the diagnostic vs. the non-diagnostic features. Each point represents one neuron. Dark gray circles represent neurons with selectivity for diagnostic features only. Light gray circles represent neurons with selectivity for diagnostic and non-diagnostic features. Black triangles represent neurons with no selectivity. The dotted line indicates equal selectivity for all stimulus features. Inserts show the distribution of the selectivity index for the diagnostic features after subtraction of the selectivity index for the non-diagnostic features. (Figure adapted from [21], with permission from the Nature Publishing Group, http://www.nature.com/.)
(A) 脸刺激(n=96)、(B) 鱼刺激(n=65):横轴是每个神经元对非诊断特征的平均选择性指数,纵轴是对诊断特征的平均选择性指数(选择性指数=某特征上最大与最小活动之差除以两者之和)。若两轴同等调谐,点应聚在虚线对角线上;实际点群整体偏向纵轴(诊断侧),深灰圆点=仅诊断选择性,浅灰=兼有,黑三角=无选择性;嵌入小图是"诊断减非诊断"指数差的分布。统计上诊断选择性显著更高(脸 P<10⁻⁸,鱼 P<10⁻⁴)。此图改绘自作者的 Nature 2002 论文,支撑"主要结果"第 3 条——样例模型预言的"按诊断性分配注意"在单细胞层面成立。
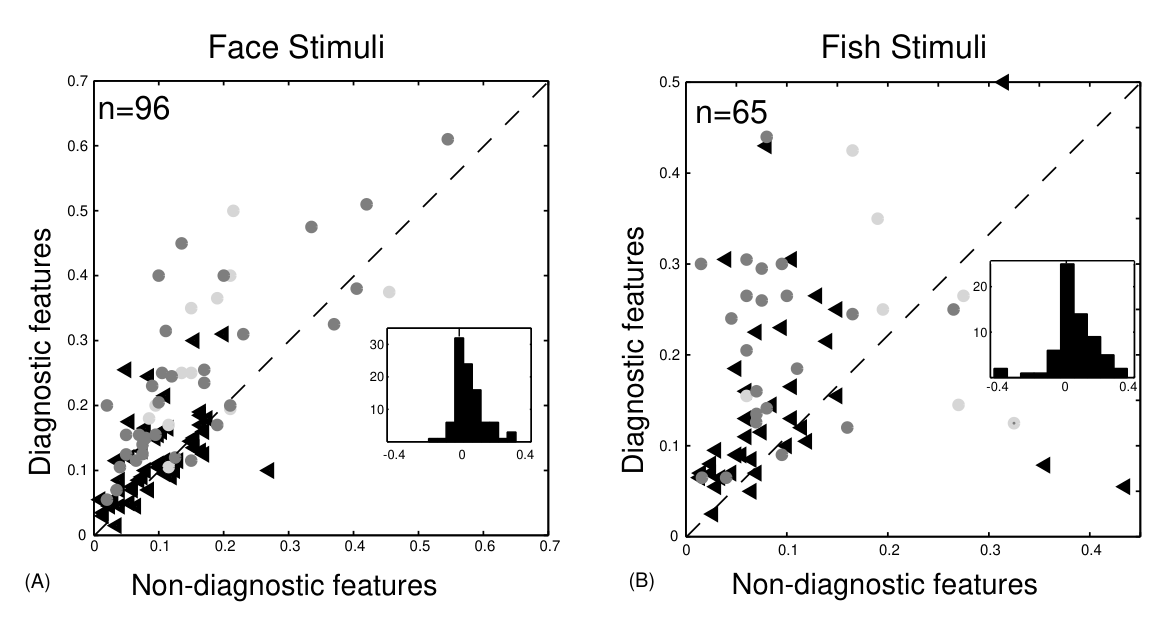
图 5 · 眼动控制:注视点不偏向诊断特征
原文图注:Fig. 5. Eye movements for 345 trials superimposed on an example face stimulus. More than 95% of the eye movements were in the one-degree fixation window and not selectively on the diagnostic features.
示例脸刺激上叠加 345 个试次的眼动轨迹:轨迹密集地落在中央的 1 度注视窗内,而非聚焦于眼睛(诊断特征)区域。配上正文表 1、表 2 的左右半/上下半百分比 t 检验(均不显著),这张图排除了一个致命的替代解释——神经元对诊断特征的选择性或许只是猴子看哪里看得多的副产品。支撑"主要结果"第 5 条。
讨论
作者的核心解释是:IT 神经元的这种精细调谐反映了"知觉敏化"(perceptual sensitization)——对分类任务中诊断性特征的敏感性提升;整个发现为经典样例模型(exemplar-based model)、即 Nosofsky 的广义情境模型(generalized context model, GCM)提供了实验支持。GCM 假设不同维度按其对类别归属的诊断性获得不同的注意权重,这是一种选择性注意过程,使某些维度变得比其他更重要;心理物理结果已表明 GCM 对人类与猴子的分类行为都能较好拟合。神经结果则补充了机制层面:IT 神经元并不选择性地对某个刺激集或类别响应(这一点与 Vogels、Op de Beek 等的研究一致),但凡是有维度选择性的神经元,约 74% 只对诊断维度调谐。
对"眼睛是天生的突出特征、故对眼部选择性无需分类训练"的替代解释,作者给了几条反驳:其一,采用类似图形刺激与分类任务的人类心理物理研究(Martin & Caramazza)发现,即便注视方向是关键特征,被试表征最好的反而是嘴(笑/皱眉)与脸形(胖/瘦);另一实验中眼睛和耳朵最富诊断性时被试根本学不会那两个类别——所以不宜把人脸识别文献里的"上半脸更强"直接搬过来,尤其鱼集的诊断特征(背鳍、尾)分明位于"上、后"部,到人脸文献里就说不通了。其二,两套刺激的特征结构差异很大(脸的 EH、ES 相互重叠且被轮廓包住,鱼的 DF、T 则互不重叠且与非诊断特征连续而连贯),结果却高度可比,且不存在"全或无"式复杂特征选择性。其三,也是最有分量的:分类训练前猴子对四个维度全都没有知觉表征,若真有先在的神经选择性,理应支撑出相应的知觉表征,而事实上只有训练之后诊断特征才被显著更好地表征。作者最后指出模型的自然预测:如果翻转特征诊断性,细胞的选择性也应随之翻转,这与其余若干预测正在后续实验中检验。
一句话总结
在我看来这篇短文最重要的信息是:IT 的特征调谐不是对"物体长什么样"的照抄,而是对"哪些特征曾经决定过回报"的历史记录——猴子眼里那两条鱼尾和背鳍之所以在皮层里被放大,只是因为它们曾经把话说满。心理物理与电生理在"诊断 vs 非诊断"这根轴上给出同向证据、加上眼动控制,构成了一条少见的完整证据链;不过只有两只猴子、且预测(翻转诊断性应翻转细胞选择性)在写这篇时才刚开测,严格说这还是个"强相关 + 合理机制"的故事而非因果定论。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[] - Fig4: 提取质量
good,对齐度full,识别面板[A, B] - Fig5: 提取质量
good,对齐度full,识别面板[]
关键事实与局限性声明
- 审校纠偏: 这个设计的巧妙之处在于因果方向明确:……都可归因于任务需求而非既存偏好 -> 评注: 原文作者本人的措辞更谨慎('it is very unlikely that anything but the training of the monkeys can account for the reported selectivity',且承认不能排除其他原因),解读的'因果方向明确'略强于原文;不过解读在'一句话总结'中已自行纠正为'强相关+合理机制而非因果定论',整体可接受,属轻微过述。
- 补充要点: 负结果/对照遗漏:Discussion 中报告猴子在 schematic faces 训练后,对参数化真人脸照片(Vetter 提供)经一周训练仍无法泛化,但同期能泛化到 schematic fish——这是支持'效应由任务训练而非刺激熟悉度驱动'的重要对照证据,解读未提及。
- 补充要点: 样本量限定可更显眼:电生理数据仅来自 2 只猴子,人类心理物理前/后测为不同被试池(between-subject 比较,faces 3 vs 5、fish 4 vs 5),这一设计弱点只在'一句话总结'里间接提到,方法/结果部分未明确标注前后测人类被试不同组。
- 补充要点: GCM 模型预测(翻转特征诊断性应翻转细胞选择性)在原文中被明确标注为'正在检验的预测',解读在讨论中已提及,但可更明确地与'本文已证实的发现'区分开,避免读者误读为已有结果。