Brunel 在该篇 Cerebral Cortex 论文中利用平均场皮层网络模型探讨了两个核心计算神经科学问题:皮层局部微回路维持刺激选择性持续放电(persistent activity)的动力学机制,以及联想学习如何通过突触可塑性重塑持续活动的吸引子模式。文章首先通过双稳态与多稳态网络阐释吸引子动力学原理,进而在同一理论框架下复现下颞叶(IT)与嗅周皮层在三类经典实验范式中的电生理观测——配对联想任务、带颜色切换的配对联想任务以及固定时序延迟匹配任务。
研究背景
在涉及工作记忆的行为任务中,部分大脑皮层神经元在视觉刺激撤除后的延迟期内仍能维持刺激选择性的持续放电,这被视为信息短时存储的关键细胞级机制。下颞叶与前额叶皮层均记录到此类持续放电活动,但二者在抗干扰能力及动力学特性上存在差异。电生理实验表明,配对联想、颜色维度切换和固定序列呈现等训练范式能够显著改变持续活动的放电表型:部分神经元从表征已呈现刺激逐渐过渡为预期关联刺激,部分神经元的选择性放电则完全由学习诱导生成。从计算理论上整合这些实验现象,需要阐明局部神经回路维持持续放电的突触动力学机制,以及突触权重重塑如何改变网络稳态景观。
吸引子网络模型将持续活动视为局部兴奋性循环反馈所支撑的自维持稳定状态。理论上,纯兴奋性均一网络可以涌现双稳态,但生理皮层回路包含强烈的局部抑制性反馈,以将自发活动稳定在低频背景水平。稀疏编码机制允许多个离散的记忆吸引子态在网络中并存:少数神经元亚群维持高频放电以保持特定客体表征,其余绝大部分神经元维持低频背景放电。基于赫布学习规则的突触修饰能够增强特定神经元集群内部或关联集群之间的突触连接强度,从而驱动个体吸引子、配对联合吸引子或序列拓扑状态的产生、合并与转移。
Brunel 首先借助平均场模型阐明双稳态与多稳态的几何存在条件,随后将三类联想学习范式映射到突触参数空间中的吸引子相图。研究旨在明确:刺激选择性持续放电在何种兴奋-抑制平衡参数区间内得以稳定存在、联想学习如何改变吸引子的数量与分布,以及非选择性外部调控输入为何呈现倒 U 形调节效应。研究构建了“全局抑制稳定背景自发活动、选择性兴奋维持持续记忆状态”的双重机制模型。同时,文章也指出了模型的理论边界:离散吸引子难以直接泛化至未学习新刺激或连续工作记忆变量,且强突触反馈下的低放电变异度与真实皮层电生理记录中的大 CV 现象尚存在一定差异。
研究思路
作者将理论建模划分为由简至繁的三层逻辑结构:第一步,构建最基础的均一耦合纯兴奋性单群体网络,阐明双稳态产生的几何机制。网络稳态表现为单神经元发放率-电流曲线(f–I 曲线)与一条斜率反比于兴奋性回环强度的直线的交点,从而将持续活动的存在条件转化为代数与几何相交问题;第二步,引入生理皮层的两项核心属性——强抑制反馈主导(用于将自发放电锚定在低频生理区间)与稀疏表征(单个记忆模式仅激活少数兴奋性神经元),由此确立“全局抑制稳定自发活动、亚群内选择性兴奋稳定记忆表征”的动力学结构;第三步,引入由赫布学习塑造的突触连接结构,通过两个核心参数进行刻画:同一模式内部的选择性突触增强量 JS,以及关联模式之间的联想学习指数 a。进而分析吸引子景观随突触修饰的演化规律,将电生理记录到的前瞻性放电、状态切换与近邻关联现象统一解释为网络吸引子状态的涌现、分岔与转移。研究采用平均场解析方法推导各稳态解与参数相图,并辅以脉冲神经元网络仿真验证有限尺寸效应与动态演化过程。
方法
模型中的单神经元采用解析形式的 f–I 曲线描述:在阈值电流 Ic 以下为超线性区间,表征膜电位涨落主导的泊松式亚阈值随机放电;在 Ic 以上为亚线性区间,表征均值输入主导的动作电位发放。参数标定参考皮层锥体细胞的离体电生理记录(Ic = 0.2 nA, νc = 10 Hz;Rauch 等 2003)。网络由兴奋性与抑制性神经元群体构成,典型网络规模设定为 4000 个 AMPA 型兴奋性突触(峰值电导 50 pA,衰减时间常数 2 ms)与 1000 个 GABA 型抑制性突触(84 pA,衰减时间常数 5 ms)。学习后的突触矩阵由编码水平 f(单个刺激激活的兴奋性神经元比例,设定为 0.05 即 5%)与选择性突触增强系数 JS 共同决定;同一模式内部突触经长时程增强(LTP)强化,未激活突触经长时程抑制(LTD)减弱,以维持网络自发活动基线平稳。参数 a 表示跨关联群体间突触增强的净比例(即联想学习指数)。稳态解由 f–I 曲线与突触反馈方程的联立交点求得(附录 1–4 给出数学推导),脉冲网络模型用于验证动力学稳定性与状态转移时序。
主要结果
-
纯兴奋性均一网络存在双稳态现象:当循环突触反馈强度 J 超过临界值(约 17 pA.s)时,除静息态外系统分岔产生一个持续放电态,临界分岔点处持续放电频率约为 17 Hz;随后持续放电率随 J 的增加快速攀升,吸引盆同步扩展。瞬态外部刺激能够触发状态跳变:当 J = Jc 时,瞬时正向输入 Iext > 0.25Ic 可开启持续放电态,负向超极化电流 Iext < −0.25Ic 可促使网络重置回静息态(图 2)。
-
在符合生理突触数量的皮层网络中,回路必须由抑制性反馈主导才能将自发活动稳定在生理低频区间,此时纯兴奋性网络的均一双稳态消失(图 3)。引入学习诱导的选择性突触结构后,刺激选择性的持续活动得以恢复,网络进入多稳态:每个习得的视觉物体对应一个离散的持续活动吸引子;在该持续态下,仅约 5%(编码水平 f)的神经元表现出 10–35 Hz 的特征性高频放电,其余 95% 的神经元维持在 0–10 Hz 的背景自发水平。全局抑制性反馈维持背景放电的稳定性,而亚群内部的选择性兴奋维持持续表征的稳定性,二者机制相对解离(图 4)。
-
多稳态参数区间的跨度受自发活动水平 νsp 调节:当 νsp = 2.5 Hz 时,多稳态区间对应 13.3 < JS < 20(pA.s);当 νsp 上升至 5 Hz 时,区间缩窄至 11.4 < JS < 14.2;当 νsp = 7.5 Hz 时,进一步收缩至 10.6 < JS < 11.6;而当 νsp = 10 Hz(f–I 曲线拐点处)时多稳态区间完全闭合。非选择性外部调控输入与持续活动强度呈现倒 U 形关系:非选择性输入过强或过弱均会压低持续活动;该动力学特性与多巴胺 D1 受体激活对前额叶工作记忆表型及电生理特征的倒 U 形调节相符(Williams 与 Goldman-Rakic 1995)。选择性输入则表现为单调驱动:由于低频自发活动的存在,网络仅需约 6.4 pA 的微弱选择性输入即可触发持续态,阈值较无自发态的双稳态网络低一个数量级(图 5)。
-
配对联想学习驱动两类吸引子模式的分化:当联想学习指数 a < 0.06 时,网络存在“个体吸引子”——线索神经元亚群维持高频放电(>10 Hz),配对神经元亚群呈现略高于基线的微弱放电(随 a 从 0 增长至 0.06,放电率自 2 Hz 升至约 5 Hz),对应“前瞻性联想活动”;当 a > 0.06 时,个体吸引子失稳消失,转为两组关联神经元亚群同步高频放电的“配对对称吸引子”。该状态转换仅需微量的突触权重重塑:单个神经元接收来自配对亚群的约 200 个突触输入中,a = 0.05 仅相当于其中约 10 个突触发生特异性强化(图 6)。
-
两类经典实验范式的动力学复现:在颜色切换任务中,于延迟期中段对配对类别施加偏置输入,当偏置电流 <12 pA 且学习指数较低时,线索记忆态保持稳定;增强偏置输入后,依据 a 的数值差异,网络分别演化为回落至自发态、由线索态 A 跳变至配对态 A′,或进入两类神经元均维持高频放电的对称态 P——实验中记录到的“线索放电回落、配对放电升高”对应模型中的 A→A′ 状态跃迁区间(图 7)。在固定时序任务中,时序近邻突触强化可诱发分别包含 1、2、3 或 4 个神经元群体同步激活的多类稳态,且这些稳态在特定 a 区间内共存;延迟期神经元群体的放电关联随 a 增加而展宽,复现了 Miyashita (1988) 在 IT 皮层观察到的时序近邻放电关联拓扑(图 8)。
图注解读
图 1 · 单个神经元的 f–I 曲线
原文图注:Figure 1. The single neuron f–I curve φ(I). For input currents below the threshold current Ic (noise-induced firing), the f–I curve is supralinear. Above the threshold, the f–I curve is sub-linear.
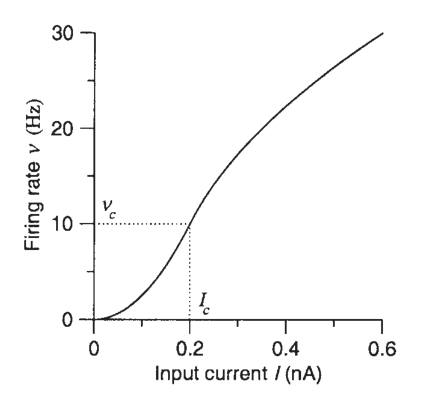
读图说明:纵坐标为放电频率 ν,横坐标为突触输入电流 I。曲线在阈值电流 Ic 以下呈现超线性上升(对应随机涨落驱动的亚阈值放电区),在 Ic 以上呈现亚线性饱和趋势(对应确定性均值驱动区)。该曲线的拐点与非线性几何形态决定了后续平均场方程的交点数量与稳定性,使得网络的多稳态存在区间直接受自发背景放电水平的影响(演示参数 Ic = 0.2 nA, νc = 10 Hz)。
图 2 · 最简单的双稳态网络
原文图注:Figure 2. The simplest bistable network is a purely excitatory network with uniform coupling. (A) Network architecture. (B) The fixed points of network activity can be found plotting a straight line whose slope is inversely proportional to the synaptic excitatory feedback against the f–I curve. (C) Solutions of network activity versus strength of excitatory coupling. Full line: persistent activity (stable fixed point). Dotted line: basin of attraction of persistent activity (unstable fixed point). Note the high slope of the persistent activity versus coupling strength curve beyond the point where it appears at J ∼ 17 pA.s. (D) Solutions of network activity versus strength of external input. This shows the basic mechanism by which the network can switch between the up and the down states.……
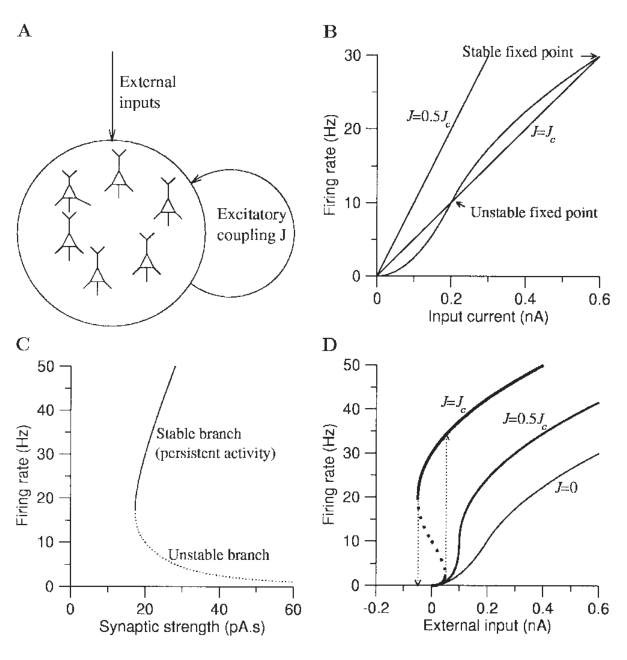
读图说明:(A) 为均一纯兴奋性循环网络架构;(B) 展示不动点几何求解方式,网络稳态对应 f–I 曲线与斜率反比于兴奋性突触强度 J 的直线的交点;(C) 给出网络放电率随耦合强度 J 的分岔路径:实线表示稳定的持续放电不动点,虚线表示不稳定不动点(吸引盆边界),在 J ≈ 17 pA.s 处分岔出持续放电解;(D) 展示放电率随瞬态外部输入的动力学响应,揭示网络在“开启(up)/关闭(down)”稳态之间切换的临界输入阈值。该图支撑主要结果第 1 条。
图 3 · 兴奋–抑制网络中的自发活动
原文图注:Figure 3. Spontaneous activity in an excitatory–inhibitory network. (A) Architecture of the excitatory–inhibitory network. (B) Spontaneous activity as a function of external input, for recurrent inhibition exceeding excitation by 20 pA.s. The dotted curve represents the f–I curve of an isolated cell. The strong inhibitory feedback acts to reduce the firing rates of the cells in the network. Compare with Figure 2D.
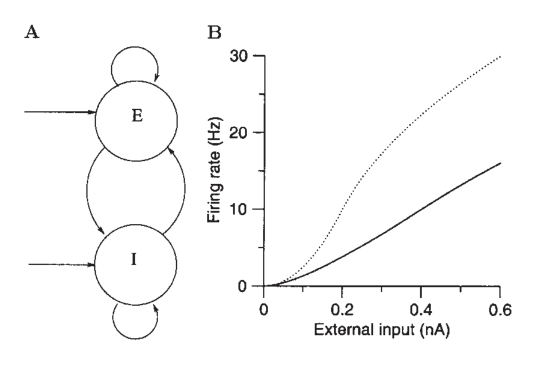
读图说明:(A) 为包含相互连接的兴奋性与抑制性神经元群体的皮层微回路结构;(B) 展示自发放电率随外部驱动输入的变化曲线(循环抑制反馈强度设定为超出兴奋反馈 20 pA.s),虚线表示无抑制反馈时孤立神经元的 f–I 响应。对比显示,强大的抑制性反馈将网络自发活动钳制在较低生理水平,且在此生理参数下均一网络的持续放电双稳态不复存在。该对比支撑主要结果第 2 条前半部分。
图 4 · 带选择性亚群的网络与多稳态
原文图注:Figure 4. Cortical network with selective sup-populations of excitatory cells. (A) Functional architecture of a network with four subpopulations coding for objects a, b, c, d. The relative strengths of the recurrent connections between excitatory populations are indicated by the thickness of the corresponding arrows. (B) Stationary states of network activity are again obtained by the intersection of the f–I curve and a straight line (cf. Fig. 2B). The straight line is constrained by inhibition to pass through the point of the f–I curve where the firing rate is equal to spontaneous activity and has a slope inversely proportional to the selective synaptic strength JS. (C) Rates in stationary states versus synaptic strength. Spontaneous activity (thin lines), persistent activity (thick lines) and unstable fixed point (dotted line) as a function of synaptic structure parameter JS. There are five set of curves, corresponding to spontaneous activity levels of 0, 2.5, 5, 7.5 and 10 Hz. (D) "Phase diagram" in the plane νsp – JS. The size of the multistable region decreases with νsp and vanishes when νsp = 10 Hz.
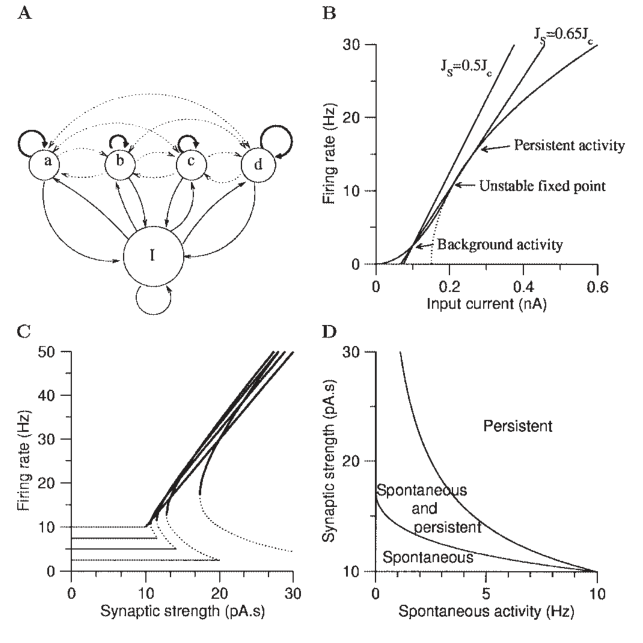
读图说明:(A) 呈现经过模式学习后的网络功能连接架构,四个兴奋性亚群分别编码不同客体 a–d,箭头粗细表示连接权重;(B) 展示几何相交分析:在抑制性反馈约束下,直线必须穿过 f–I 曲线上放电率等于自发基线的工作点,其斜率反比于选择性突触强度 JS;(C) 呈现五组自发基线放电水平(0 至 10 Hz)下持续态与自发态放电率随 JS 的演化曲线;(D) 为 νsp–JS 参数空间相图,直观展现多稳态共存区间随基线放电增加而逐步收窄并在 10 Hz 处完全消失的规律。该图支撑主要结果第 2、3 条。
图 5 · 外部输入对自发与持续活动的双重影响
原文图注:Figure 5. Spontaneous and persistent activity as a function of external input. (A) Non-selective external input: input to the whole network. Thin black line: spontaneous activity. Medium line: persistent activity, JS = 0.75Jc. Thick line: persistent activity, JS = Jc. The arrows show how persistent and spontaneous activity are affected by a non-selective external input, starting from a "control" parameter set indicated by the full circles. A decrease in external input decreases both spontaneous and persistent activity, as expected. An increase in external input decreases persistent activity. Above some level of stimulation, spontaneous activity becomes unstable and the network jumps in one of the persistent activity states (vertical arrow). (B) Selective external input: input to one of the subpopulations. Activity of subpopulation under selective stimulation. JS = 0.7Jc, νsp = 2.5 Hz (indicated as dashed line).
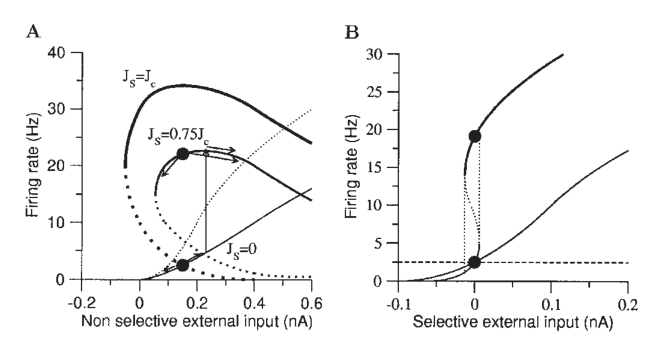
读图说明:(A) 针对全网施加非选择性弥散输入时的动力学响应:细实线表示自发基线放电,中/粗实线表示不同 JS 下的持续放电。箭头指示自对照工作点(实心圆)出发的响应轨迹:调低输入导致持续放电与自发活动同步下降;调高输入反而压低持续活动放电率(呈现非线性的倒 U 形效应);当弥散刺激超过阈值时,自发背景态失稳,系统自发跳转至某一持续吸引子态(竖直箭头);(B) 为针对单一亚群施加特异性选择输入时的响应,此时放电率随输入单调上升。该图支撑主要结果第 3 条关于倒 U 形输入调节效应的推导。
图 6 · 配对联想学习重塑吸引子地形
原文图注:Figure 6. The pair-associate protocol. (A) Architecture of a network after learning of pair associates. (B) Firing rates in memory states, as a function of pair learning index. All the states indicated in this graph are stable states. Black curve: spontaneous activity (activity in subpopulations A, A′, B, B′ shown schematically in inset SAS). …… (C) Diagram showing the regions where the different attractors live, in the space of synaptic variables (JS, a). The thick black curve shows the boundary of the region of existence of the pair states. Thin lines show the boundary of the region of existence of the individual states.
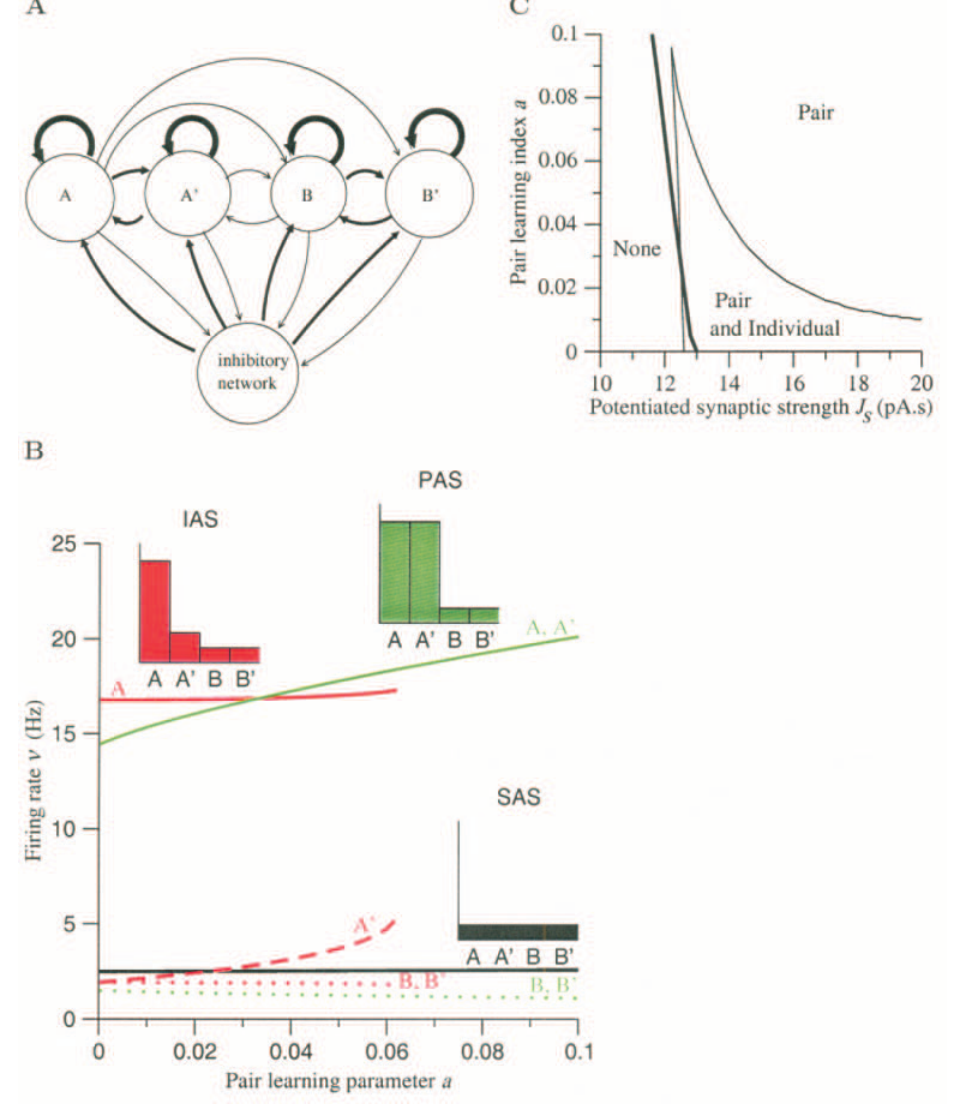
读图说明:(A) 为配对联想任务学习后的突触架构示意(配对类别 A–A′ 与 B–B′ 之间的前馈/反馈连接选择性增强);(B) 描绘记忆稳态放电率随配对学习指数 a 的演化曲线,黑色代表背景自发水平,红色分支代表个体非对称吸引子(线索亚群高频放电,配对亚群微弱提升),绿色分支代表对称配对吸引子(两类亚群均达到高频放电);(C) 展示突触参数空间 (JS, a) 中的吸引子相图,粗实线界定对称配对态的存在边界,细实线界定个体吸引子的存在边界。该图对应主要结果第 4 条。
图 7 · 颜色切换:弱偏置输入引发的记忆状态转移
原文图注:Figure 7. Pair associate task with color switch. Effect of a weak biased input to the class of the paired associate in the middle of the delay period, as a function of a and the strength of the biased input (given to half of the network). After presentation of the cue, the network goes to the asymmetric A attractor in which cue neurons are highly active and pair-associate neurons are weakly active. After a weak biased stimulation (similar to color in the experiment of Naya et al., 1996), the network switches to S (non-selective spontaneous activity), A (i.e. stays in same attractor), A′ (goes to the asymmetric attractor in which pair associate has high activity, cue has low activity), or P (symmetrical pair attractor, both types of neurons have high activity).
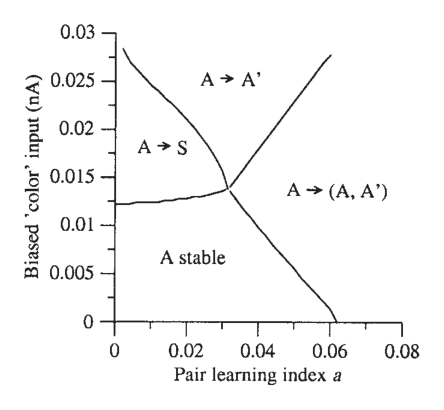
读图说明:相图横坐标为延迟期中段引入的偏置输入强度,纵坐标为配对学习指数 a。平面划分为四种动力学稳定区域:S(退化为非选择性自发活动)、A(维持原始线索吸引子)、A′(跃迁至配对亚群高频放电的非对称吸引子)以及 P(跃迁至两类神经元均维持高频放电的对称配对态)。该动力学分岔将 Naya 等 (1996) 记录到的线索放电消退、配对放电建立过程解释为向 A′ 吸引子的确定性状态转移。该图支撑主要结果第 5 条前半部分。
图 8 · 固定序列学习产生的多样持续活动模式
原文图注:Figure 8. Fixed sequence of cue stimuli. (A) Architecture of the network after learning. (B) Persistent activity patterns, labelled by the number of populations strongly active in such patterns (1, red; 2, blue; 3, green; 4, brown; see insets), as a function of sequence learning index. The transitions where states appear or disappear are marked with dotted vertical lines. Similar transitions where more populations become activated occur at higher values of a.
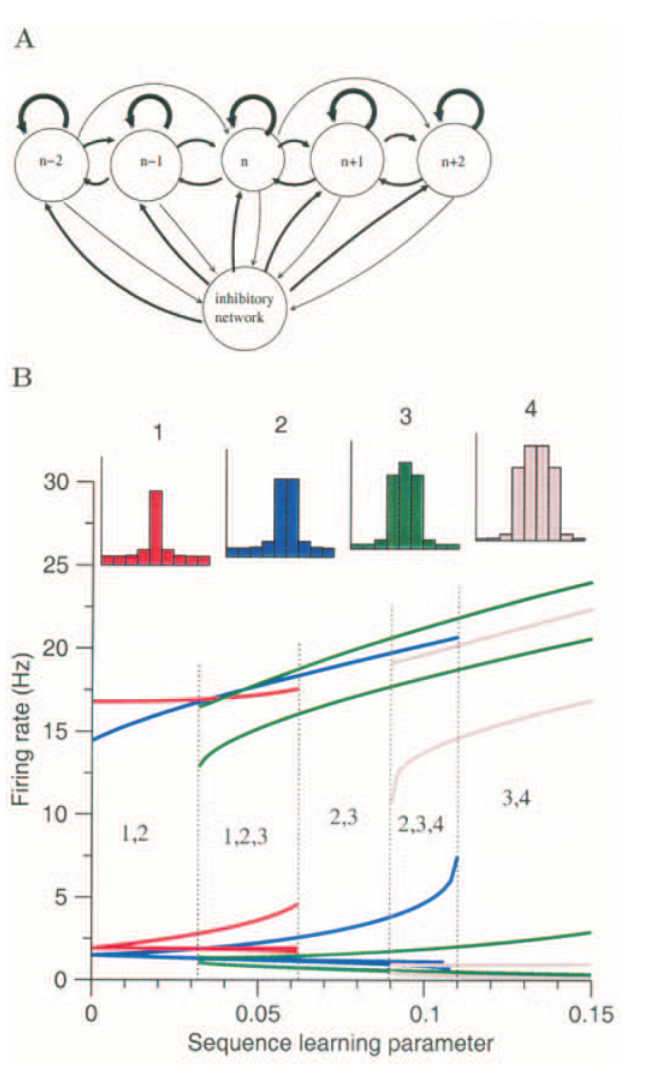
读图说明:(A) 为连续刺激序列学习后的突触连接图式(沿时间序列相邻的神经元亚群之间突触连接获得选择性强化);(B) 展示持续活动吸引子模式随序列学习指数 a 的演化规律,不同颜色表征具有不同数量强激活亚群的状态(包含 1、2、3 或 4 个强放电集群,插图示意其放电拓扑),虚线垂直标示各稳态涌现与消亡的临界分岔参数。随着 a 增加,延迟期放电相关性在近邻类别间扩散展宽,复现了 Miyashita (1988) 在灵长类 IT 皮层观察到的时序联想表征。该图支撑主要结果第 5 条后半部分。
讨论
作者在讨论中首先对模型参数与电生理记录进行了定量对照:实验记录显示延迟期持续放电频率与基线自发放电频率的比值通常约为 3(如 Nakamura 与 Kubota 1995 在灵长类颞叶的记录);当设定 νsp = 5 Hz 时,模型计算得到的多稳态突触强度区间为 11.4 < JS < 14.2,对应持续放电频率为 12–20 Hz,具有约 30% 的参数容错容积,其绝对放电率与倍数比均与生理实验相符。作者同时指出了模型的两项动力学挑战:其一,脉冲神经网络中的持续放电状态易被快速兴奋与慢速抑制诱发的同步网络振荡所破坏,而引入 NMDA 受体介导的慢兴奋电流有助于抑制群体同步并维持异步持续放电(Wang 1999;Compte 等 2000);其二,实验记录中延迟期神经元放电通常表现出较大的时间间隔变异系数(CV),而在强均值电流驱动的传统持续吸引子模型中,神经元放电趋于规则(CV 较低),目前该框架对高 CV 放电特性的解释力仍有限。在可检验的理论预测方面,模型指出任何非选择性调控单神经元兴奋性的药理学干预均可能导致持续放电表现出倒 U 形剂量效应,这与局部微量注射多巴胺 D1 受体调节剂的电生理效应(Williams 与 Goldman-Rakic 1995)相一致。在理论脉络上,该工作将 Amit 等早期的吸引子网络拓展至突触可塑性学习动力学,并与 Wang、Durstewitz 等关于前额叶调控的动力学模型形成了互补。
在局限性方面,作者指出文中的吸引子状态是离散的,各个稳态对应已通过重复学习固化的已知客体表征;然而生物大脑在单次暴露下亦能对完全新异的刺激产生短期持续记忆,这要求极快速的单次突触学习机制或独立于局部循环突触的细胞内在维持机制。针对空间或连续物理特征工作记忆的连续吸引子模型(Seung 1996;Camperi 与 Wang 1998;Compte 等 2000),作者指出此类模型对神经元内在参数与突触连接的生物学异质性较为敏感,参数扰动往往会导致连续流形退化为一组离散吸引子,而这一退化后的空间形态与本文序列学习诱导的离散吸引子景观在动力学上具有相通性。
一句话总结
本研究通过平均场网络模型阐明了皮层微回路维持刺激选择性持续放电的动力学条件:强全局抑制稳定低频自发背景,局部选择性兴奋突触维持离散客体记忆吸引子;在此基础上,联想学习引发的微量突触重塑能够驱动吸引子景观的演化,统一解释了前瞻性预期放电、维度切换跳变与时序近邻关联等工作记忆电生理表型。模型亦明确界定了离散吸引子理论的适用范围,为理解工作记忆的神经回路动力学提供了清晰的计算分析框架。