一句话定位:这是发表在 Current Biology 的 Dispatch 评述文章,解读了 Janssen 等人(2003 年发表于 Neuron)在清醒猕猴前部下颞叶皮层(inferior temporal cortex,IT;具体为 TE 区)记录到表征真实双眼深度、解决“双眼对应问题”的单神经元电生理发现。文章梳理了双眼立体视觉中的对应问题、初级视区局部视差滤波器的生理特性,以及高阶皮质如何滤除错误双眼匹配的层级处理机制。
研究背景
立体视觉的物理基础源于物体在左右眼视网膜上成像的空间位置差异(双眼视差),但视差物理信号的检测与稳定深度知觉的形成存在机制差异。随机点立体图(RDS)证实,即便单眼视野内缺乏可识别的轮廓形状,只要两眼随机点图案存在空间位移,人类与灵长类就能感知到三维深度。这种范式将双眼立体感从明暗、单眼透视等经验线索中解耦出来,同时突出了立体视觉的核心计算难点——双眼对应问题(correspondence problem):左眼视网膜上的一个局部特征点,如何在右眼视网膜海量点阵中找到源自同一物理空间位置的对应点。若视觉系统仅依赖局部图像相关性进行计算,会产生大量假性错误匹配(false matches),从而导出虚假的深度信号。因此,构建鲁棒的立体视觉模型不仅需要阐明视差特征的初级提取,更需要解释神经系统如何剔除虚假匹配。
早期视皮层的单细胞电生理研究量化了这两种加工阶段的差异。通过反转左右眼随机点图案的明暗极性构造“反相关随机点立体图(anti-correlated RDS)”,该刺激在心理物理上无法产生融像与立体深度知觉;然而,初级视皮层(V1)以及部分背侧视区神经元依然表现出视差选择性调谐,其调谐曲线在反相关条件下呈现为相对正常条件的垂直反转。这种响应特性符合经典的局部双眼视差能量模型,表明其仅作为局部视差能量检测器工作,其放电活动不直接对应最终的主观深度知觉。另一方面,微电极微刺激中颞区(MT)特定视差神经柱能够直接偏置动物的深度辨别决策,表明中高级皮层的视差信号参与了知觉产生。研究的关键问题在于:局部虚假视差信号在视觉通路哪一加工阶段被有效过滤,以及在何处首次形成仅对感知深度响应的真正全局视差表征。
本文围绕 Janssen 等人在猕猴前颞叶 TE 区的电生理记录,评述了高阶皮层视差表征与早期局部视差检测器的本质差异:神经元对形成三维表面曲率的相关立体图具有高度调谐,而对无法融像的反相关立体图与不相关立体图仅维持基线放电,表明其放电已符合全局几何对应约束。作者结合灵长类腹侧通路及仓鸮视区电生理研究,探讨了沿视觉层级渐进式滤除错误匹配的神经回路机制。需要指出的是,在 TE 区观察到解决对应问题的神经表征,并不等同于该计算全部在 TE 区局部发生;TE 神经元可能整合了来自上游视区的多级运算结果。
研究思路
评述的理论框架分为两步:第一,建立区分神经元属性的生理判据——利用反相关 RDS 区分“局部视差检测器”与“全局视差检测器(global disparity detector)”。前者的调谐曲线在反相关条件下出现峰谷倒置(图 1D),后者在反相关条件下放电被完全抑制至自发基线(图 1E),仅对能够引发立体融像的刺激产生调谐。第二,基于此判据梳理视觉层级中的实验证据分布:V1、MT、MST 以及仓鸮视区 Wulst 中多数细胞表现出反转调谐特性,反映了局部滤波阶段;而 Janssen 等人在前部 TE 区记录到的单神经元表现为反相关响应抑制,符合全局检测器标准。结合仓鸮神经元中长潜伏期细胞对虚假匹配具有更强抵抗力的观察,作者提出对应问题并非在某一脑区瞬间完成,而是沿着视觉通路逐级递进、分步滤除错误匹配的计算过程。最后,文章从高发放阈值、主动侧向抑制及能量模型修正等角度探讨了底层突触与回路机制。
方法
本文作为评述性文章,其核心理论依据来自 Janssen、Vogels、Liu 与 Orban(Neuron 37, 693–701, 2003)在清醒行为猕猴上进行的单细胞外电生理记录:记录位点定位于下颞叶皮层前部 TE 区(腹侧视觉通路前端),刺激材料为由纯视差线索构建的平滑三维曲面图形(随机点立体图引入连续的视差梯度,呈现凸起或凹陷的三维双曲面)。刺激条件包含相关立体图(correlated RDS,产生稳定深度)、反相关立体图(两眼极性相反,无法融像)以及不相关立体图(两眼图案完全独立,无对应关系)。实验通过严格的注视点监控与注意控制任务排除眼动与唤醒度混淆。早期视皮层的对照证据(V1、MT、MST 单细胞记录与微刺激,以及仓鸮 Wulst 单细胞记录)引述自既往经典文献(如 Cumming & Parker 1997;DeAngelis 等 1998;Nieder & Wagner 2001)。
主要结果
- 前部下颞叶 TE 神经元对纯视差定义的三维宏观形状具备选择性调谐:大量 TE 神经元能够特异性调谐于凸面或凹面三维表面,即稳定编码了由平滑视差梯度构成的宏观三维空间曲率与深度排列。
- TE 神经元放电完全滤除了双眼虚假错误匹配:与早期视皮层神经元截然不同,无论呈现反相关还是不相关随机点立体图(两者在主观感知上均不产生立体深度),TE 神经元均仅保持微弱的自发基线放电,未出现调谐峰;仅当呈现能够引发双眼融像的相关立体图时,神经元表现出强烈的选择性放电。不仅对三维复合构型调谐的细胞如此,对均匀视差平面敏感的初级样 TE 神经元同样表现出对反相关刺激的响应缺失;且眼动参数与空间注意状态排除了非特异性因素的解释。
- 双眼对应问题的解决呈现层级渐进性:早期视皮层神经元对反相关刺激并非均等呈现完全对称的反转,部分细胞的反相关响应幅度已降至局部能量模型理论预测值的一半左右;仓鸮视区(Wulst)记录显示,放电潜伏期更长的神经元对反相关立体图表现出更低的敏感性,支持了自低阶空间滤波器向高阶全局检测器逐步过渡的神经级联假说。
- 滤除虚假匹配的神经回路生理机制线索:单纯跨感受野通道的前馈信号线性汇聚不足以解释对反相关刺激的强烈抑制;在高阶神经元处设定更高的动作电位激活阈值,能够有效切除反相关条件下产生的局部响应波谷,防止调谐倒置;此外,猫头鹰等动物中的细胞内记录提示局部抑制性中间神经元的主动抑制是彻底消除虚假响应的必要生理机制。
图注解读
图 1 · 双眼几何、两类立体图与两种视差检测器
原文图注:Figure 1. Geometric relationships in binocular vision and disparity detectors. (A) An observer fixates point P, the images of which (P′) are projected onto corresponding retinal locations (the fovea). Because of the lateral displacement of the eyes, points beyond the fixation point are projected on disparate retinal locations. For example, the angular differences between the images of point F (F′) relative to corresponding retinal locations in the right and left eye defines this point's horizontal disparity. Negative and positive disparities occur for objects nearer or farther away than the fixation plane, respectively. The correspondence problem is indicated by the arrow: in principal, the image of N in the left eye could be matched falsely with the image of F in the right eye. But the visual system discards such false matches, and no object is perceived at that depth. (B) In correlated random-dot stereograms, black and white dots appear at identical locations of the image shown to the left and right eye. Presented with horizontal disparity, such random-dot stereograms allow depth perception. (C) In anti-correlated random-dot stereograms, the left eye sees a white dot at the same location where the right eye sees a black dot, and vice versa. Anti-correlated random-dot stereograms cannot be fused and do not support stereopsis. (D) Schematic disparity response profile of a disparity-sensitive neuron in early visual cortex. The neural activity as a function of disparity in correlated random-dot stereograms (red) is completely inverted during stimulation with anti-correlated random-dot stereograms ( blue). ……
图幅系统阐释了双眼视差理论与生理判据:(A) 视差几何光学原理,展示双眼注视点 P 及其对应视网膜位置,箭头指示可能引发虚假匹配的视网膜点对;(B) 相关 RDS 构造,两眼明暗点位严格对称,可产生立体知觉;(C) 反相关 RDS 构造,两眼明暗极性相反,无法融像;(D) 初级视皮层神经元示意调谐曲线,反相关刺激(蓝线)诱发的响应将相关条件(红线)调谐曲线完全翻转;(E) 解决对应问题的全局视差检测器(如 TE 神经元),对反相关刺激仅产生平坦的自发基线放电,对应主要结果第 1、2 条。
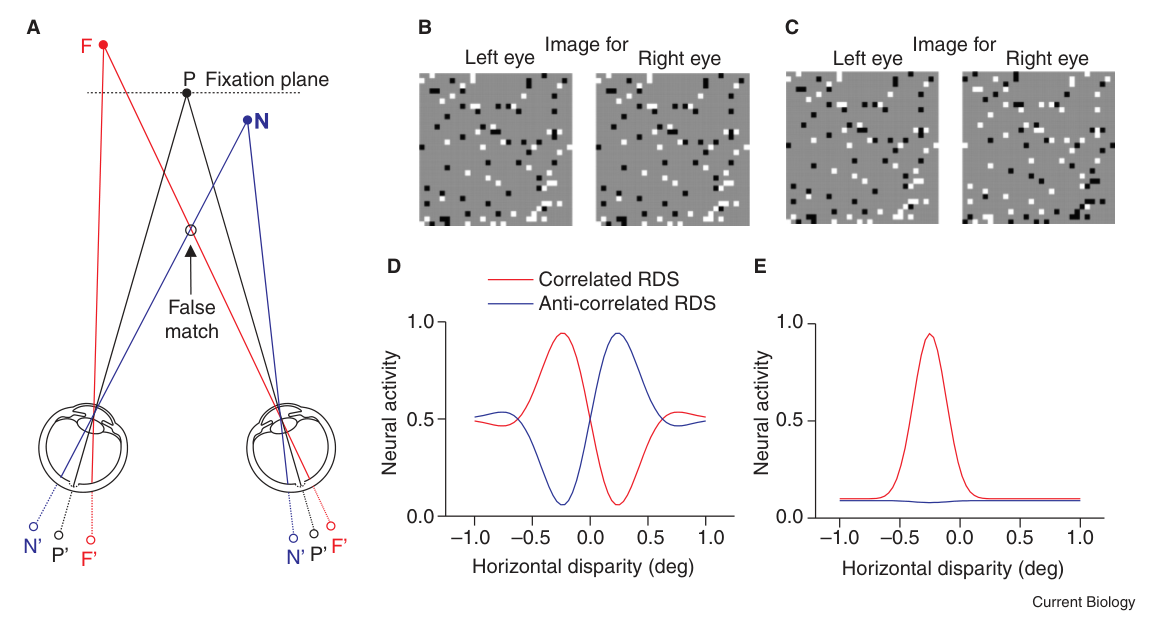
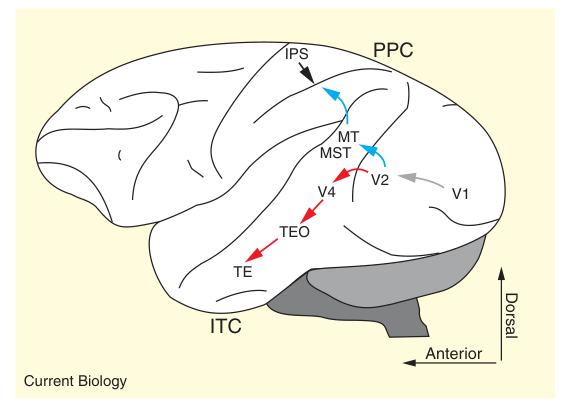
图 2 · 猴脑腹侧与背侧视觉通路简图
原文图注:Figure 2. Simplified scheme of the ventral (red) and dorsal (blue) visual pathways in the monkey brain. IPS, intra-parietal sulcus; ITC, inferior temporal cortex; MT, middle temporal area; MST, medial superior temporal area; PPC, posterior parietal cortex.
解剖通路架构图:红色标注的腹侧视觉通路(V1–V2–V4–TEO–TE)主导客体识别与形状感知;蓝色标注的背侧视觉通路(V1–V2–MT–MST–IPS/PPC)主导空间定位与视觉引导动作。TE 区位于腹侧通路前端,其展现出完全滤除虚假匹配的神经表征具有重要理论定位;同时背侧通路末端(顶内沟尾段)同样记录到对视差定义三维朝向敏感的神经元,提示对应问题的解决可能在两条通路中并行演化,对应方法与讨论章节。
讨论
评述从三个理论层面对实验发现进行了归纳:第一,前部 TE 神经元的视差调谐完全符合知觉层面的双眼融像状态,为高级视觉皮质直接支撑宏观三维形状知觉提供了单细胞电生理依据;然而鉴于 TE 处于腹侧流顶端,当前数据尚不能完全断定消除歧义的计算全部发生于 TE 本地,还是主要继承自上游(如 V4 或更早视区)的计算结果。第二,结合灵长类腹侧通路各级视差研究(V1 编码绝对视差,V2 表征相对视差与边缘轮廓,V4 提取三维局部轴向倾角),作者指出视差加工展现出分级精细化的层级演化特征,双眼对应问题的解决更符合多级回路逐级滤除假性信号的级联模型,而非单脑区集中运算。第三,在神经计算模型方面,过去被广泛接受的双眼视差能量模型能够预测早期视区的局部倒置特性,但无法解释 TE 神经元对反相关刺激的基线抑制反应;修正现有计算模型需引入神经元放电阈值非线性截断以及跨神经柱的侧向主动抑制机制。此外,背侧流顶内沟尾段(CIP)是否同样在单细胞水平彻底解决了对应问题,构成了未来的重要探究方向。
一句话总结
评述通过对比相关与反相关立体图诱发的神经电生理响应,确立了前部下颞叶 TE 神经元能够有效过滤假性双眼匹配并表征感知三维形状的全局检测器特性,揭示了立体知觉对应问题的层级去歧义计算机制。